一个看似亏本的买卖
自然界的微生物群落里,相当多的成员自己造不全必需的营养物,要靠邻居释放的代谢物才能活;而邻居释放这些东西往往要付出代价。这看起来违反直觉:为什么一个细胞要生产昂贵的分子送给别人?为什么丢掉合成基因、变得“残缺”的基因型不但没被淘汰,反而在群落里遍地都是?5 12
两个合成系统把这个演化谜题变成了可以在培养皿里逐项测量的账目问题。Pande 等在大肠杆菌里做减法:删掉一个氨基酸合成基因得到缺陷型,再删一个代谢调控基因让它过量生产另一种氨基酸,两株搭配后互相喂活对方。1 Ross 等则构建了一对极简交换者——ΔtyrA 缺酪氨酸却释放苯丙氨酸,ΔpheA 缺苯丙氨酸却释放酪氨酸——并连续传代追踪群落的动态结局。2
本文追问三件事:分工的成本收益账怎么算平;同一套交换结构什么时候给出稳态、什么时候给出振荡、什么时候整个崩溃;欺骗者(只吃不产的搭便车者)什么时候能毁掉群落。主要证据是两篇全文精读的原始论文 1 2,辅以领域谱系文献(均按摘要级标注);文中动力学图是本库按 Ross 等的方程独立实现的小规模示意计算,只核定性结局,不外推数值。
先确认现象:两个“残缺”菌株凑在一起,长得比野生型还快
Pande 等的构造分两步。1 先删四个氨基酸合成基因之一(argH、trpB、leuB、hisD),得到精氨酸、色氨酸、亮氨酸或组氨酸的缺陷型;再删三个代谢基因之一(nuoN、mdh、ppc),得到氨基酸过量生产型。把两类突变组合起来,得到 12 株“交叉喂养者”:每株缺一种氨基酸、过量生产另几种。两株互补的交叉喂养者配对,在不含任何氨基酸的基本培养基里共培养,互相喂活对方。
三层关键数字:
- 过量生产有成本:三株过量生产单突变与野生型竞争,适合度低 5–7%。
- 缺陷有收益:缺陷型在有所需氨基酸的环境里与野生型竞争,适合度高约 20%——而且四种氨基酸的增益几乎相同,说明省下的主要是“自己造氨基酸”的通用生产成本,与具体是哪种氨基酸关系不大。
- 分工净收益为正:54 种交叉喂养配对中,43 种共培养 24 小时的增长率显著超过单独培养的野生型。例外的 11 种里 9 种涉及同一株产量不足的突变体——失败原因恰是交换通量不够,反向支持了机制。
两个对照排除了平庸解释。其一,用化学成分明确的氨基酸混合液替代过量生产者的培养上清,缺陷型的 +20% 增益照样出现——起作用的就是氨基酸本身,不是上清里的其他东西。其二,死细胞计数显示交叉喂养群落与野生型的细胞存活率没有显著差异——增长优势来自交换,不是来自细胞裂解释放营养。
这里需要先钉死一个概念分界。代谢物交换有两大类:兼性交叉喂养释放的是废物或无成本副产物,接收方搭便车,这在演化上不难理解;专性交叉喂养的释放物有成本、双方都离不了对方,才是“合作为什么能存在”的真问题。1 12 Pande 系统的重要性正在于它把成本做进了构造里:过量生产实测有 5–7% 的代价,这不是白送的副产物互利。
稳定性的第一层:负频率依赖,不借助空间结构
“能长”不等于“能稳”。演化理论的标准担忧是:只享受免费氨基酸、不承担过量生产成本的基因型应当入侵并毁掉交换。Pande 等用三类实验直接检验稳定性。1
互侵实验:把四对交叉喂养者分别以 1:100 的稀有比例接入对方种群。所有受试组合里,稀有方头 24 小时的相对适合度都不低于 1.2,三天内收敛到约 1:1。稀有者总能入侵、常见者被稀释——这是负频率依赖选择的签名,它天然地把群落锁在中间比例。
与野生型三方竞争:四个群落组合对野生型(初始 0.5:0.5:1),三个组合适合度更高。自给自足者并没有把分工者挤出去。
与剥削者共存:把交叉喂养群落了和对应的单纯缺陷型(吃免费氨基酸、不过量生产)以不同初始比例混合。双向都能从稀有入侵对方,两者稳定共存——而且是在充分混合的液体环境里,公共品对双方同等可达。交叉喂养者入侵缺陷型种群的能力明显强于反过来,说明共存平衡点偏向合作者一侧。
这最后一个结果值得停一下。当时的通行图像是:互利交换要抵御剥削,需要空间结构(合作者聚簇、收益留在本地)或者伙伴选择机制。1 Pande 等证明在没有任何这些结构时,负频率依赖本身就能稳住交换——机制是交换越充分,免费氨基酸越少,剥削者的优势随自身频率上升而消失。这与更早的理论预测一致:当中间水平的供应率加上不对称的竞争能力时,互利者可以稳定共存。1
空间结构的作用随后也被正面测过,不是被否定,而是被定位成充分条件之一:E. coli 与 S. enterica 的群落扩张实验显示,交换通量由供体细胞的资源分配决定,空间耦合决定合作收益能兑现多少 7;同一课题组后续证明,空间结构里的“收益私有化”(释放的代谢物优先惠及邻近的生产者)能进一步稳定交叉喂养、抵御投机者 8。把这些拼起来:负频率依赖给出充分混合下的基线稳定性,空间结构在此基础上再加一层保护——两者都不是唯一答案。
稳定性的第二层:资源动态的反馈结构,决定稳态还是振荡
Pande 测的是 24–72 小时的适合度与终点比例。如果把时间拉长、连续追踪,群落还坐在那个平衡点上吗?Ross 等的答案出人意料:同一套双向交换,换个环境条件就从稳态翻成持续的种群振荡。2
他们的体系比 Pande 更极简:只有 ΔtyrA 和 ΔpheA 两株,交换酪氨酸和苯丙氨酸这一对芳香族氨基酸,在基本培养基里每 24 小时稀释传代一次。结局随外源补充浓度切换:完全不补充时群落趋向稳定;补充 10/20 μM(酪氨酸/苯丙氨酸)时出现显著的周期二振荡(p ≈ 7×10⁻¹¹),两株丰度反相位交替冲高;补充再加倍到 20/40 μM,振荡仍在但减弱。
机制藏在资源谱里。逐时刻测培养基里的氨基酸发现一条此前模型从未纳入的规律:一株菌受自身所需氨基酸限制时,反而大量释放对方所需的那种;一旦它转为葡萄糖限制,释放立即停止。ΔtyrA 缺酪氨酸、生产苯丙氨酸:酪氨酸充足时它停止释放苯丙氨酸;ΔpheA 缺苯丙氨酸、生产酪氨酸:苯丙氨酸充足时它停止释放酪氨酸——交叉抑制构成一个正反馈环:A 受饿 → A 释放 B 的食物 → B 转向葡萄糖限制、停止释放 A 的食物 → A 继续受饿。这个正反馈让资源子系统出现两个亚稳态:每个稳态里一株是“受饿的生产者”,另一株是“吃饱的消费者”,角色完全不对称。2
把这写成方程,是两株菌 $N_1, N_2$、两种氨基酸 $R_1, R_2$ 加葡萄糖 $R_3$ 的五变量系统。每株的实现生长率取两种必需资源的 Liebig 最小值 $\mu_1 = \min(\mu_{12}(R_2), \mu_{13}(R_3))$,单资源生长率是 Michaelis-Menten 形 $\mu_{ij}(R_j) = \mu_{i,\max} R_j / (R_j + k_{ij})$。氨基酸的释放项是关键:
其中 $D$ 是稀释率。$q_{11}(\mu_{13}-\mu_1)N_1$ 这项只在 $\mu_1 < \mu_{13}$——即 N₁ 受氨基酸而非葡萄糖限制——时才为正,编码的正是“受饿才释放”的交叉抑制。2
分析最小化后的模型,振荡的机制是弛豫振荡:资源浓度是快变量,贴着由当前群落组成决定的准稳态走;两株的相对丰度 $f = N_1/(N_1+N_2)$ 是慢变量。生产者株因受饿而长得慢,其相对丰度逐渐下滑,直到资源平衡点在一个鞍结分岔处消失,系统瞬间跳到另一个亚稳态——生产者与消费者角色互换,振荡一周。快慢时间尺度分离是核心;这与捕食-被捕食模型里的弛豫振荡同族。在这个简化分析中,快资源子系统要出现双稳态,必须满足 $q_{11}q_{22} > q_{12}q_{21}$,即交叉抑制的正反馈强过自阻尼的负反馈;但这个乘积条件本身不保证持续振荡。作者还给出了包含稀释率和总丰度的更完整条件,并用数值分析比较简化模型与完整系统。2 17
这里必须先排除一个最强的替代解释:振荡会不会只是“每 24 小时稀释传代”这个外部节拍打出来的,而非群落的内生性?Ross 等用连续稀释的恒化器模型回答:把稀释从离散脉冲换成恒定速率、去掉一切外部强迫后,同一方程组照样走出极限环。批次实验里的整数周期是内生振荡与外部节奏相互作用的结果——高频小幅稀释时贴近无强迫的极限环,低频大幅稀释时锁定为整数周期。2 振荡是系统自己的,传代只是把它调成了整数倍。
本库按论文方程 (1) 独立实现了这个模型(示意参数,未使用论文拟合值),复核了结局如何随参数切换:
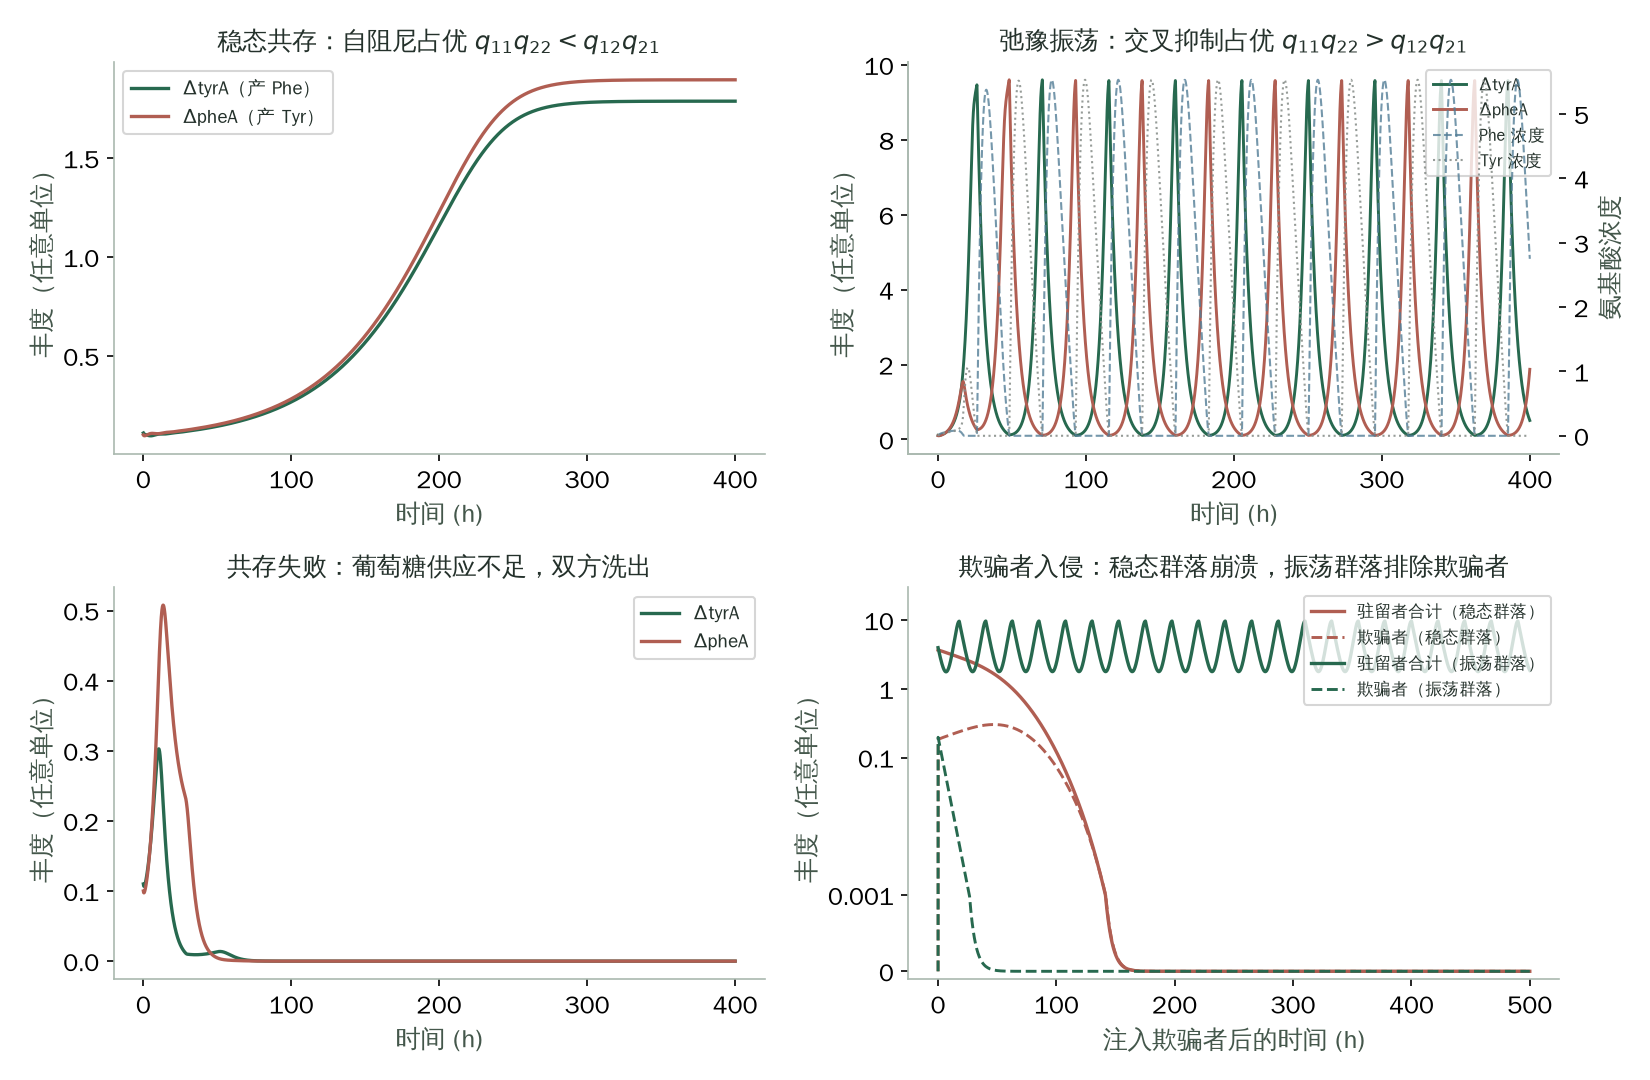
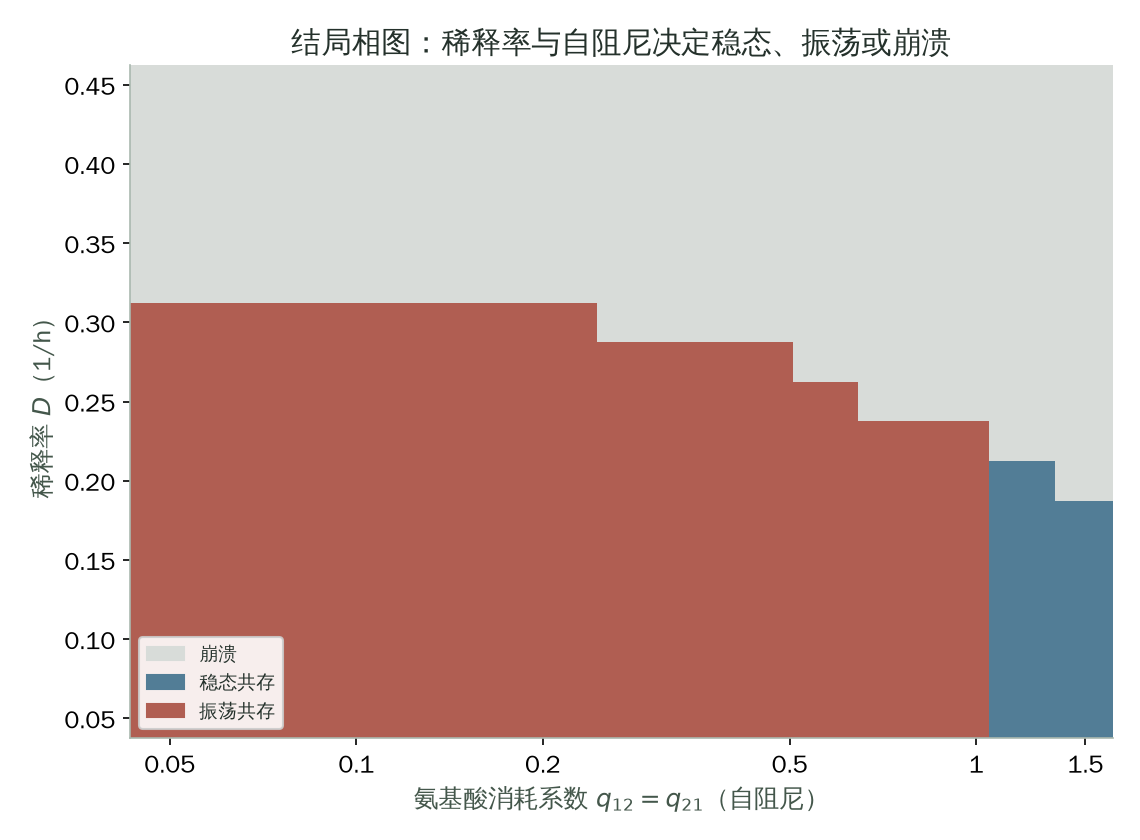
简单乘积条件的必要性来自作者对快资源子系统的分析;本库数值例子则说明,满足它仍可能没有持续振荡。洗出场景满足 $q_{11}q_{22}=1 > q_{12}q_{21}=0.01$,但葡萄糖供应 $R_{3,\mathrm{in}}$ 降到 0.5 后,种群最终衰减到数值灭绝阈值以下。乘积条件并没有保证完整系统能维持所需的资源和种群丰度。补充材料 Note 4 的 Eq. S9 对快资源子系统给出了更完整的双稳态条件:在固定其他参数时,左侧与总丰度 $N_{\mathrm{tot}}$ 成正比,并要求大于稀释率 $D$;资源响应、生产与消耗系数共同决定左侧的比例系数。因此,总丰度减少或稀释率上升都会使该条件更难满足。这个解析条件基于简化模型与快慢分离假设,完整五变量系统的振荡边界在该研究中进一步通过数值分析确定。2 17
欺骗者:稳态的软肋,振荡的铠甲
合作系统的终极压力测试是欺骗者。理论模型早就预言:专性交叉喂养群落会被“双重缺陷型”——两种氨基酸都需要、一种都不生产的菌株——入侵,它耗光公共品、生产者灭绝、整个群落随之崩溃。9 Ross 等把这个预言跑了一遍,再测了它的反例。2
他们的欺骗者是 ΔtyrA ΔpheA 双敲除。这里的证据层次要分开说。2
模型侧:原文先列出入侵后的三类可能结局:群落崩溃、三者共存、欺骗者被排除。随后展示的恒化器模拟设定了无外源氨基酸供给,并假设欺骗者因省去两条合成通路而获得约 5% 的生长优势。在所选稳态参数下,两种氨基酸同时可得,欺骗者利用优势扩大种群,生产者随之衰退,最终资源断供,三方一起崩溃。另一组选定参数使驻留群落持续振荡,两种氨基酸的充足时段相互分离;需要同时获得两者的欺骗者因此持续受限,净增长率为负,被稀释出局。这展示了资源时间结构影响入侵结局的一种机制,并不保证任意稳态或振荡群落都有同样结果。2 17
实验侧:实际构建的双敲除株被接入已经稳定振荡的群落后,群落继续保持原有周期与振幅,欺骗者逐代减少直至几乎消失——振荡群落的排除能力有实验支持。但实验没有确认模型假设的生长优势:富营养条件下三株的 24 小时生长曲线面积比较,既未检出欺骗者的显著优势、也未检出显著劣势(未检出差异不等于证明无差异)。补充图 11c 还有一个有用的对照:在含 20 μM 酪氨酸、30 μM 苯丙氨酸的培养基里,模拟的欺骗者单独培养可以在每日稀释中维持;相同补料背景下,它进入振荡群落后却被排除。这个对照支持群落改变资源可达性的解释,不能把排除简单归因于传代或补料本身。无外源氨基酸是前述恒化器模拟的分析条件,并不是这项排除实验的必要前提。现有实验支持的是这株实际构建的双缺陷菌在该振荡群落中的入侵失败,具有更强生长优势的其他欺骗者是否同样被排除仍需检验。17
把这与 Pande 的结果并置:两项研究展示了不同的入侵结局——Pande 的剥削者(单缺陷型,只吃一种公共品)被负频率依赖容纳,Ross 的欺骗者(双缺陷型,同时抽走两种公共品)在稳态模型里毁掉群落、在振荡群落里被排除。资源需求数量与公共品的可达方式是值得比较的候选原因;但两个体系在菌株、资源、释放机制、培养方式和参数上同时不同,这个并置不足以隔离差异的因果贡献。同样,空间私有化 8、负频率依赖、时间分离是不同体系中分别观察到或提出的稳定化路径——频率依赖本身是增长率随群落组成变化的性质,空间与时间结构都可能塑造它——三者能否互相替代、如何组合,仍需研究。2
条件变化:拨动哪些旋钮会切换结局
把两篇实验和复算的条件敏感性拼在一起,可以画出一张结局地图:
稀释率 / 更新速率。恒化器模型里增大 $D$ 等于给资源浓度加了一层阻尼,压缩双稳态区,振荡区缩小;继续增大到与最大生长率相当,双方被洗出。复算的相图(上图右)显示这个两重边界:振荡 → 稳态 → 崩溃。2
外源资源供应。外源补充氨基酸绕过了“受饿才释放”的反馈。复算中把 $R_{1,\mathrm{in}}=R_{2,\mathrm{in}}$ 从 0 调高,振荡在供应约达需求量的中低水平时消失,系统回到稳态。实验侧的对应观察是:不补充时稳态、中等补充时强振荡、高补充时弱振荡 2——两者方向并不逐点重合(示意参数下专性态即振荡,实验中专性态反而稳态),说明振荡窗口的位置强烈依赖具体参数与反馈增益,复算只支持“供应水平能切换结局”这一定性结论,不支持窗口位置的定量预言。
资源总量。葡萄糖是系统的终极瓶颈:供应不足时振荡振幅大到把种群带到灭绝边界。这不是渐变的退化,而是越过阈值后的整盘崩溃。
进化与胁迫。把镜头拉到进化时间尺度,2025 年的进化营救实验给出另一面的答案:专性交叉喂养菌群在致死胁迫下最快的存活出路不是修复交换,而是拆解互利、恢复自给——分工本身是可被演化逆转的。15 而网络理论提示,多成员交叉喂养网络存在临界点,微小的结构变化可以触发多样性的坍塌式丧失。16
多成员与天然系统。两成员系统是机制解剖的样板,不是群落的常态。酵母的自组织代谢合作群落显示,缺陷型之间的交换网络可以自发组装并涌现群落水平的耐药性 14;降解群落的交叉喂养级联决定组装顺序。两成员系统里干净的判据能否外推到网络,是当前理论的开放前沿。12 16
四种竞争解释,各自管哪一段
题面给出的四个候选机制并非互斥,证据显示它们分管不同层面:
| 候选机制 | 最硬的支持证据 | 它解释不了的 |
|---|---|---|
| 分工带来净生长收益 | 缺陷 +20% 对过量生产 −5~7%,43/54 组合超野生型 1 | 振荡与崩溃何时发生 |
| 废物利用的副产物互利 | 兼性交叉喂养在自然界普遍 12 | 专性交换的成本结构——过量生产实测有代价,不是零成本副产物 1 |
| 空间邻近限制搭便车 | 群落扩张实验与收益私有化 7 8 | 充分混合下负频率依赖已能稳定共存 1;振荡群落无空间结构也排除欺骗者 2 |
| 时间尺度差异产生振荡 | 弛豫振荡的快慢分析与实验共振 2;本库复算 | 稳态共存的情形为何同样普遍 |
要点是:问“代谢交换何时形成稳定分工”,不能期待一个单一机制的裁决。收益账决定分工能否建立 1 5,反馈强度比与稀释率决定稳态还是振荡 2,资源总量决定存活的边界,而欺骗者的结局由公共品在空间、频率或时间上是否可及决定。2 8
缺口
- 交叉抑制的分子起源未定。Ross 等给出两个候选:饥饿下的蛋白降解使芳香族氨基酸积累,或缺陷敲除造成的通量失调漏进高度重叠的相邻通路——补充材料给出了后者的具体版本:ΔtyrA 敲除使胞内酪氨酸耗尽,解除对 DAHP 合酶的负反馈,分支酸(chorismate)不受限地积累,转而推动苯丙氨酸生产。两种解释目前的观测区分不开,而它决定了这个机制在其他氨基酸对上是否普遍。2
- 简化判据到完整系统的边界。快资源子系统已有 Eq. S9 的解析双稳态条件,但它依赖简化与时间尺度分离。作者用数值分析检验它与完整系统的关系;本库的有限参数示例不能替代一般证明,也不说明任意不对称参数都会产生振荡。2 17
- 两成员到多成员的外推未解决。用单培养测出生产/消耗参数、据此预测配对结局的筛选策略刚被提出 2;网络尺度的临界点理论刚起步 16,尚无实验系统的对照。
- 自然群落中交叉抑制拓扑是否普遍未知。合成系统的反馈是基因敲除造出来的;天然群落的释放-限制耦合有多少符合同一拓扑,需要资源动态的时序测量,目前几乎空白。
- 三种稳定化路径的组合关系。本文比较的不同体系尚不足以判断,负频率依赖、空间私有化和时间分离何时增强或削弱彼此;需要在同一体系中进一步区分各自的贡献。
小结
代谢交换形成稳定分工的条件,可以拆成三笔账。第一笔是收益账:Pande 的实验显示,氨基酸由环境提供时,缺陷型相对野生型的适合度收益约为 20%,高于过量生产型约 5–7% 的适合度代价;多数互补配对也确实表现出增长优势。这支持分工有净收益的解释,但这些比例衡量的是特定培养条件下的适合度,不是细胞能量预算的直接测量。1 第二笔是动态账:交换释放若受自身资源限制门控,就构成交叉抑制正反馈;生产与消耗的相对强度、稀释率和资源供应共同影响稳态、振荡与崩溃的边界,简单乘积条件不能单独保证振荡。2 17 第三笔是剥削账:模型在特定生长优势与资源条件下展示了稳态群落被入侵崩溃、振荡群落通过资源时间分离排除欺骗者的对照;有外源氨基酸补充的实验也支持实际双缺陷菌被振荡群落排除,但没有确认所假设的生长优势。17 负频率依赖、空间私有化和时间分离是不同体系中得到支持的稳定化路径,其组合关系在本篇比较范围内尚未厘清。“代谢交换何时稳定”因此需要同时交代收益、资源动态和入侵条件,不能把一种群落的结局直接推广到所有分工体系。