一层不断换人的屏障
肠道和气道表面的上皮,首先是一道连续的边界。细胞之间靠连接结构贴在一起,把腔内环境与下面的组织分开。但组成这道边界的细胞并不永久留下:有的分裂,有的迁移,有的离开。
这里有一个具体难题:让一个细胞退出,同时让剩下的细胞继续连成完整的一层。 如果只清除、不及时封口,组织会漏;如果一直保留,细胞数量和排列又可能失去平衡。
研究者把细胞被周围组织协同推出上皮层的过程称为“细胞挤出”。本文主要讨论向顶端、也就是腔侧排出的情况,比较培养细胞单层、新鲜离体组织、肠道类器官和果蝇上皮。它们能回答相互关联的问题,但实验条件并不相同。1 2
要理解这一过程,需要分清三件事:什么启动排出,为什么轮到某个细胞,以及邻居怎样把空位补上。2025 年的两项研究尤其有意思:一项追到了 ATP、膜电位和体积变化;另一项发现,只要改变周围细胞的收缩能力,原本相同的细胞就可能更容易被排走。3 5
先确认:它是先死,还是先被排出?
早期研究发现,将要发生凋亡的细胞可以通知邻居形成收缩环。凋亡是一套受调控的细胞死亡过程;其中的 caspase 酶活性常被用作观察标记。邻居接到信号后,肌动蛋白与肌球蛋白形成的结构收缩,把目标细胞推出层面,同时让余下的细胞接近、重新连接。2
但“看见一个细胞被挤走”,并不能单独说明它已经死了。
Eisenhoffer 等在 2012 年观察到,正常组织更新和实验性拥挤条件下,被排出的细胞很多没有出现活性 caspase-3 标记。这个结果提示存在另一条路线,但仅凭标记阴性,还不足以证明细胞功能完好。更有力的一步是:研究者把排出的细胞收集起来,放到新的培养基底上,其中一些细胞还能贴附、增殖,重新长成单层;UV 诱导凋亡后排出的细胞则没有同样表现。1
这说明,至少在这些培养条件下,离开上皮层可以先于死亡发生。如果排出后长期没有新的附着位置,多数细胞又会失去存活。因此,“是否还活着”和“是否还能留在原来的组织里”是两个不同问题。
这一区别也改变了选题的方向。组织排走的未必全是已经死亡的细胞;一些仍有活性的细胞,可能因为当时的状态与邻域条件不再相容而被排出。具体是哪一种“不相容”,还需要实验回答。
把上皮挤紧,确实能促使细胞离开
2012 年的研究没有停在“排出常发生于密集区域”这个相关性上。研究者先把一张硅胶膜拉长,让 MDCK 细胞在上面长成连续单层,再松开膜。承载面积缩小,细胞在短时间内变得更拥挤;同时检查细胞连接与基底附着,确认这不是把整层细胞直接撕掉。1
这一操作使局部细胞密度上升约三成,随后出现更多排出事件,数小时后密度回到接近原来的水平。阻断相关的机械敏感通道后,排出减少,密度则维持得更高。斑马鱼实验中,研究者还用可在指定时间启动的手段降低 Piezo1 功能,以减少早期发育异常带来的混淆;排出受阻的区域出现了细胞堆积。1
这些结果支持一条有条件的负反馈:在这一类上皮模型中,拥挤可以促进细胞排出,而排出又缓解拥挤。它尚未回答:同一片区域里,为什么只有某些细胞离开?
执行排出的环节已经有较具体的分子证据。S1P 是一种脂质信号,S1P2 是相应的受体。Gu 等利用受体抑制、基因敲低和混合培养发现,在凋亡排出模型中,受体需要存在于周围的细胞;被排出的细胞自己缺少它,仍可能由正常邻居完成排出。这把“邻居有参与”推进到了“信号需要在哪些细胞中被接收”。后来的拥挤实验也支持 S1P 和收缩通路参与活细胞排出。1 2
能量模型:从一个短暂的缩水现象追下去
Mitchell 等 2025 年的研究,主要使用成熟、拥挤的 MDCKII 单层,并用小鼠离体肺切片作补充。它的起点很具体:将要被排出的细胞,到底先发生了什么?3
一种直觉是,质量更小、承受挤压能力更差的细胞容易离开。但定量相位成像没有发现目标细胞在排出前失去干质量。研究者随后注意到,相差显微镜下,细胞周围的连接区域会短暂变亮。
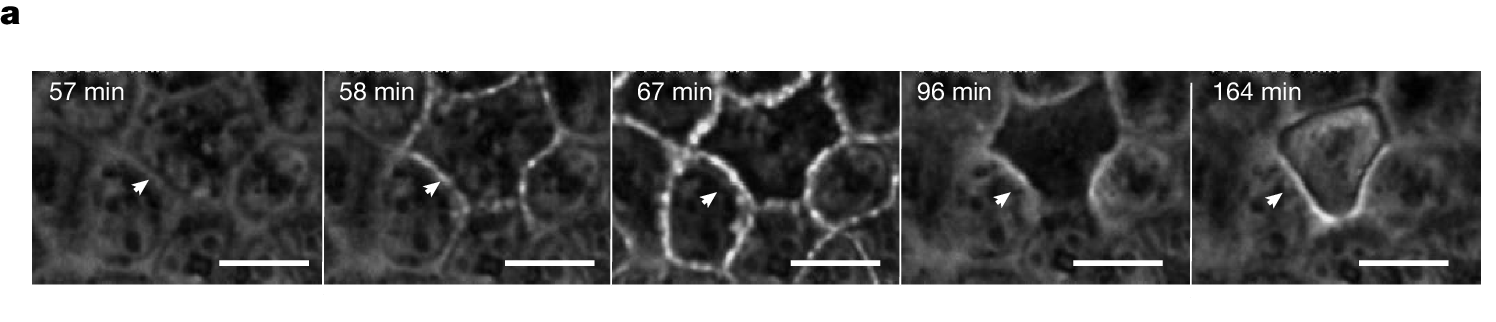
图像出处:Mitchell 等,图1a;CC BY 4.0 许可;裁切记录。
明暗变化本身可能来自形状、体积或光学条件。研究者因此又用细胞内 GFP 的三维成像,以及另一种对缩水有响应的 Calcein 染料,核对了体积变化。结果支持:一些细胞在排出之前,确实发生过短暂的体积缩小。干质量测量未见相应下降,也与这一步主要涉及水分变化相容;这些不同测量并非全在同一细胞中同时完成。3
图中的某次变化发生在几十分钟尺度上,并不意味着所有细胞按同一时刻表行动。更重要的是,缩水、膜电位改变和最后的排出,是可以分别观察、分别干预的事件。
怎样给这些事件排出先后关系
细胞膜两侧有离子分布差异,由此形成膜电位。所谓去极化,可以先理解为原有的电位差发生变化。研究中使用的荧光探针给出的是相关变化的读出,并没有把每个细胞的绝对电压、绝对钠浓度都精确测出来。
在这组实验里,钠相关信号升高、去极化、缩水和排出之间出现了时序联系。更关键的是分步阻断:3
| 干预 | 观察到什么 | 对机制判断的帮助 |
|---|---|---|
| 抑制 ENaC 钠通道,或降低其亚基表达 | 去极化、缩水与排出受到抑制 | 支持 ENaC 参与较早阶段,结合基因干预减少单靠药物的歧义 |
| 用 4-AP 抑制相关钾通道 | 缩水受阻,但去极化仍能出现 | 把电位变化与后续体积变化分开;荧光增强也不只是缩水造成的浓缩效应 |
| 抑制部分较下游的机械敏感通道或收缩过程 | 早期缩水仍可发生,后续排出受阻 | 说明“发生缩水”与“完成排出”不是同一步 |
| 光控开启一种钾通道工具 | 29 个被激活细胞中只有 1 个继续缩水、排出 | 这项操作没有显示可靠的单步充分性,其他条件仍有作用 |
把这些干预放在一起,证据支持一条顺序:拥挤条件下的钠进入,与去极化、钾氯通道参与的体积变化相联系,然后才是完成排出的收缩过程。这里的“参与”不等于每一条分子连接都已被直接测到。
ATP 为什么会影响谁走到最后
持续维持离子差异需要细胞做功,钠钾泵就是其中重要的执行者。ATP 可以理解为细胞反应中可直接使用的一种能量资源。论文提出的模型是:拥挤带来的离子扰动发生后,能维持离子稳态的细胞恢复下来,能量状态较差的细胞更容易持续去极化,并进入缩水和排出过程。3
研究者用 ATP-Red 追踪相关信号,并用另一种基因编码的 ATP 传感器作补充;又通过抑制 ATP 供给提高排出,通过补充葡萄糖降低排出。这让证据超出了单纯的“即将被排出的细胞碰巧信号较低”。
但有两处需要停下来:
第一,钠钾泵是否就是 ATP 变化影响排出的特异中介,还没有被干净地分离出来。 作者尝试直接抑制泵,但处理很快破坏了整层细胞的存活,无法据此完成针对排出过程的特异检验。ATP 也参与很多其他活动,不能因为泵需要 ATP,就把完整因果链视为已经验证。3 8
第二,缩水究竟怎样接上 Piezo1、S1P 和后面的排出,仍有机制缺口。 阻断实验支持顺序关系,作者也明确留下了直接连接的问题。水通过哪些通道转移、形变怎样改变机械敏感信号,都还值得继续研究。
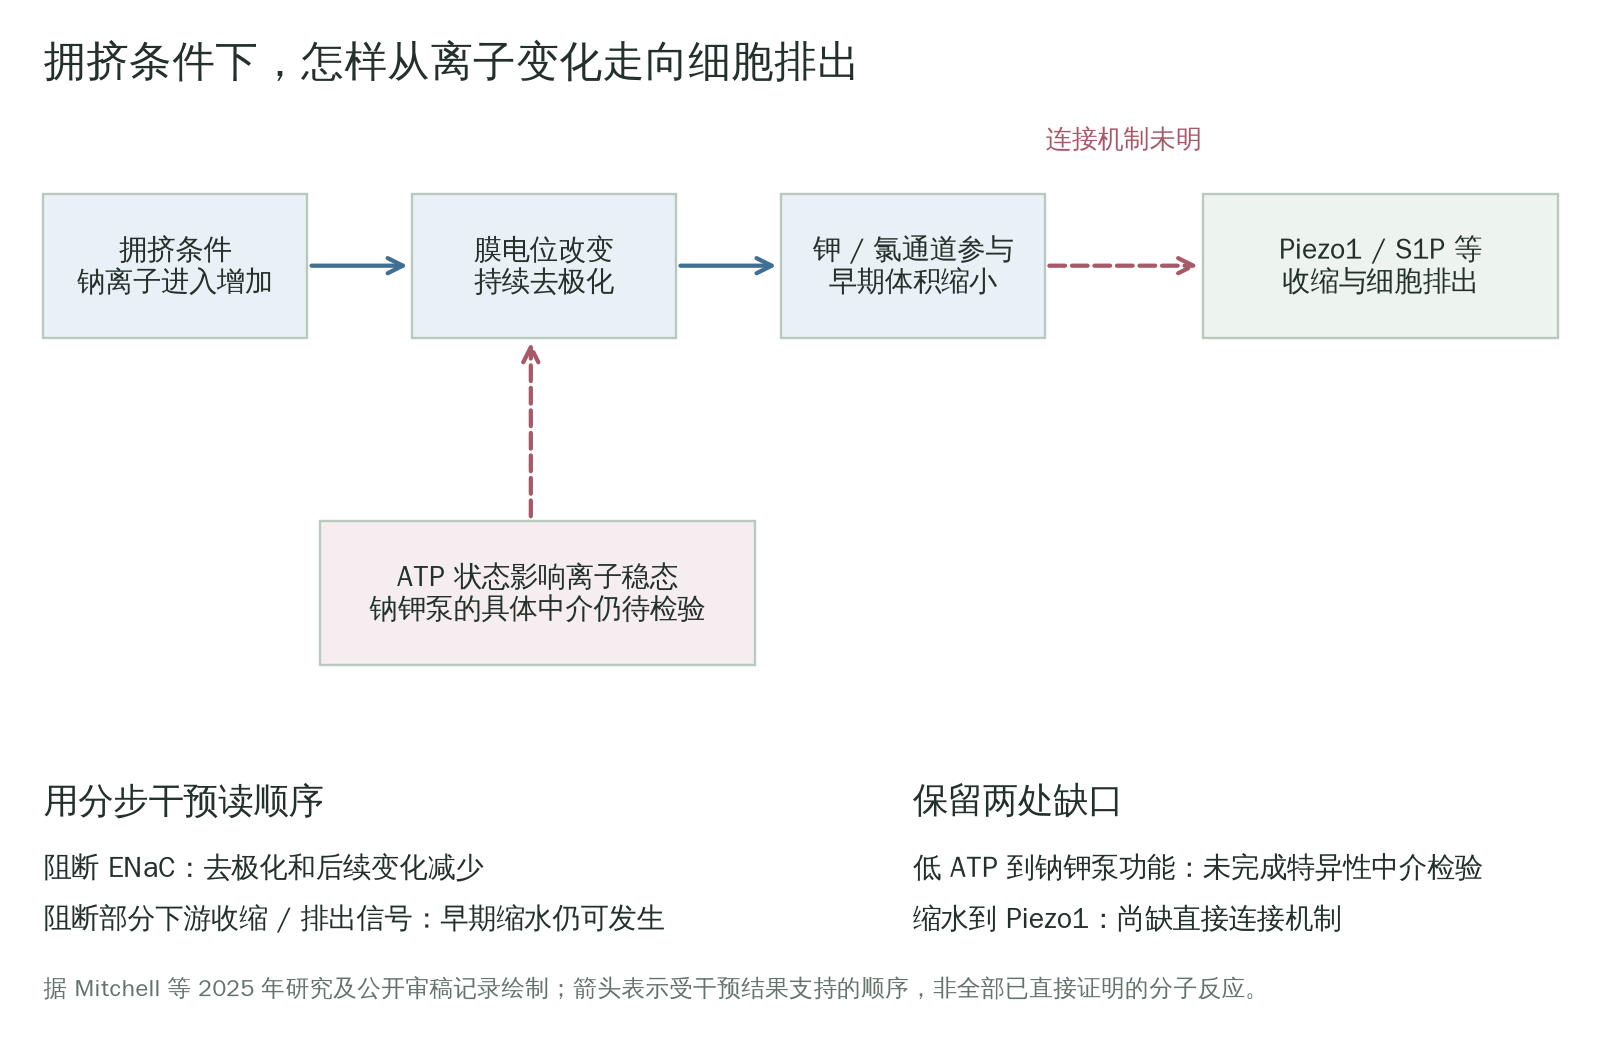
还有一个容易忽略的区别:“ATP 低会影响排出”与“系统会把 ATP 比邻居低的细胞挑出来”,并不是同等强度的结论。 后者需要更直接的局部对照,例如只改变一部分细胞的 ATP,同时控制周围细胞和受力条件。公开审稿意见提出过这种镶嵌操作;最终研究补充了整体提高 ATP 的方向性实验,但没有给出同样完整的受控邻域比较。因此,相对能量选择仍包含模型解释。8
复算一项真实结果:效果有多大
本篇选取 Mitchell 等图4e的公开工作簿做复算:比较对照和 ATP 供给受抑的小鼠离体肺切片,每组各四个原始汇总值。4
按原图的统计口径,对照平均每 1,000 个上皮细胞有 40.74 次排出,ATP 抑制组为 99.79 次;两组均值之比为 2.45。这里说的是该处理与观察窗中的统计量,不能直接外推为完整动物的日常组织更新率。
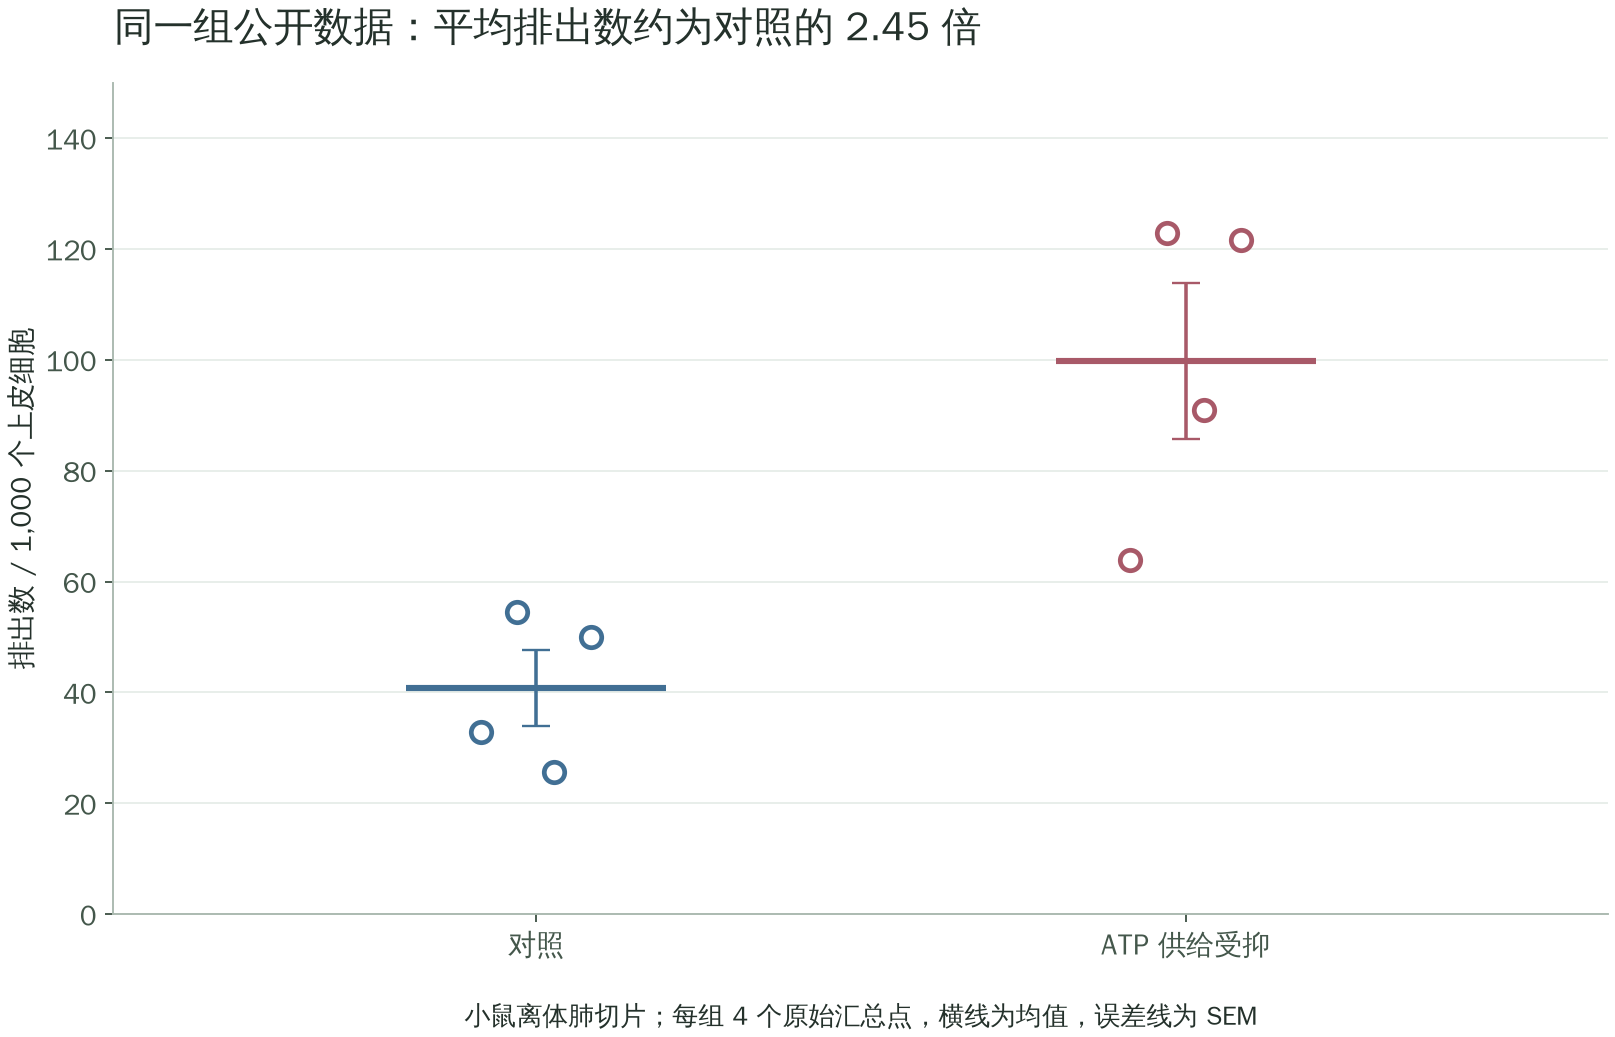
使用与原图一致的双侧、非配对等方差 t 检验,复算得到 $p=0.00930$,与图注的 0.0093 相符。改用不要求两组方差相等的 Welch 检验,得到 $p=0.0168$。这些结果支持这组数据中的方向和量级;四个重复点仍然很少,统计显著也不会自动证明 ATP、钠钾泵、缩水之间的全部连接。
原始工作簿还有一条很有用的脚注:图4e和高渗处理的图1n共用了对照数据。两种干预仍提供不同的信息,但不能把两张图称作两套完全独立的重复实验。表格也没有标出每个值对应哪只动物或是否配对,因此本次没有把同行的两个数强行配成一对。
本篇提供整理后的数值与原始单元格位置和完整计算结果。复算脚本为 research/calculations/epithelial_extrusion_data.py。这是对同一份数据的复核,不是新增了一次独立生物实验。
换一批邻居,细胞的去留就变了
同在 2025 年,Krueger 等研究了小鼠肠道和肠道类器官。他们注意到,排出事件并不总是集中在局部最密集的地方。这提示,“细胞一路移动到绒毛顶端,最后被挤得装不下”可能不足以解释这个系统。5
要区分受压和受拉,研究者在新鲜取出的肠组织中做了激光切割。如果被切断的结构原先承受拉力,切口两侧应向外回缩。实验在绒毛顶端和侧面都观察到了这种回缩,支持这些基底区域存在张力。这里的新鲜组织实验是离体条件下进行的,不能写成直接在完整活体小鼠中完成所有操作。
进一步成像发现,细胞基底有连成网络的肌动蛋白与肌球蛋白结构,而且收缩并非恒定不变:某个细胞收紧时,邻居的底面积可以变大;它放松时,关系又会改变。组织因此可以整体承受张力,而每个细胞的出力不断变化。
真正把“相对能力”讲清楚的,是后面的三类干预。
让一侧邻居更能收缩
研究者给部分细胞装入光控系统,用光把相关蛋白招募到细胞膜,增强肌球蛋白介导的收缩。照亮合成绒毛的一半,就人为制造了“收缩增强的一侧”与“没有增强的一侧”的交界。5
排出更容易发生在交界附近,尤其是没有增强收缩的那一侧。缺少诱导条件的照光对照,没有相同的结果,这减少了把效应完全归于照光损伤的可能。
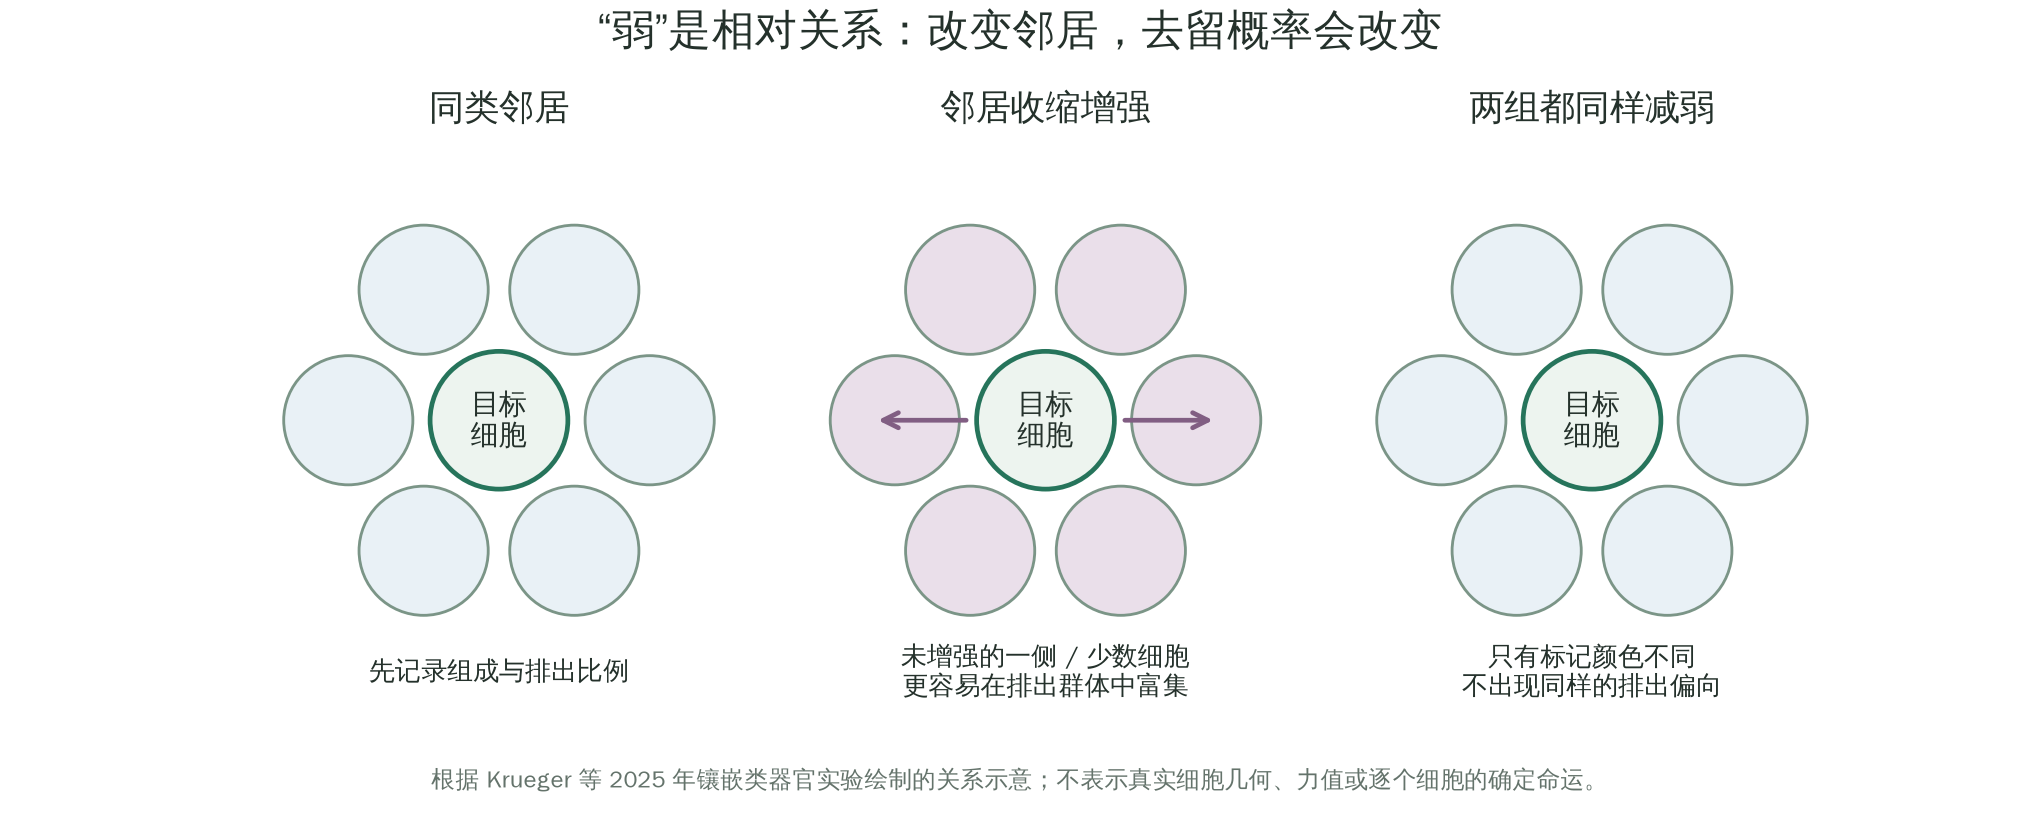
这个实验的意义是:目标细胞没有被直接增强收缩;改变周围细胞的收缩条件,就能改变它的排出倾向。 “相对较弱”由这段邻域关系体现出来。
保持目标细胞不变,改变周围的组成
接着,研究者把普通细胞和可光控增强收缩的细胞混在同一个类器官中,改变它们的比例。如果一种细胞占总体的十分之一,不能只看它被排出了几个;需要比较它在“被排出者中所占的份额”和“在整个类器官中原先所占的份额”。论文把两者之比称为排出富集。5
当普通细胞是多数时,其排出比例大致与自身数量相称;当更强收缩的细胞逐渐成为多数,普通细胞在排出群体中变得过度代表,论文报告了约四倍的富集。这个四倍是构成比例之比,不是说每一个普通细胞的绝对死亡概率都增加了四倍。
研究还反过来削弱部分细胞的肌球蛋白功能。它们与普通细胞混合后,更容易在排出群体中富集;但如果两种标记颜色都来自同样被削弱的细胞,偏向就不再出现。这既检查了相对关系,也控制了单靠颜色标签造成差异的可能。5
局部削弱受力结构
另一组实验把激光刺激分别施加于细胞基底皮层或细胞核。破坏基底皮层后,目标细胞先发生基底扩张,随后更容易排出;针对细胞核的相应刺激没有产生同样的排出效果。执行排出时,目标细胞和邻居都能出现肌球蛋白积累;整体抑制收缩,则会降低或拖慢完成排出的能力。5
激光实验仍是一种急性扰动,不能独自排除所有损伤效应。但它与局部光控、混合细胞比例和遗传削弱的结果相互配合,使“邻居间相对收缩能力影响去留”的解释,比单看一个相关性图更有说服力。
这也解释了一个表面上矛盾的现象:单独削弱某个细胞,可能让它更容易被排出;把整个组织的收缩都压下去,却可能让排出更难完成。前者改变了局部能力差,后者还削弱了执行排出的组织力量。决定谁离开,与有没有能力把它移走,需要分别看。
局部压力,也可能来自细胞的排列
平均密度还漏掉了另一个层次:细胞怎样排列、怎样共同移动。
Saw 等 2017 年研究了有明显取向排列的上皮单层。“拓扑缺陷”在这里并不是某个细胞有基因缺陷,而是许多细胞的朝向在某些位置无法平滑接起来。研究者把基底牵引测量反演成单层应力,发现部分这样的区域会集中压缩应力,并与随后出现的凋亡和排出相关。6
他们还改变培养区域的几何边界,让特定位置更容易形成这些排列结构,排出热点也随之改变。反方向的检查同样重要:直接诱导细胞凋亡,并没有相应增加这些缺陷;抑制 caspase 后,缺陷仍在而排出大幅减少。这支持“先有局部结构与应力,再触发该类凋亡排出”的方向,而不是只凭一张共定位图作判断。
这项工作主要讨论凋亡相关排出,与前面的活细胞排出不能直接合并;应力也经过了反演模型。但它提供了一个可复用的认识:同样的平均细胞数,不保证同样的局部受力。 判断谁会被排出,需要知道它所在的邻域结构。
排走一个以后,旁边怎样保持封口?
知道谁容易离开,还不等于解释了组织怎样保持完整。如果相邻细胞连续同时退出,收缩与重新连接就可能来不及配合。
Valon 等在果蝇蛹的背部上皮中,用光控工具启动指定细胞的 caspase 活性。单个细胞或排成一列的细胞,可以比较顺利地退出;三个或更多细胞在短时间内成团退出时,更容易出现异常收缩与暂时松开。研究者没有只靠组织“看起来有个洞”下结论,还注入荧光标记的葡聚糖,观察到了连接区域的暂时渗漏。7
自然发生的排出却很少这样扎堆。追踪显示,一个细胞开始退出后,直接相邻的一圈细胞常出现约一小时的 ERK 信号升高,随后发生 caspase 活性的抑制。这种活性变化通过报告系统的动态读出判定;研究也使用了不同的 ERK 传感器互相核对。
仅有这种先后关系,还不能说明 ERK 负责保护。更强的一步是降低 EGFR/ERK 通路的作用:邻居的保护性变化消失,局部排出更容易成团,并出现与人为成团排出相似的封口问题。在研究选定的后部区域,总死亡率没有测出显著改变,事件的空间和时间安排却变了。7
这里值得记住的是:组织不仅要调节排出多少,还可能需要调节相邻细胞何时排出。 只统计总数,会看不到维持连续性的重要机制。
这不是一个对全部组织都成立的“三细胞禁令”。肠道类器官研究中,局部破坏相邻细胞的受力连接,也能诱导两个或三个细胞共同排出,并保留部分连接完整的迹象;它的组织、触发方式和完整性读出,与果蝇的凋亡成团实验不同。5 同样,果蝇中的 ERK 保护时空范围,也不能原样套到每一种上皮。
把不同实验放在一起,能得到什么解释
这些研究讨论的是相互关联的组织维护问题,但“弱细胞”在其中并不是同一把尺子。
| 实验系统 | 比较的关键量 | 较有力的证据 | 仍需保留的界限 |
|---|---|---|---|
| 拥挤的培养单层,辅以离体肺切片 | ATP、离子相关信号、膜电位与体积变化 | 分步阻断、基因敲低、降低和提高 ATP 供给的方向性结果 | 相对 ATP 选择、钠钾泵中介和缩水到 Piezo1 的连接尚未完整分离 |
| 肠道类器官与新鲜离体肠组织 | 基底张力、细胞及邻居的相对收缩能力 | 切割回缩、局部光控、混合比例与同型标记对照 | 不等于所有组织都受拉;局部机械削弱也不能直接等同 ATP 不足 |
| 有取向结构的培养上皮 | 局部排列与反演应力 | 几何控制热点、时序与反向干预 | 主要是特定条件下的凋亡相关排出,存在测量与模型前提 |
| 果蝇蛹上皮 | 邻居的 ERK/caspase 动态与排出时空分布 | 定点诱导、通路干预与渗漏读出 | 保护范围、触发方式和跨物种推广都需要重新检验 |
较稳的结论是:上皮细胞并不只由自身某个固定属性决定去留。邻居的出力、组织的受力方式、细胞维持离子与结构状态的能力,以及排出后周围细胞的反应,都可能改变结果。
本文进一步的整合判断是:组织稳态可以通过持续改变局部成员和相互作用来维持,而不要求每个细胞永久保留原状。 这个理解得到上述实验的启发;它不是说这些系统已经被一个统一方程或唯一通路完全解释。
哪些下一步实验最有区分力
对能量路线,最有价值的补充之一,是受控地只改变部分细胞的 ATP,再分别改变邻居的 ATP,同时记录受力与排出。这样才更容易区分绝对能量不足、相对差异,以及两者与组织压力的交互作用。某些细胞为什么先出现 ATP 下降,其更早的代谢或局部环境原因,也尚未被这条排出路径完整解释。8
对两条 2025 年路线的关系,需要在同一个系统里同时观察或操纵能量状态与收缩能力。肌球蛋白需要 ATP,并不能直接证明两个实验发现其实是同一个机制;低 ATP 可能影响很多环节,而相对拉力差也可以通过其他方式产生。
对离子到排出的连接,则需要更直接地测量缩水前后 Piezo1、S1P 和机械状态的变化,并寻找能把它们拆开的干预。已有研究中的钠进入和去极化并非总能在同一个细胞中同时记录,完整时间线也还有提升空间。3
到这里,问题已经从“组织会不会清除坏细胞”变成了可以继续实验的几个小问题:什么状态被检测,什么差异被邻居放大,哪条通路负责执行,以及排出怎样与重新连接配合。我们已经能讲清其中不少环节;剩下的缺口也有了比较明确的位置。