眼前只有几个分子,为什么还能测浓度
设一个半径 1 微米的球形范围,处在浓度为 1 纳摩尔每升的溶液里。换成分子数密度,这约是每立方微米 0.602 个分子,整个球里平均只有 2.52 个分子。单看一眼,得到两个还是四个,可能只是随机出入造成的差别。
但细胞不必只看一眼。扩散会持续带来分子,受体也会留下结合、离开的时间记录。Berg 和 Purcell 1977 年问题的核心,就是这些随机记录能支持多精细的浓度判断。1
这里先约定:测量目标是在观察期间基本恒定的浓度 $c_0$;“相对误差”指重复测量所得估计值的标准差除以真实浓度。如果估计本身有偏差,还要另看偏差或均方误差,不能只用分布窄来代表准确。本文研究浓度的大小,不把浓度梯度方向、配体种类识别或趋化行为混成同一种任务。
最容易混淆的还有仪器本身。下面三种模型能看到的记录不同:
| 模型 | 实际记录什么 | 是否改变分子环境 |
|---|---|---|
| 完美吸收球 | 到达球面后被捕获的分子数 | 会移除分子,在附近形成浓度降低 |
| 可逆结合受体 | 何时空闲、何时结合、何时解离 | 有结合和释放,可能再次遇到同一分子 |
| 理想无扰监测器 | 某个区域内的分子数,或更细的位置记录 | 不吸收、不阻挡分子;可假定不识别分子身份 |
比较一个“感知极限”,必须连同这张表里的条件一起比较。1 2 5
扩散送来的信息,不能按拍照次数计算
先看最容易算清的完美吸收球。在三维无限溶液中,远处浓度维持为 $c_0$,分子独立扩散,扩散系数为 $D$。半径 $a$ 的吸收球在稳态下每秒捕获的平均分子数是:
每个分子一旦被吸收,就不能回来重复报到。在这一理想计数模型中,观察时间 $T$ 内的捕获数服从泊松统计,因此浓度估计的相对方差为 $1/(JT)$,相对标准差为 $1/\sqrt{JT}$。1 2
用开头的浓度和半径,再选 $D=100$ 平方微米每秒、$T=1$ 秒作示意,平均捕获数约为 757,对应相对标准差约 3.64%。这和“球内平均只有 2.52 个分子”并不矛盾:前者是改成吸收球后在一段时间内累计捕获的数量,后者是未受扰动溶液中某一瞬间的平均数量。参数是为说明量级而选,不能当作某种细菌的实测精度。本篇计算
如果改用不影响分子的监测器,连续拍照会反复看到同一批分子。相隔很短的两帧,不能算两次独立抽样。对区域内分子数 $n(t)$ 的时间平均,误差由自相关函数决定:
$C_n(t)$ 描述一次偏高的计数在过了多久后仍然倾向偏高。若观察时间远长于有关衰减时间,可写成近似形式 $2\operatorname{Var}(n)\tau/T$,其中 $\tau$ 是归一化自相关的积分。按这个定义,有效独立测量数约为 $T/(2\tau)$,并不是相机帧数。1 5
这也解释了为什么连续记录很长时间有用,而无限提高采样频率未必有用:后者可能只是更密集地记录同一次分子逗留。
同一份受体记录,换一种算法就能更准
现在只看一个可逆结合受体。先把扩散再结合放到一边,假设空闲受体以速率 $k_+c_0$ 等待结合,占用受体以速率 $k_-$ 等待解离。两个速率常数已知,浓度恒定,各轮等待彼此独立。这是一个两状态随机过程。2
浓度越高,空闲时等到下一次结合所需的时间越短;而已经结合的分子多久后离开,在这个模型里由 $k_-$ 决定,不依赖外界浓度。于是,同一份记录里,不同部分携带的信息并不相同。
最直观的估计是先算占用比例 $\hat p$,再反推浓度:
但占用比例同时受空闲时间和占用时间影响。如果某一次结合碰巧持续很久,比例法就可能把这部分随机性误读成“外面的浓度更高”。
Endres 和 Wingreen 2009 年直接对结合时序写出似然,得到另一种估计。记 $n$ 次结合之前的空闲时间总和为 $U$,则:
也就是用“结合了几次,空着等了多久”来估计结合速率。这里不是把所有占用期间的信息一概宣布无用,而是利用了本模型中解离速率不含待估浓度这一条件。若要识别配体种类、估计其他动力学参数或处理更复杂的受体,任务会改变。2
在长记录、上述假设成立时,两种方法的相对方差分别趋近于 $2/\bar n$ 和 $1/\bar n$。改进的是方差约减半;标准差变为原来的 $1/\sqrt2$,约降低 29%,不是误差减半。2
本篇用同一批模拟记录检查这个结果。每份记录包含 50 个完整的“空闲加占用”周期,观察时长随记录变化;自选参数下平均时长为 150 秒。因此,这是一项固定周期数的比较,不能把它直接当成所有记录都测了 150 秒的实验。
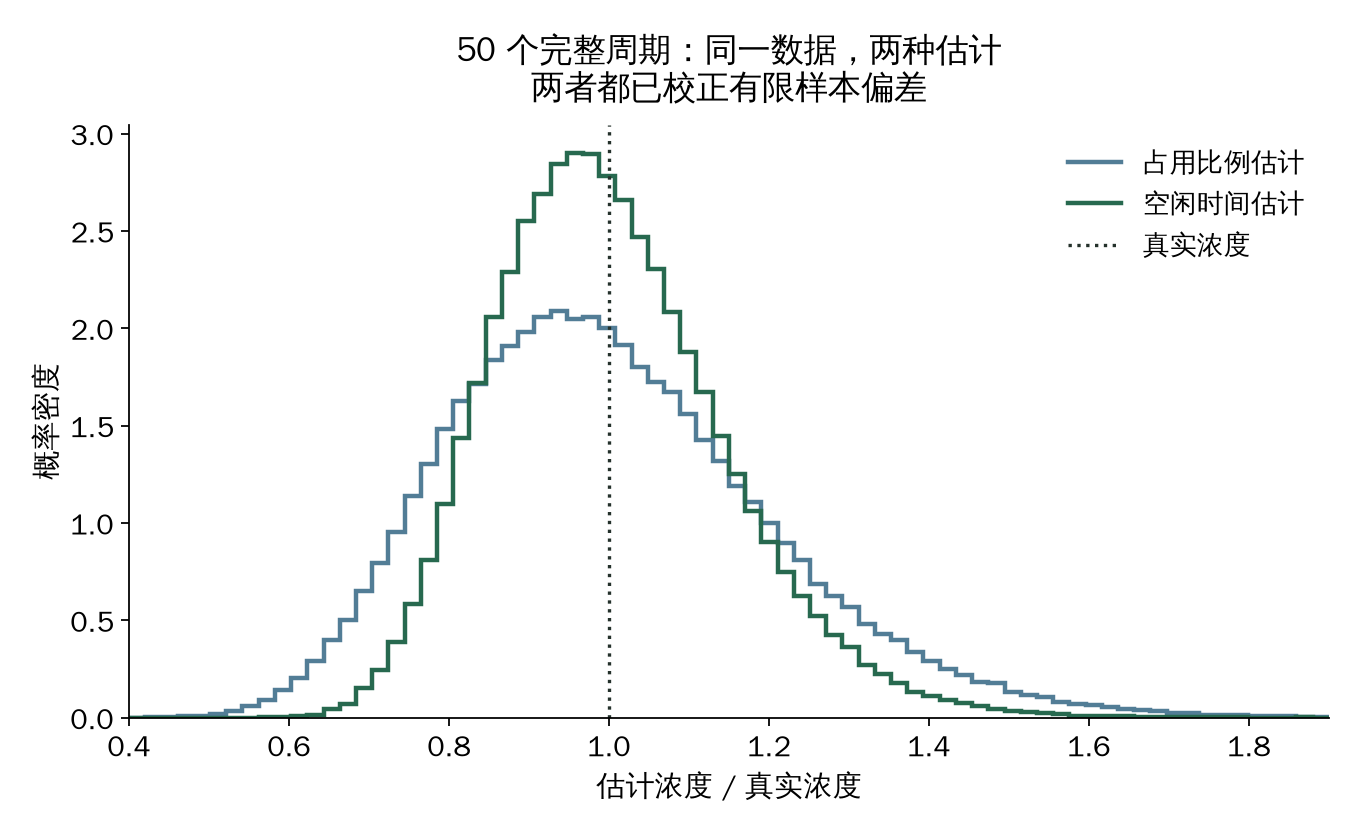
还有一个不能省略的小细节:取平均等待时间的倒数,会引入有限样本偏差。在固定 $n$ 个周期的协议下,原始最大似然估计的均值是 $nc_0/(n-1)$;50 个周期时约高估 2%。本篇将两种估计都乘以 $(n-1)/n$,再比较无偏后的方差。利用等待时间总和的 Gamma 分布可得,当 $n>2$ 时:
50 个周期下,模拟得到的相对标准差分别约 14.5% 和 20.3%,与解析值相符。它说明可用记录没有变,处理方式仍会影响精度;也说明长记录近似不能不加检查地套给极少事件。本篇计算
再结合、受体数量和忙碌时间各限制什么
真实扩散环境中,刚离开的分子可能还在附近,随即又结合。把这种快速往返全部当成新的独立样本,就会高估信息量。需要识别的不是分子带不带某个编号,而是下一次结合是否仍被前一次的局部状态强烈影响。
2005 年 Bialek 和 Setayeshgar 用涨落耗散方法联立扩散与结合动力学,将扩散噪声和反应噪声分开处理。4 后来 Kaizu 等用扩散影响反应理论和粒子模拟指出,单受体结果中受体空闲概率的处理很重要,尤其在占用率高时;不能把早期近似里的系数当成所有条件下不变的常数。3
Kaizu 等给出的直观处理是:当快速再结合与较慢的体相到达可以分离时,把一串快速往返并成一个较长的有效占用阶段,重新定义有效结合和逃离速率。它们的模型及模拟支持这种粗粒化,但对解离后周围配体的分布仍有近似假设,并不是任意浓度、任意多受体体系的精确解。3
三种常见改进于是有了不同的作用:
- 缩短占用时间:受体更快空出来,能接触新的配体;但过快解离是否损害识别或下游信号,要另行评估。
- 吸收、内化或降解配体:减少重复返回的机会,同时改变了观测装置和物质收支。
- 增加受体:在近似独立时增加采样机会;密集后会共享同一批扩散供给,不能一直按独立受体数线性增加信息。
第三点在经典吸收模型里已有清楚例子。若半径 $a$ 的细胞表面分散着 $N$ 个半径 $s$ 的小吸收斑块,Berg–Purcell 给出的近似捕获率为:
少量、分散的小斑块近似各自贡献;数量很大时,总通量趋近整个吸收球的通量。在该几何与稀疏覆盖近似内,多加受体不能超过“外界总共送来多少”的约束。公式也提示受体的分布位置重要,不能只数个数。1
封闭空间为什么改变精度
细胞内部、组织小腔室和狭窄通道,不总像无限溶液。McCusker 和 Lubensky 的研究针对固定总分子数、反射边界、无扰计数器,计算了探头大小和位置对精度的影响。其预印本发表于 2024 年,期刊版发表于 2025 年;本篇公式核对的是公开预印本及其附录。5
最小例子是一条长度为 $L$ 的封闭一维区间。分子不能穿墙,但能自由穿过探头;这里的浓度 $c_0$ 是单位长度内的平均分子数。对宽度同为 $0.02L$ 的小探头,本篇用扩散本征模级数复算:在长观察时间极限,贴墙探头的时间平均方差是正中探头的 4 倍。两处单次计数的统计相同,差别来自计数随时间的相关性。墙限制了分子向一侧离开,局部记录的更新变慢。5
还有一个更反直觉的对照。以区间中心为中点,同样覆盖跨度 $a$,可以让整段区域参与均匀平均,也可以只用两个端点附近的微小探头等权平均。令 $x=a/L$,两者的相对方差乘以共同因子 $6c_0DT/L$ 后,分别为:
当 $a=L/4$,整段方案得到 0.5625,两个端点方案得到 0.4375;后者方差约低 22%。当跨度超过 $L/2$,顺序反过来。更大范围带来的空间平均收益,与时间相关性的改变,需要一起计算。5
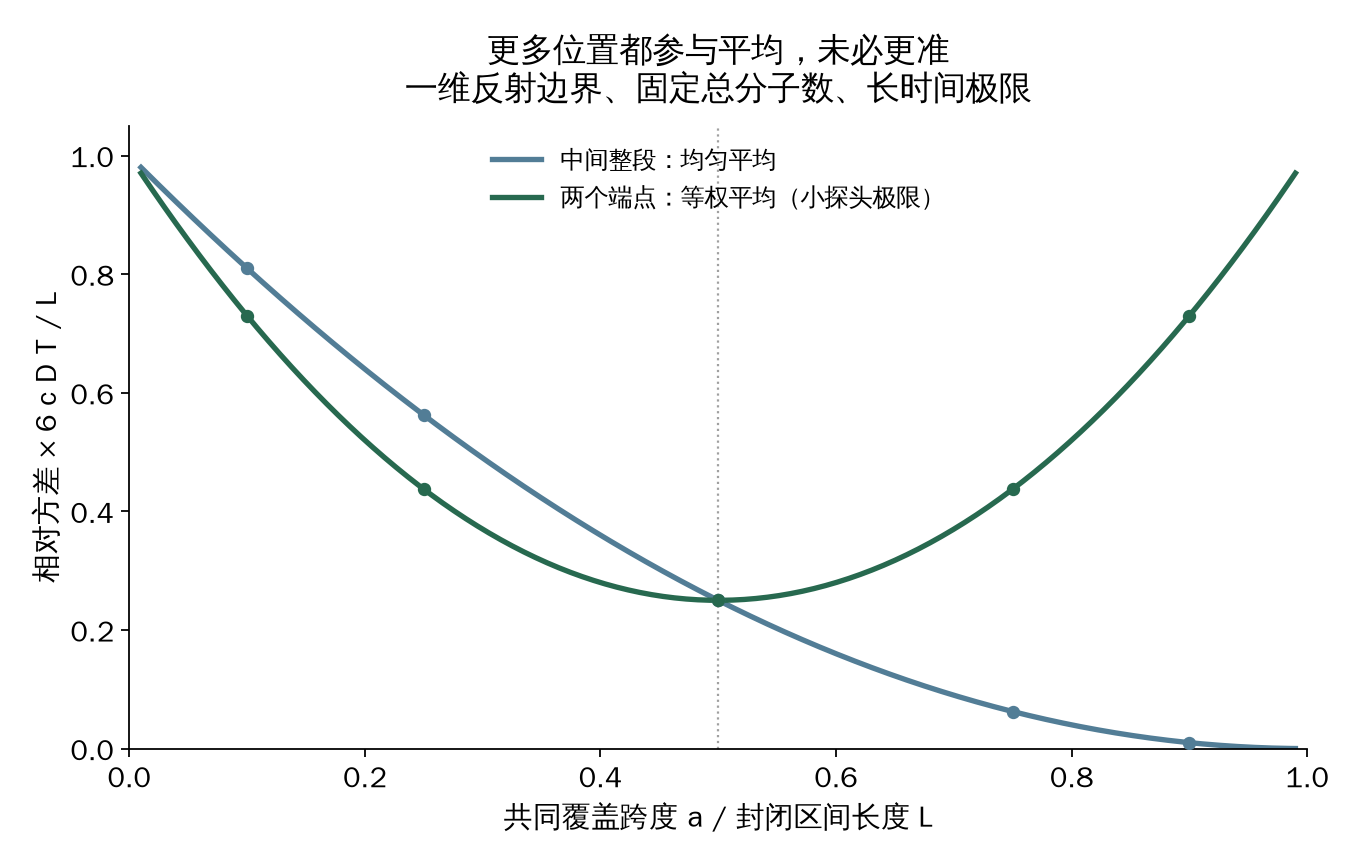
这不意味着更多原始数据本身有害。 大监测器如果保留每个位置的记录,完全可以选择只使用端点,复现小探头的算法。上面的比较限制了平均方式;把不同位置一律等权相加,才可能把相关性更强的部分一起带进结果。这是从比较条件得出的判断,不是论文已经证明“大探头天生更差”。
另一个边界也必须保留:这是一维、有反射边界、总分子数固定的模型,所用长时间式要求 $T\gg L^2/D$。当探头覆盖整个封闭区间时,一次就能数到固定的总数,方差趋零;无限浴里局部分子数的泊松涨落不能直接套到这一极限。5
新进展:监测整个球,为什么可能只给表面权重
2026 年 8 月,Jafarpour 的预印本把“如何利用空间记录”直接写成优化问题。仪器不吸收分子,也不识别它们的身份,但知道球内每个位置的瞬时分子密度。在均匀时间平均、空间加权、无偏的估计量这一类中,怎样选权重才能使方差最小?6
三维独立扩散的长时间相关核与 $1/|\mathbf r-\mathbf r'|$ 成正比。因此,误差最小化与一个静电问题具有相同的数学形式:固定总权重,就像固定总电荷;让自能最小的分布集中在导体表面。球内各位置等权的经典结果,可以由边界薄壳加权进一步改善。6
这里“表面”是理想可穿透薄壳的极限,不是吸收球面,更不是反射墙。对于相同的半径 $a$、扩散系数、外部浓度和长观察时间,两种监测法的相对方差分别是:
后者是前者的 5/6:方差降低约 16.7%,标准差降低约 8.7%。它仍不是前文吸收球的 $1/(4\pi Dac_0T)$,因为分子仍可重复进入观察区域。6
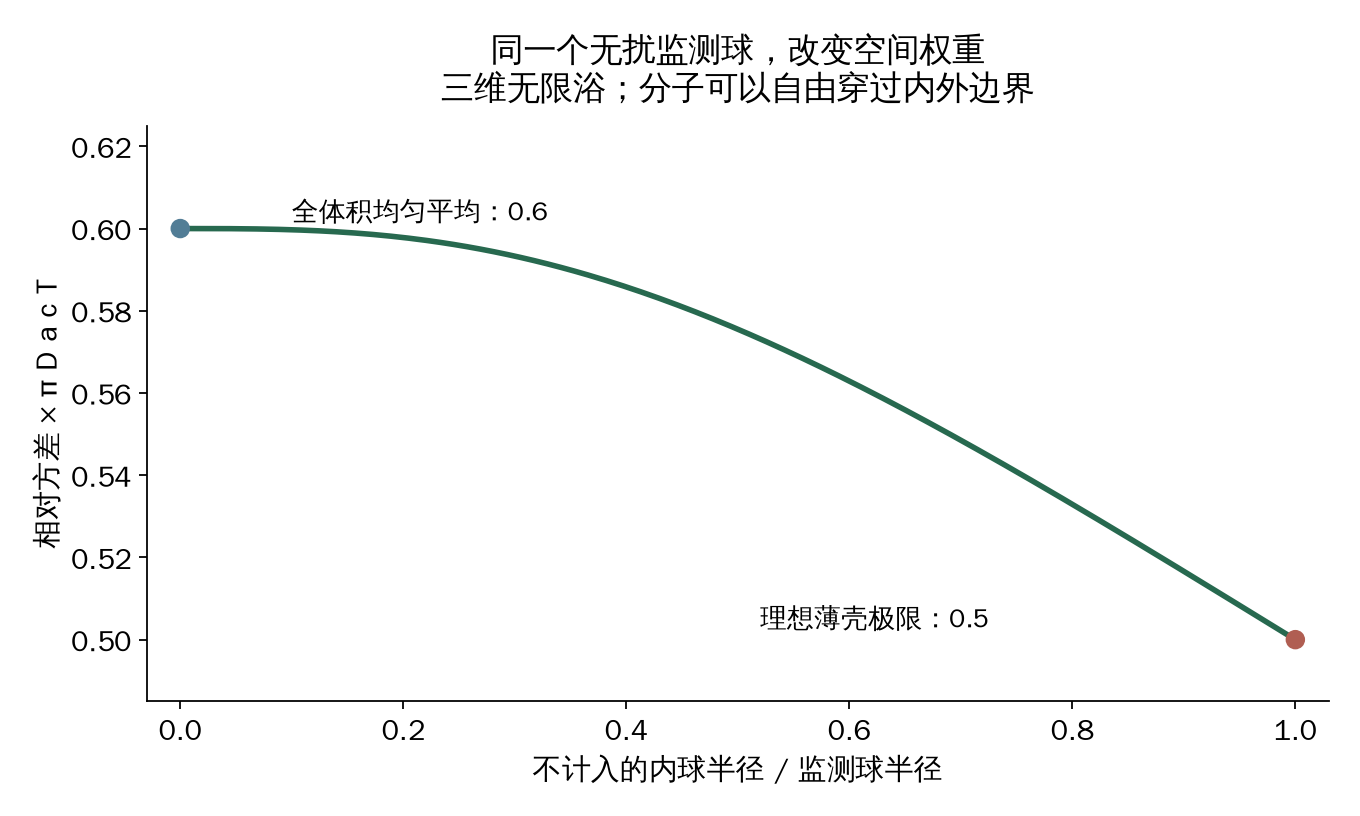
薄壳越薄,某一瞬间里面的分子越少,单帧噪声反而很大;但分子穿过薄壳也更快,相关时间缩短。两者结合,长时间平均的方差保留有限极限。6 因而上一节“反射墙附近可能更差”和这里“观察边界加权更好”并不冲突:一个改变分子的运动,另一个只改变如何读取同一场。
这种加权要求仪器保留位置记录。如果它从一开始就只输出“整个球里一共有几个分子”的总数曲线,事后无法从这条曲线恢复表面信号;因此不能把增加可用记录与改进后处理混为一谈。
截至本篇检索时,这项结果仍按预印本处理。本篇核对了浓度部分和相关附录推导,但结论范围仍是其规定的理想估计量类别;它不证明所有可能的估计器都已最优,也不证明真实细胞能以无限空间分辨率实现薄壳读出。
从物理界到真实细胞,还隔着什么
这几组结果可以归结为三个具体问题:外界送来多少新的统计信息,记录之间相关多久,细胞保留并利用了记录的哪一部分。扩大受体覆盖、延长等待或改变估计量,分别改变其中不同环节,不能互相冒充。
真实细胞还要把受体状态转成下游分子状态。受体很多但记录容量不足,或者积分时间很长却不断丢失旧信息,都可能让最终精度远差于理想记录器。领域综述把受体与时间、下游读出分子、能量供给列为需要分别考察的资源;这些代价不包含在本文的理想时序或空间加权计算中。7
观察时间也不能无条件越长越好。前面的精度式针对恒定浓度;若要追踪正在变化的环境,长平均会混入过时信息,优化目标必须同时考虑追踪误差与响应延迟。梯度、流动、分子相互作用和受体合作也会改变这里的条件。7
因此,要判断某个真实系统是否接近极限,需要测到相应的浓度、扩散与结合动力学、实际读出时间和输出噪声,并说明比较的是哪一种仪器与估计量。本文没有把这些理论边界换算成某种细胞已经达到的精度。它较稳地回答的是:有限分子并不只限制一瞬间的计数;感知精度还由信息更新、相关结构和读出方式共同决定。