组织大了一倍,原来的位置线索还够用吗
设一块发育中的组织有一条基因表达边界,最初位于全长的三分之一处。组织长度增加一倍后,如果这条边界仍要处在三分之一,距离起点的绝对长度也必须增加一倍。
细胞怎样完成这种调整?它们并没有先获得一张标好总长度的地图。在不少发育系统中,局部细胞释放信号分子,其他细胞通过接收信号、相互调节和改变基因表达,形成不同区域。信号常随离来源的距离增加而降低,形成形态发生素梯度。1
这里研究的“相对位置”,主要指表达区域与细胞命运边界在组织中的比例。组织可以通过细胞生长、分裂或重排变大,信号梯度和下游读出也可能随之变化。并非每个已分化细胞都必须重新读取同一条梯度。
关键问题是:组织的大小变化,怎样进入局部的信号产生、传输、清除和读取过程,使最终边界仍出现在合适位置? 我们以果蝇翅成虫盘的Dpp系统为主,比较原始实验与2026年的反馈理论;不预设所有发育图样都由同一种机制产生。
梯度变宽,还需要配合浓度幅度
先用一个常见的近似走完最小例子。若信号从一端产生,扩散并以近似恒定的单位分子损耗率被清除,在合适的边界与稳态条件下,可以出现指数形状:
$A$ 是源端浓度幅度,$D$ 是有效扩散系数,$k$ 是单位分子的有效清除率,$\lambda$ 决定浓度下降的长度尺度。这里的有效参数可以概括多个分子过程,不必等于某一步单独测得的速率。1
如果某个基因边界由固定浓度 $C_\ast$ 确定,那么:
$L$ 为组织长度,$r_\ast$ 为相对位置。这个式子告诉我们:只让梯度的长度尺度随组织变大,还不一定够;幅度的变化也会移动阈值位置。
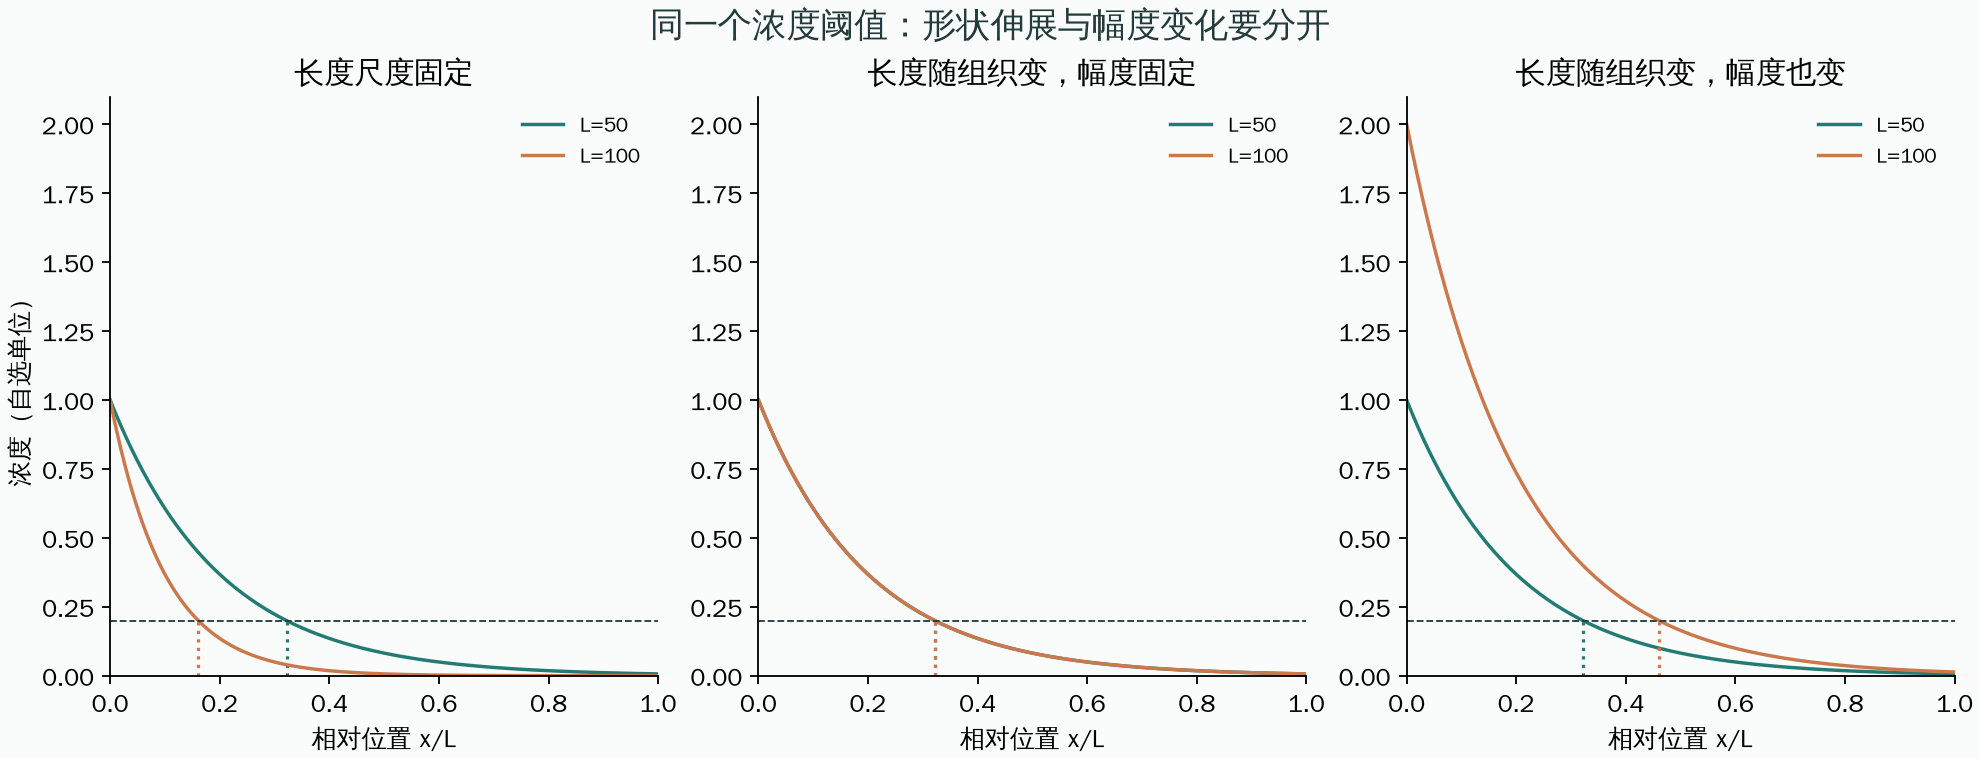
图中统一采用阈值0.2。在中间情形,组织长度从50变成100,阈值始终位于约0.322的相对位置;若幅度同时增加一倍,位置就会移到约0.461。这些数字由本库直接计算,目的是辨认形状与幅度的不同作用,不是发育组织的实测坐标。
这也解释了为什么把两条曲线都除以自己的峰值后再比较,可能隐藏问题。各自归一化能够检验形状,却抹掉了细胞在固定浓度阈值下可能真正感受到的幅度差异。只有在下游确实采用归一化或相对信号读出的条件下,这种处理才对应生物机制。
同时,不要把这个例子升级成“任何没有反馈的系统都不可能按比例形成图样”。例如,没有体内清除、两端浓度固定时,纯扩散稳态可以是 $C(x)=A(1-x/L)$,直接具有相对坐标形式;但它依赖两端边界和体内损耗可忽略这些特殊条件。5
一个反馈回路,怎样让信号范围与组织大小发生联系
2010年Ben-Zvi与Barkai提出的“扩展—抑制”机制提供了一条具体过程链。5
设第二种分子叫扩展因子。它可以减少信号分子的捕获或清除,也可以改变有效传播,使原有梯度伸得更远;反过来,较高的形态发生素信号又抑制扩展因子的产生。
从一个较短的初始信号范围开始,远处细胞接到的信号低,就继续产生扩展因子。扩展因子积累并传播,让形态发生素到达更远处;新收到足够信号的细胞,又降低扩展因子的产生。组织边界与低信号区域的空间范围,就通过这条回路影响最终梯度。
在扩展因子传播较广、损耗较慢的极限下,它会持续积累,直到远端信号接近能够关闭其产生的水平。这相当于把“还有多少地方信号不够”的信息,逐渐记进扩展因子数量,再用它调节信号范围。论文将其与积分反馈联系起来。5
这个解释的承重条件很清楚:扩展因子真的能改变传播,形态发生素真的能反过来调节它,以及扩展因子的空间分布和时间尺度符合要求。画出两根反馈箭头并不自动保证比例保持,源的变化和浓度幅度仍要检查。
果蝇实验:Pentagone参与了过程,但不是一句话就能定位全部机制
Dpp是果蝇翅成虫盘中的重要信号分子。它激活受体后的细胞内信号,可以用磷酸化Mad,即P-Mad,来观察;P-Mad是通路活动读数,不能直接当成细胞外Dpp浓度本身。
2011年的研究追踪不同发育阶段和位置的P-Mad梯度及下游表达边界。正常组织中,一些读数随组织变大而扩大;在缺少Pentagone的条件下,P-Mad的空间范围在较早阶段之后不再继续跟上增长,某些下游边界的比例保持也明显减弱。2
它说明Pentagone在这些条件下对尺度调节很重要。但影响不是所有下游读数完全一致:同一研究中,一些表达边界比另一些保留了更多尺度适应。梯度、通路活动和最后的基因边界,不能用同一项指标替代。
到了2020年,Zhu等提出更有区分力的检验:如果Pentagone承担的是早期模型中几乎均匀分布的扩展因子,它的作用应该能够较广地传到组织另一侧。实验却看到,限制在一个区室的改变主要影响该区室;带标记的蛋白分布和未标记蛋白的局部作用,也支持它在所研究条件下具有较短的作用范围。3
研究进一步改变Dpp受体Tkv和协受体Dally的反馈调节,发现分别取消这些调节会削弱尺度适应,同时取消时影响更强。只在Pentagone通常发挥作用的区域改变相应细胞表面功能,也能模拟一部分Pentagone效应。这支持受体、协受体与局部捕获过程参与了组织尺度调节,而不只是一个均匀扩散分子在全场“报尺寸”。3
这项研究还观察到尺度适应并非持续到发育终点:按其对后区室长度与P-Mad表观衰减长度的测量,关系在较晚阶段停止继续同比增长。因而,一个解释如果只会让梯度无限随组织扩大,却不能解释为什么在特定阶段停止,也是不完整的。
被细胞收进去的信号,不一定就退出传播
2022年的另一项Dpp研究把问题推进到细胞内外的转运。研究者标记已进入细胞内部的Dpp相关分子,观察它们随后在相邻区域重新形成分布,支持内部化的信号可以重新释放并参与传播。4
随后,研究结合多种测量约束一个包含细胞外游离、膜结合、细胞内可回收和不可回收部分的模型。分析提示:从小盘到大盘,已内部化分子对有效传播的贡献增加,Pentagone对结合与转运的调节参与了这一变化。这里说的是回收途径对整体传播的贡献,不能简化成“某个回收速率必然越来越快”。
模型中的一些速率通过多个实验共同推断,并非每一个都直接独立测到;信号受体与主要内部化通路的关系,也不是一一对应。这与2020年的受体反馈解释有需要进一步对照的部分。我们可以确认细胞表面的捕获与细胞内外转运都值得纳入,却不能把两套模型参数机械相加,宣称已经找到唯一的完整Dpp尺度回路。3 4
2026年的新问题:扩展因子自己有梯度,会怎样
早期模型中,较均匀的扩展因子有利于让组织共享一种调节。但真实候选分子的浓度可能随位置明显变化。Mosby与Hadjivasiliou在2026年建立新理论,问这种不均匀性是否一定妨碍尺度适应,还是能带来不同的调节方式。6
他们的模型保留两条作用:扩展因子降低形态发生素的单位分子损耗率,形态发生素抑制扩展因子的产生;另外允许扩展因子浓度升高时,其自身的单位分子损耗率也降低。后一点是一个理论环节,需要在具体分子系统中另行验证。
把浓度按模型中的参照单位表示,本库计算采用的形式为:
$M$ 是形态发生素,$E$ 是扩展因子。每行第一项表示空间扩散,第二项表示损耗,第三项表示产生。扩展因子的单位分子损耗率随浓度下降,但总损耗 $\mu E/(1+E)$ 仍会随浓度增加而趋于饱和,不能说成分子越多、总清除越少。
模型还规定了源区宽度 $\beta L$,两端不允许扩散流出,并假设梯度建立比组织生长快,因而可以比较不同大小组织的稳态。6 本库取 $\beta=0.2$,即源区占全长五分之一。这是一项输入条件,不是反馈已经自行解释了源区为什么按比例生长。
不均匀反馈的一个潜在作用,是将不同位置的任务分开:源附近的扩展因子较低,形态发生素幅度较少受到扩展因子积累的放大;远处扩展因子较高,则继续改变有效损耗与信号范围。这样,源端的幅度与目标区域的传播尺度,可以不必像均匀调节时那样紧紧绑在一起。
实际算出的两个例子:改善发生在什么位置
本库独立求解了上述双场方程。两组例子只改变扩展因子的扩散系数,其余参数相同;每组分别计算长度50和100的固定组织,源区依照前述条件同比增加。参数是用于解释的自选数值,不是Dpp与Pentagone的实测常数,也不是原作者参数扫描中的最佳样本。
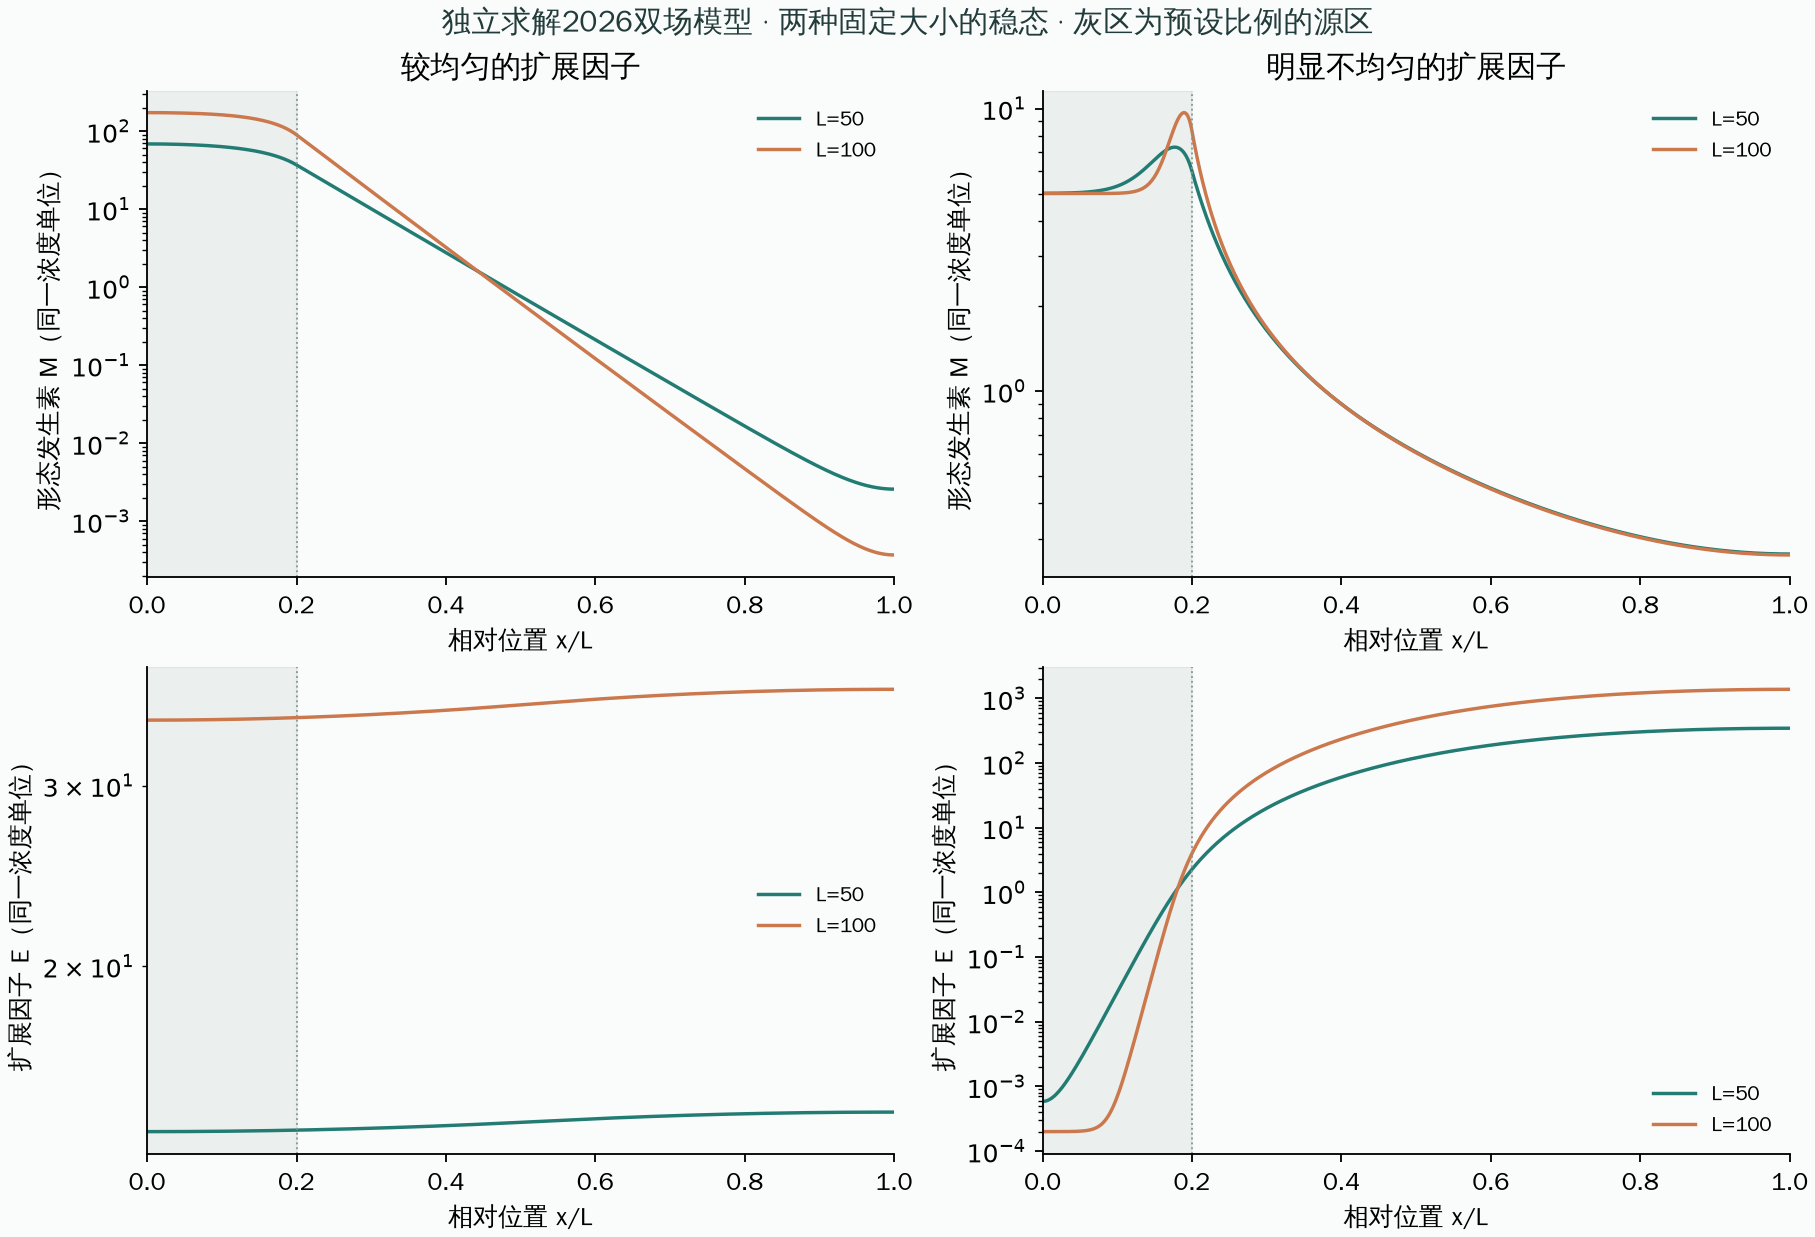
扩展因子较均匀的例子中,源区左端的 $M$ 随组织变大由约68.5增至172.5。信号范围虽扩大,幅度也显著变化,不同浓度阈值的相对位置便朝不同方向移动。
扩展因子明显不均匀的例子中,左端 $M$ 大致保持在5附近,远端 $E$ 则从约346增至1384。目标组织中相当一段区间的 $M$ 曲线,在相对坐标下更接近。不过源区边缘的峰值仍变,最末端也有偏差,不能称为整个组织处处完美缩放。
要比较得更直接,可以在每个模型的小组织中选择一个浓度阈值,再在大组织里坚持使用同一阈值。下面的图对一系列阈值重复这个过程;不同模型对应同一初始位置的绝对浓度可以不同,比较的是各自同一阈值在大小变化中的位置保持。
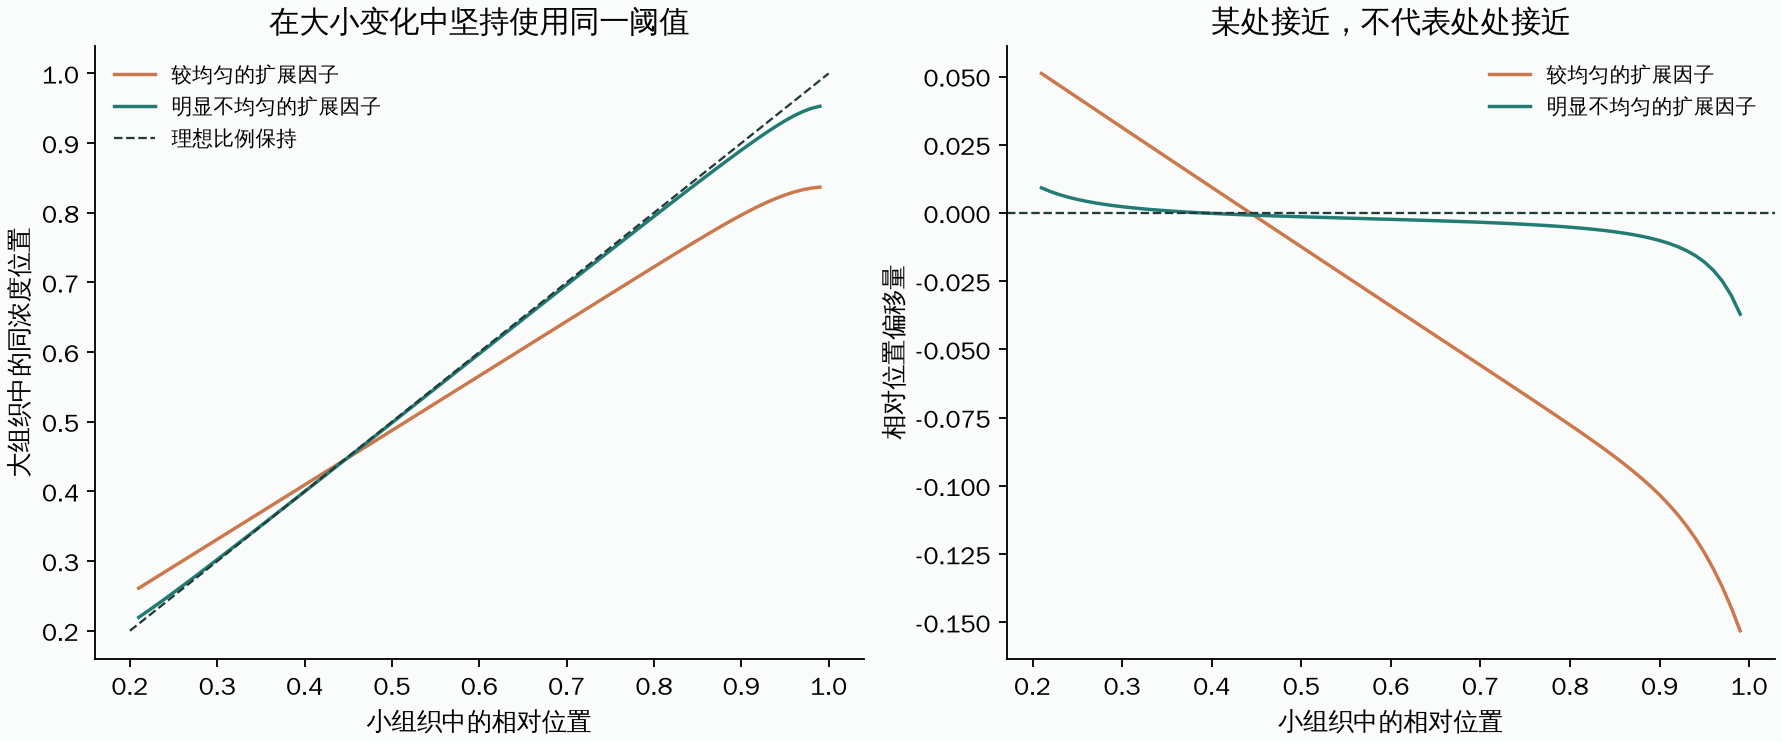
例如,原本位于全长80%处的阈值,在较均匀扩展因子例子中移到约72.2%,相差全长的7.8%;在明显不均匀的例子中移到约79.5%,相差全长约0.52%。网格从400格加密到800格,所检查位置的最大差异约为全长的0.002%,远小于这里的主要比较差异。
这个计算支持的是一条有条件的机制:空间不同位置采用不同强度的反馈,可以改善多个阈值的比例保持。 它没有证明扩展因子越不均匀越好,也没有模拟一个真实翅盘从小长大的全过程。图中接近边界时偏差增加,正说明评估必须沿位置进行,不能只挑一条曲线相交的点代表全场。
这组比较还受本文采用的损耗形式和源区规则限制。均匀扩展因子与其他非线性清除或源区调节组合,也可能取得更好的尺度适应;不能用本库两个参数例子排除这些方案。6
能保持比例,不一定读得准,也不一定调得够快
| 性能 | 实际在问什么 | 比较时改变什么 |
|---|---|---|
| 尺度适应 | 组织大小变化后,同一读出边界是否保持相对位置 | 组织尺寸 |
| 对扰动的稳健性 | 产生速率等发生变化后,边界是否还能维持 | 其他参数 |
| 位置精度 | 细胞读数有噪声时,边界本身有多不确定 | 测量或分子噪声 |
例如,一条梯度在组织变大后能很好地保持形状,但末端非常平。那里一点点浓度误差,就可能对应很大的位置差异。对小误差作局部近似:
因此,“浓度对大小变化不敏感”与“浓度能精确区分相邻位置”不是同一种好处。2026年论文也发现,在其参数扫描中,不均匀扩展因子能够改善多处尺度适应和部分扰动稳健性,但在某些区域会牺牲位置精度。其精度是根据稳态浓度和局部斜率构造的噪声指标,并非直接实测细胞定位误差,也不是在模型中显式模拟了全部随机过程。
而且稳健性要说明针对什么扰动。对信号产生速率更稳,不代表对扩散、清除或其他参数都同样更稳。论文对不同扰动得到的比较并不完全相同。6
时间尺度也是实质条件。组织增长太快时,尚未建立好的梯度无法被当成新尺寸的稳态;若组织缩小,旧扩展因子还需要被清除或重新分配。积累能够提供记忆,但过于持久的分子也可能拖慢纠偏。本文计算中等待收敛的时间只是自选模型单位下的求解过程,不是实际胚胎的调整时长。
最后的边界还取决于细胞怎样读信号
固定浓度阈值是一个清晰、可检验的起点,但真实表达网络未必只看一个瞬时浓度。
2011年果蝇研究就比较了不同表达边界处的P-Mad与Brk信号,发现它们并不总在发育中保持同一个浓度值。下游可能同时整合多个调节因素,反应阈值也可能随发育阶段改变。因而,一条梯度没有严格同比缩放,并不自动说明最终组织图样不能保持比例;反过来,单独一条漂亮的缩放曲线,也不证明细胞只用这一条信号读位置。2
时间积分、刺激持续时间、多个信号的组合,以及组织生长和细胞状态变化,都可能参与。具体要采用哪一种解释,需要把信号、受体活动、基因表达边界和后续形态放到同一套测量里比较。
本篇得到的机制图是:组织大小经源区、几何边界与细胞间传输改变浓度分布,局部反馈再调节捕获、清除和转运,下游表达网络据此形成边界。 细胞不必逐个获得一个全局长度数值,但这种机制也不是无条件的。
目前实证较稳的是Dpp尺度调节需要具体的分子与细胞过程,而且有发育阶段和空间位置限制。2026年新理论扩展了不均匀反馈的可能性;本库计算展示其一条可行路径与边缘偏差,尚未证明真实组织完整实现了模型中的每个反馈环节。更有用的后续检验,是同时测源区、扩展因子自身分布、有效转运与最终表达边界,并分别改变组织大小和其他参数。
本库计算代码位于 research/calculations/morphogen_gradient_scaling.py;可下载参数与结果、800格稳态剖面、阈值位置比较、指数剖面例子与收敛和收支记录。