会长大的液滴,离“能接着繁殖”还差哪些环节
设想一个小液滴:它把一些分子集中在内部,内部反应产生更多信息载体,液滴随之变大,然后分成两个较小的滴。这个画面很像细胞,但要让两个子滴继续做同样的事,还需要追问:原料从哪里进来,为什么会分开,哪些东西分到了哪一边,以及下一轮的催化能力还在不在。
本篇研究人工区室中的这些具体连接,不裁定哪一种模型就是生命的起点。我们以2025年的一套水相两相液滴为主,再用其他原始研究比较分裂、物料交换和后代继承。1
“自主”也需要说明口径。真实细胞同样需要外部物质和能量,所以需要供料并不自动否定自主性。这里更关心:在给定环境中,过程能否由系统自身的反应与状态推进,还是每到一个关键步骤,都要实验者重新组装、切换条件或替它分开。
还要把两件事分开:几项能力分别在不同体系里实现,与它们已在同一个体系中构成可持续的循环。
入口体系:两种都是水溶液,却可以分成不同区域
Minagawa等人的2025年研究使用PEG与右旋糖酐DEX的水溶液。在合适的组成下,它们分成PEG较多与DEX较多的两个液相,其中的DEX富集相可以形成微小液滴。2
这不是一个脂质膜包住水的囊泡。液滴与外部都是含水溶液,界面来自相分离;不同分子在两相中的偏好不同,于是一些核酸和反应组分更容易富集在滴内。
这种区室有一个直接优点:不必先建造复杂膜转运系统,就有机会让外部物料进入内部。它也带来同一个问题的另一面:能进能出,如何让属于这个区室的信息和催化组分别过快流失?
本篇先看增长。研究的关键发现不是“DNA能被装进液滴”,而是DNA的存在反过来改变了PEG/DEX体系的相分离条件。
作者比较有无DNA时两相如何随稀释而消失,发现DNA能在一定组成范围内使两相状态更容易维持,较长DNA的作用更明显。将内部DNA扩增与液滴结合后,就有了一条可检验的因果链:内部反应改变核酸状态,核酸影响相分离条件,液滴因而从周围获取更多组成物并长大。
这不意味着新增DNA本身变成了全部新增体积。原研究观察到,液滴增长时DEX浓度大体保持,支持DEX从外部继续进入;DNA更像是在改变组成物愿意停留在哪个相里的条件。其具体分子作用仍可能涉及多种物理机制,不能把“内部压力”这个说法直接当作一项已单独测定的渗透压定律。
怎样确认增长确实与内部反应有关
只看到滴变大,不能立刻认定内部复制在驱动。两个滴合并、较小滴向大滴转移物质,甚至新滴进入观察平面,都可能改变看到的大小或数量。
2025年研究因此做了几类相互补充的比较:连续追踪单滴增长;移去关键复制反应条件后检查增长;再用降解DNA的反向干预,观察已经长大的滴是否缩小。2
这些结果支持复制与增长之间存在实际联系。其中,降解DNA后出现缩小,但没有完全返回最初体积,说明过程不能简单理解为“DNA加多少体积就增加多少,拿走后原样回去”。周围溶液和两相共存条件也已经参与了变化。
研究还做了不同层次的内部反应体系。滚环扩增可以产生越来越长或分支化的DNA产物,帮助液滴显著增长;它与复制出长度、拓扑保持的模板分子,不是同一种结果。另一组体系进一步把基因表达与后一类DNA复制耦合起来,也观察到了增长。
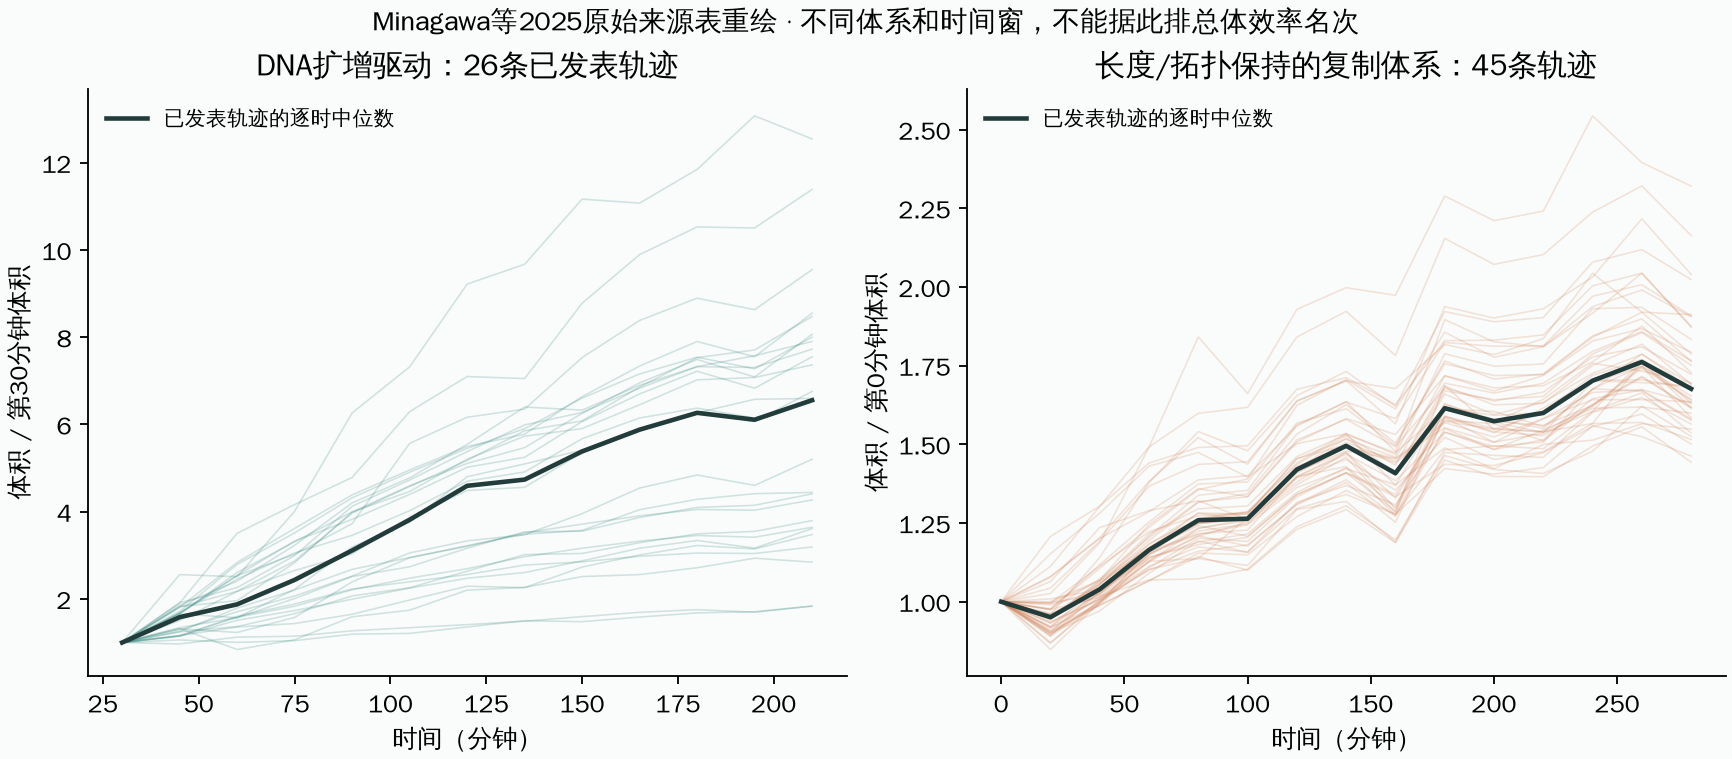
本库直接读取公开来源表,保留每条轨迹,没有重做显微图像分割。右图45条轨迹在280分钟的均值约为初始体积的1.71倍,液滴间样本标准差约0.18;论文正文将相应增长概括为约1.8倍。二者并非完全一致,不能把表中液滴数量当成45次独立实验,也不能自行补写差别来自哪里。2a
这一进展已经把“信息载体复制—区室增长”的一段链条接起来。但其中的无细胞表达装置和多项组分仍由实验体系提供,不能据此说液滴已会制造和更新所有必需部件。
浓度不再升高,不代表总量停止增加
这里有一个很容易读错的信号:滴内DNA浓度先接近平台,滴体积却继续增加。
浓度描述的是“每单位体积有多少”,总量还要乘上体积。若滴内浓度足够均匀,可以写:
体积增长与DNA总量增长相互配合时,浓度可以保持大致稳定。相反,如果体积增长得更快,浓度甚至可能下降,而总量仍在增加。
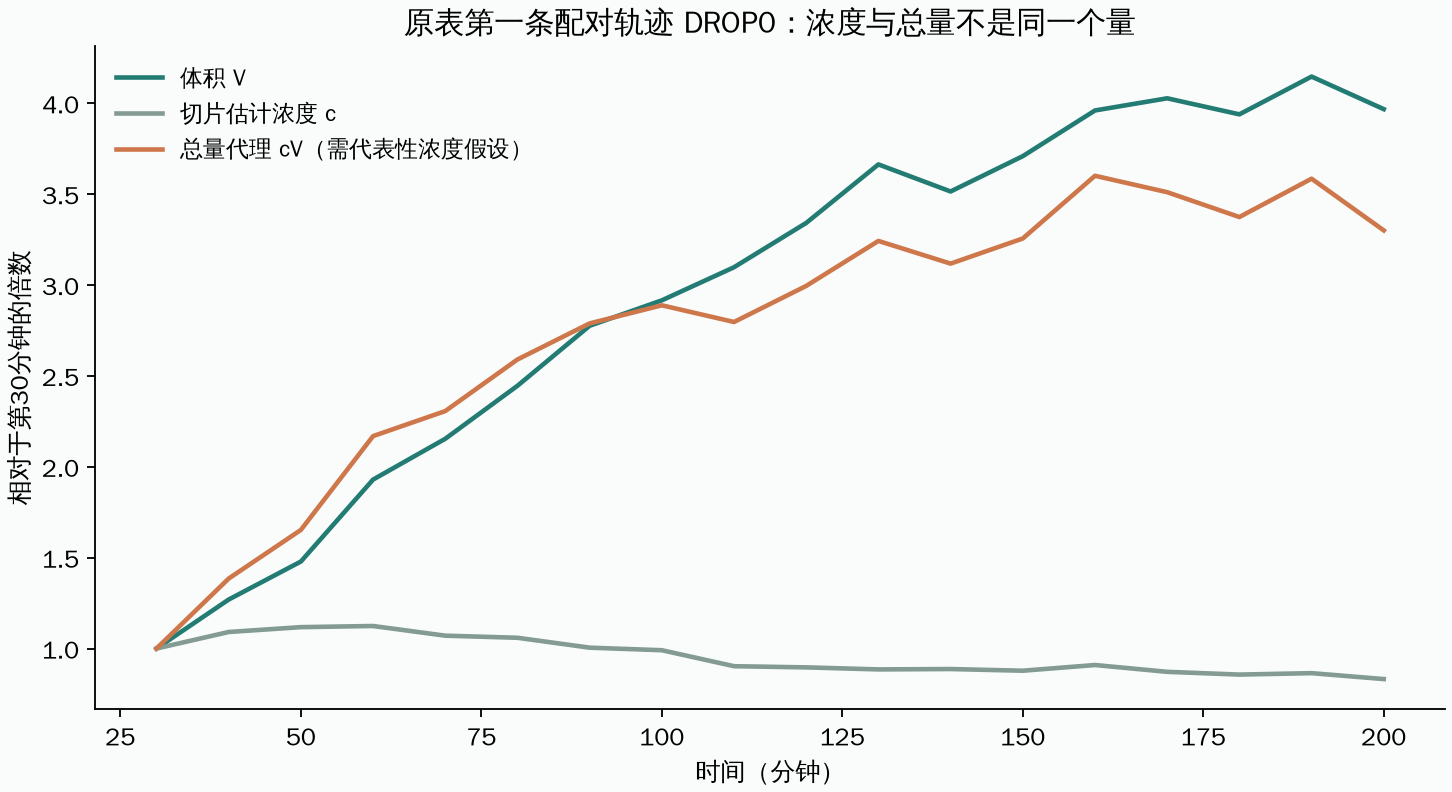
在这条公开序列的100—200分钟区间,体积增加约36%,测得的浓度反而下降约16%;二者乘积仍增加约14%。这足以说明,不能从浓度平台或下降直接推出复制已经停止。
但也不能把本篇的乘积计算当成精确的DNA总量复测。原实验体积来自三维层扫图像,DNA浓度则根据特定高度切片的荧光与标定关系估计。如果DNA形成局部团簇,这个切片未必代表全滴平均。公开配对表还有少量负的浓度估计值,本库原样保留;它们是估计与校准问题,不是物理上有负的DNA。
对复制—增长耦合,真正要比较的是分子数量、浓度、区室体积及其空间分布,而不是只看其中一条曲线进入平台。
长大不会自动带来分裂:界面需要另一种驱动
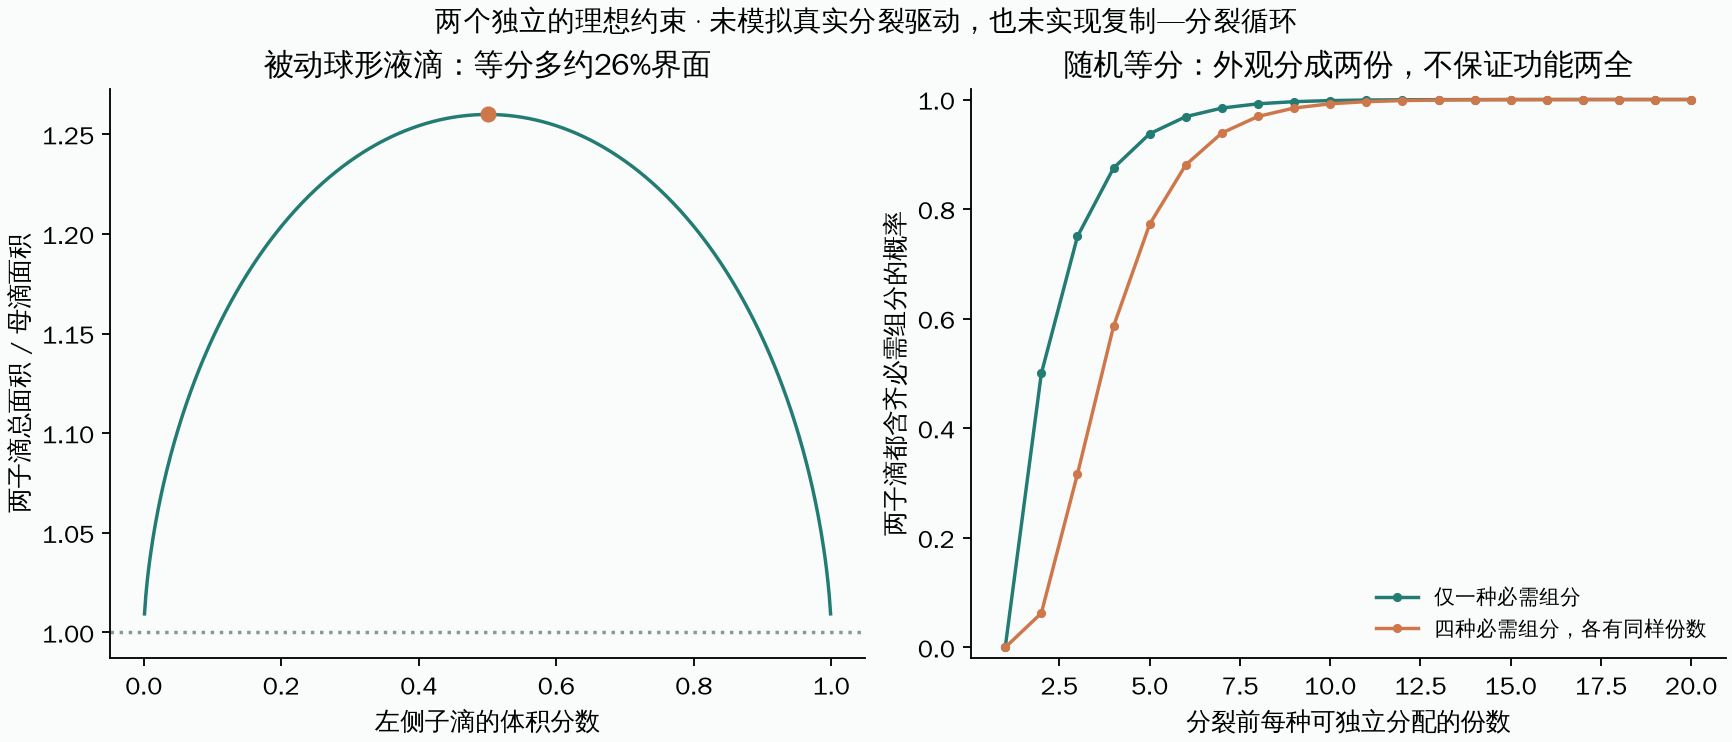
对一个简单、体积守恒且界面张力不变的球形液滴,将它分成两个同样大的球,总界面面积会增加:
也就是多出约26%的界面。若只考虑这项能量,分开并不划算。因此,“内部制造了更多东西,所以到一定大小自然会分裂”缺少了一个决定性环节:什么过程推动形状变化、形成细颈并最终断开?
Zwicker等人在2017年发表的主动液滴理论,为这一步给出了一个物理模型。外部持续能量供给维持组成物的生成与转化,滴内外反应和扩散形成物质流;在某些参数下,球形会对形状扰动不稳定,拉长并分成两个滴,子滴随后可以继续增长。3
这里的力量来自相分离与持续化学驱动的共同作用,不需要先塞进现代细胞那套分裂蛋白装置。但它是一个理论与数值模型,不是对2025年DEX复制液滴已经会自行分裂的实验证明;某些模型条件下也只有稳定球形或持续拉长,不是处处都会分裂。
更近的一项2026年研究,在有内部层状结构的脂质—核苷酸液滴中展示了不对称分裂:原来的结构产生形态不同的两个后代,一个仍像液滴,另一个成为囊泡,同时有功能性生物分子转移。6
这说明,分裂可以利用内部结构、界面相互作用与局部形变,未必沿“均匀球一分为二”的路径发生。但后代形态不同、发生了货物转移,还不能推出它们都保留了同样的增长与再次分裂能力。该研究补充材料还记录了分裂伴随向外释放结构及可观的表观体积损失,不能直接套用上面体积守恒的两球例子。
本篇对2026年研究取得了摘要、公开图注与补充资料,未取得订阅主文全文;这里采用这些可回查材料支持的过程范围,不重建其全部力学分析。2025年DEX研究则明确将自分裂列为待解决问题,不能从另一种材料的分裂图像,补出本体系的循环。
分成两份之后,功能也分成两份了吗
假设一个滴内有两份可独立分配的信息载体,分裂时每一份各有一半概率进入左子滴或右子滴。两份都到左、都到右、各到一边的总概率,分别为四分之一、四分之一和二分之一。
于是,只有一半的分裂会让两个子滴都分到至少一份。一般地,若分裂前有 $N$ 份、充分混合且独立分配:
这不是一个真实液滴的实测继承概率,而是一个最小的数量约束。DNA总质量增加,也不自动等于有这么多可独立分配的有效副本;很长的链、缠结或团簇可能以更少的整体一起移动。
再把问题推进一步。如果除了信息载体,还有几类当前不可缺、且丢失后不能及时再生的功能组分,它们也必须分配到合适的地方。一个子滴分到DNA,却没有完成下一轮反应所需的能力,仍不能按原有方式继续。
本库实际计算了一个自选例子:四类必需组分各有两份,所有份都独立随机分配。两个子滴都齐全的概率只有6.25%;平均每个母滴只产生约0.63个组分齐全的子滴。外观上数量翻倍,功能完整者的期望数量却下降。
这并不是说真实系统必须采用这种分配方式。如果不同必需组分以完整的组合共同分配,或者丢失的催化部件能由留下的遗传信息及时重新制造,结果会不同。相反,若有效副本聚成一团,或更偏向某个子滴,问题也可能更严重。关键在于实际的关联、分配和再生能力。
因此,判断后代不能只拍到两个小滴就结束。还要检查它们保留了什么、这些组分是否仍有功能,以及再次供给同样环境时,能否启动下一轮。
区室必须交换物料,也必须保留自己的历史
开放的液滴界面有利于供料,却可能让信息载体很快在邻居之间交换。若内部新产生的分子迅速散到其他滴中,很难持续维持“哪个后代来自哪个母滴、哪种功能随哪条谱系传下去”的关系。
2024年Agrawal等人的另一种凝聚液滴研究,提供了一个关于选择性保留的实验入口:界面条件改变后,液滴较难融合,较短RNA与某些小分子仍可较快交换,较长RNA的跨滴交换则显著变慢。5
但分子长度并不是唯一条件。同样长度的RNA,因折叠形状不同也会表现出不同交换;“较长者保留得更久”不等于完全永久封闭。该研究也明确说,尚未研究这些稳定液滴的增长与分裂。
这类结果的重要性,是说明“能进原料”和“能保留较大的功能分子”不一定非要二选一。但把界面变得更稳,可能又改变分裂和物料进入的难易,必须在同一体系中比较,不能把保留实验与另一篇分裂实验直接拼成完整后代。
下一轮还需要处理已经改变的环境
即使第一次增长和分裂都成功,周围也不再是最初的环境:可用原料减少,产物增加,区室数量和各组分分配变化,反应可能受限于不同的步骤。
2021年Nakashima等人的主动凝聚液滴实验,已经显示了这种限制。研究者用化学反应生成有利于凝聚的组成物,连续追踪单滴,从而区分平滑增长与偶发合并。燃料耗尽后增长停下,再供给燃料可以恢复增长;但到了第三次连续补给,作者未见明显增长。4
作者据此讨论物料输运和相图条件的限制。其观察也提醒:即使补回一种消耗物,其他组成和空间条件仍可能继续变化。一个能运行一次的配方,与能长期补给、排出或处理副产物并恢复下一轮状态的过程,仍有距离。
对2025年DEX体系,内部基因表达已承担了部分催化能力的产生;这比所有酶都始终从外部直接加入,推进了一步。但是否能跨分裂维持这些功能,以及如何续接整体表达系统、分裂机制和物料供给,仍需要进一步实验。
已经接上的环节,与仍要接上的环节
目前这些研究可以组成一张有依据的过程地图:内部反应能改变相分离和物料分配,实际驱动区室增长;化学驱动与内部结构能在相应模型或材料中推动分裂;界面能够对不同功能分子的交换产生选择性。
但本篇的主体系只完成了这张地图的一部分。它使用现代分子反应装置,展示的是复制与增长的耦合;自分裂、后代的组分分配,以及多个后代继续同样过程,不能由现有增长曲线自动推出。其他体系的成果提供可比较的机制,而不是已经兼容的即插即用部件。
更有区分力的下一步证据,是在同一批区室里连续追踪:复制产物怎样影响物料进入,分裂由什么状态触发,两个后代各留下了哪些有效组分,以及它们能否在相同的外部供给条件下再次完成这些步骤。这样才能区分“某几项功能同时出现”与“这些功能已经相互维持”。
这条研究路线的深度,正在于把一个看似简单的循环拆成可检查的连接。每接上一段,都会暴露新的约束:浓度与数量的配合、界面面积的代价、随机分配的损失、交换与保留的速度,以及环境被改变后还能否继续。它们共同决定一个小区室能走过多少轮。