从一次兴奋接力,到不再等下一次正常起搏
正常心跳需要电活动按合适的先后关系经过组织。每一段被带动后,再驱动下一段;刚刚兴奋过的区域则经历恢复,短时间内不容易再次被激发。这个恢复过程,使传播具有时间上的方向和历史。1
心律失常可以从不同地方开始。一种情况是某个部位异常地反复发出激动,包括异常自动性或由先前活动引出的触发活动;另一种情况是已经形成的兴奋波沿着路径绕回来,重新激发先前经过的组织,形成折返。异常触发可以启动折返,但开始的原因与持续的原因未必相同。
本篇主要研究第二类过程。即使窦房结已经不再提供那一串异常节拍,只要回来的波能重新接上,局部回路仍可能继续驱动组织。要理解这种持续性,需要同时追踪传播、恢复和路径,再检查观测到的图样究竟对应什么机制。
波回来时,原来的地方是否已经能再被激发
先设想一个近似固定的环形路径,长度为$L$,传播速度近似为$c$。走完一圈的时间约为$L/c$。如果某处在上次激动后需要一段时间才能再次被有效激发,那么波必须在足够晚的时候回来。
在最简单的固定路径图景中,可以比较:
$T_{\mathrm{ref}}$代表所采用定义下的恢复或不应期,$\lambda$是相应的波长尺度。路径能容纳这个尺度、回来的波能遇到可激发组织,是理解折返的一个入口。1
但这不是一个只要代入数字就能预测心律失常的判据。真实组织中,速度会随方向、波前弯曲、恢复程度和负载变化;恢复也不是一段时间过去就瞬间完全打开的开关。路径上某一处传不过去,或者初始两股波相遇后消失,都可能使折返不能维持。
一个容易忽略的区别是:路径可以允许折返存在,并不意味着任何一次激动都会启动折返。
用一个有限模型,看清“启动”与“维持”的区别
本文做了一个自选的120个位置的环。每个位置受到邻居传来的激动时,如果已恢复,就兴奋一次并继续向两侧传递;如果尚未恢复,就不被再次激发。相邻传递延迟和恢复时间都是明确给定的模型参数。最初只有一次外部激动,此后不再持续注入新的激动。
其中一类初始状态,让起点一侧的部分位置还要等待20步才恢复。这是预先设置的恢复差异,用来比较不同启动条件;模型没有还原之前怎样形成这段历史,也没有给出人体的触发时机。
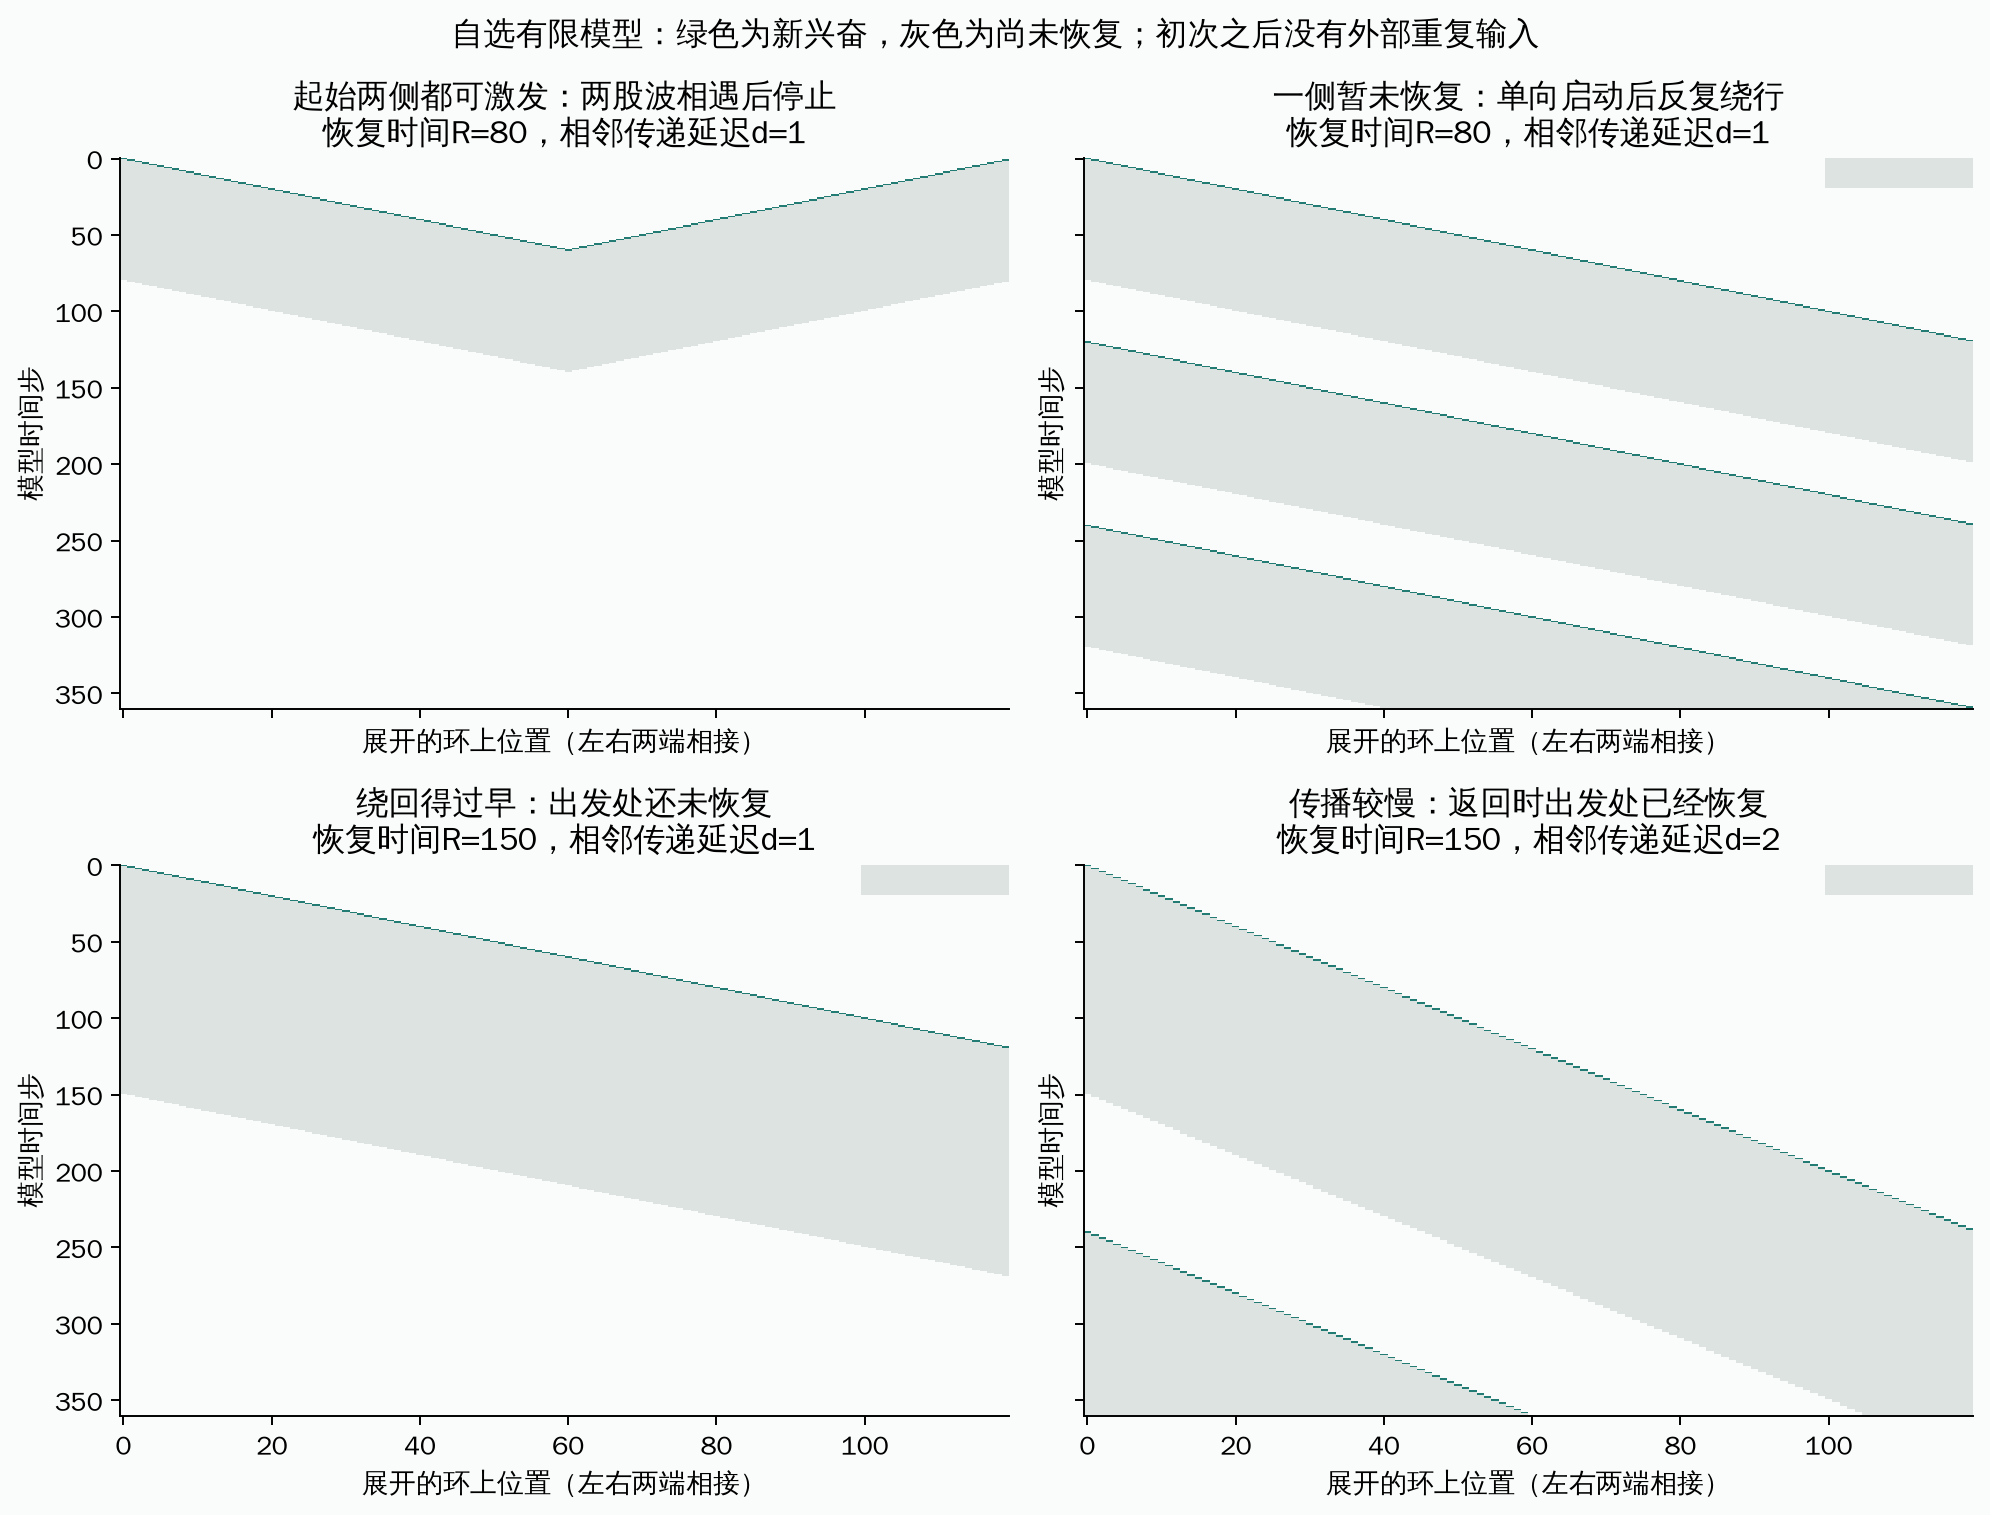
在两侧最初都可以传播时,两股波从起点出发,相遇后没有继续绕行。这个环明明有足够的空间和恢复时间,却没有被这次初始激动带入持续折返。
当起点一侧暂时不能传导时,波沿另一侧出发;如果它绕回来时起点已经恢复,就能开始下一圈。在本例中,恢复时间80步、绕行时间120步时,系统进入了周期120步的重复状态。把恢复时间延长到150步而保持相同速度,波返回得太早,传播停止。
再把相邻传递延迟从1步改成2步,绕行需要240步,原先150步的恢复就来得及完成,模型又能持续绕行。这显示,传播变慢在某些条件下反而能为折返提供时间。它不意味着真实心脏里减慢传导必然促进折返:真实速度下降还可能伴随驱动电流不足或某段传导失败,这些过程没有包含在本模型中。
本文还检查了永久中断一个位置的对照,回路不能继续。对持续绕行的两个例子,计算不仅看了有限时间的图像,还比对了包含所有恢复状态与待到达激动的完整有限状态,确认状态分别在120步和240步后重复。因此,在这套确定规则和不变条件下,它们会持续重复;这是一项模型内的结论,不是人体中的永久维持证明。
这个小例子提供了三个可追踪的问题:先前活动怎样留下恢复差异,初次激动能否形成单向传播,以及回路是否能在此后不断接上。实际研究需要再把离子电流、曲率、组织结构和代谢条件放回来。
折返可以围着结构,也可以在功能性阻滞附近形成
心肌并不是一张均匀平面。纤维走向、厚度变化、瘢痕、纤维组织和细胞间连接都会影响传播。某些结构提供了可绕行的路径,也可能把相邻区域隔开。另一些阻滞则来自当时的恢复状态和驱动能力,位置可以随活动而改变。1
在二维图景里,弯曲波前的不同位置需要带动的下游组织不同。靠近高度弯曲的端部,驱动可能不足以向前推进,于是波端绕行,形成螺旋状传播;三维组织中,相应结构还可以延伸成弯曲或扭转的卷轴波。这里的核心是局部激发、恢复和空间负载怎样配合,不一定需要预先存在一个圆形的解剖洞。
“转子”“螺旋波”“解剖折返”等名称,在不同文献中的分类边界并不完全一样。例如一个功能性波端被结构固定后,有的作者仍称它为转子,有的更强调其解剖性回路。本篇优先问具体发生了什么:激动是否沿连续路径返回,是否再次激发原处,哪些结构和状态使它停留在那里。
人类组织中的具体证据:同一活动,从两侧看可以很不同
2015年的一项研究同时从两侧记录离体人类右心房的光学信号,并结合三维磁共振与组织学信息。研究总共涉及8颗有病理背景的心脏,其中6个右心房制备的8段持续房颤记录形成了正文表1的驱动数据。2
这些记录有明确的实验条件:组织离体、去神经、机械活动受到抑制,并使用改变动作电位时程的药理条件帮助维持房颤。光学信号也不是逐点读取整个壁内的电压,而是来自不同深度的加权记录。因此,结果说明了这些条件下能发生什么,不能直接作为全部自然房颤的发生比例。
研究者在部分区域看到:心内膜侧能够解析较完整的循环激动,另一侧却主要显示局部突破或波破裂。组织结构提示,激动可以沿被纤维组织隔开的肌束和壁内连接绕行。同一壁内过程在不同观察面上,可能表现为不同的表面图样。
本文抽取了表1的8条驱动记录,重算了各视图能够解析的回路周期比例。心内膜侧的行均值为76.6%,心外膜侧为41.1%,与原表约77%和41%的汇总相符。2
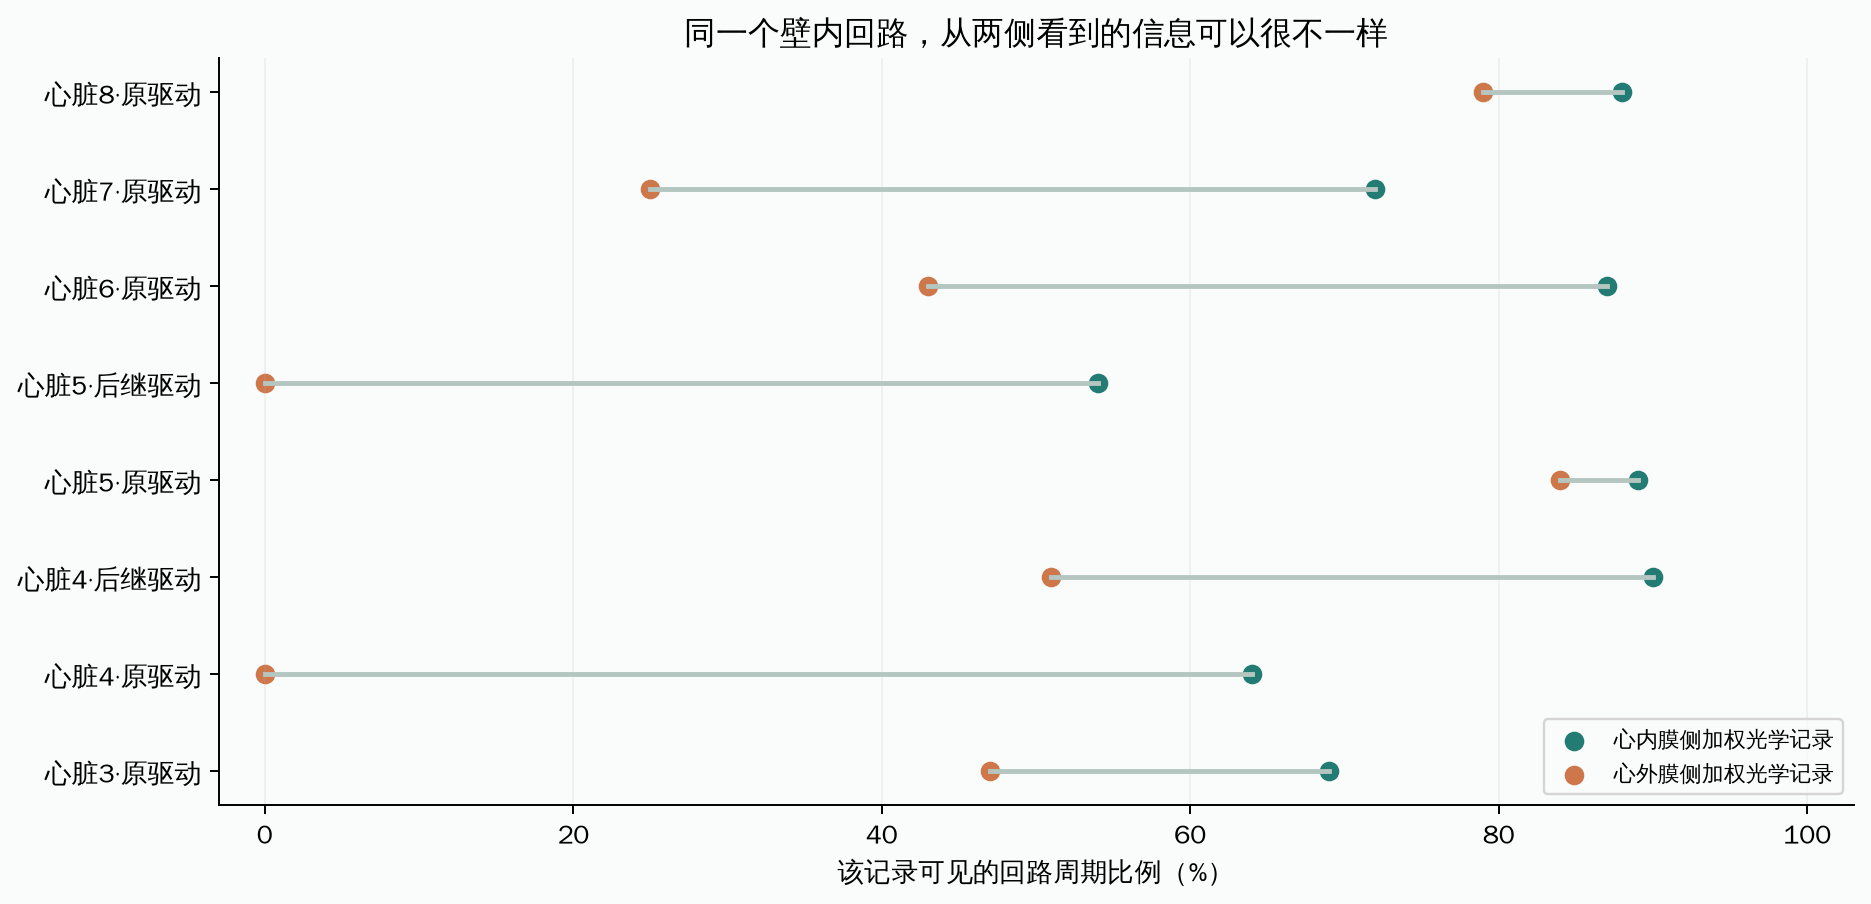
这组证据不只依赖图样看起来像在旋转。在5个制备中,针对所定位回路的干预改变或终止了原来的驱动,未针对该回路的位置则没有同样明显的影响。它加强了该回路承担驱动作用的解释。
然而,原驱动消失后,并不总是立即得到正常节律。其他位置可以出现后继驱动,也可以出现绕着新形成阻滞区域运行的房性心动过速。原文因此区分了原回路被消除、房颤终止、出现另一种心律失常和最终不再诱发等不同结果。不能把它们都写成“一次处理就治好了”。
研究也没有非病变心房对照,样本病史多样。它支持具体壁内折返机制的存在和作用,但没有单独证明某个纤维化比例就是病因,更没有排除其他房颤机制。
一个回路怎样变成更多的波,又为什么可能自行停止
一条回路持续产生兴奋,并不保证周围各处都能按它的速度响应。当新波遇到仍未恢复的区域,部分波前可能通过,另一些部分则停止;新的端部又可能沿周围可激发组织继续发展。这样,局部较有组织的驱动,可以在周围产生复杂、不规则的传播。
另一方面,多个短暂回路与波前也可能不断产生、相遇和消失,使整体活动在没有一个永久固定核心的情况下继续。要区分这些可能性,需要比较全局覆盖、局部驱动位置和不同时间段,而不是只取一张瞬时图。1
2022年的一篇人类离体心脏观察报告了一个具体过程:一个相对稳定的螺旋传播持续约50圈后转入多波活动,多波活动又在约8秒后自行终止。作者把表面观察与三维卷轴波扭转、突破的模拟联系起来,但明确说明,缺少壁内记录,不能唯一确定发生了哪种三维机制。3
本次已核到这篇短文的正文和图注,原补充视频未取得,所以这里采用的是作者报告的观察,没有声称重新逐帧标注了那些事件。
2007年对6颗灌流豚鼠心脏的研究,则追踪局部波前怎样分裂,并把碰撞、逐渐衰减的传导和产生较能继续传播的子波区分开。相邻区域电位恢复和交替变化的不同步,为部分波破裂提供了机制线索。但作者也指出,恢复曲线对复杂颤动的解释仍不完整,深层活动未被完整观察,其他物种和病理条件可能不同。4
这些证据共同提示:维持颤动取决于新活动产生与旧活动消失的动态关系。 回路或波前并不都必须永久存在;同样,观察到一次波前分裂,也不等于已经建立了一个能够长期存活的新回路。
相位图里的“转圈”,怎样与组织中真正的绕行区分
临床和研究设备常将复杂信号转换成相位:把一次活动—恢复过程表示为周期中的某个位置,再给不同相位涂上不同颜色。相位在空间上绕一圈的点,可以提示值得进一步检查的组织模式。
但这个转换会受到信号分量、滤波、参考位置、插值和采样范围影响。相位信息描述了信号处在周期的什么位置,还需要结合激动路径才能判断真实传播。
2018年的一项研究,用同一批人类心房接触记录比较激动时间图与相位图。研究涉及20名患者、38段各10秒的记录,局部视野约为2.4×2.4 cm。作者找到138个持续超过一个局部周期的相位奇点,其中14个与激动图识别的旋转活动对应;而激动图中的18个旋转波,有14个被相位分析对应到。5
本文复算后,这两个比例分别是10.1%与77.8%。它们的分母不同:前者从“检测到的相位奇点”出发,后者从“激动图中的旋转波”出发。原文把14/138称为特异度,但这个分母并没有统计真正的阴性事件;这里称为相位奇点与指定旋转活动的对应比例,不把它当成患者级诊断特异度。
另外,104个相位奇点在其存在期间平均位于阻滞线附近,按104/138算约75.4%。作者还用模拟展示:阻滞线两边有相继通过的波,经过滤波与相位处理,也可以形成类似旋转中心的图样。
这个结果不等于“真实折返很少存在于所有心房”。该研究的比较方法自身也有局限,局部激动时间并非没有误差的金标准,局部心外膜视野更不等于整个心房或壁内。它说明的是:在这类记录和处理条件下,仅凭相位奇点定位回路,有明确的误判风险。
一个更小的数学例子可以帮助理解缺了什么。设四个周期读出分布在正方形的四个角,相位依次相差四分之一圈。沿正方形计算相位绕数,可以得到非零结果;但真实连接完全可以只有左边一条向下的路径和右边一条向上的路径,两边各自由一个周期输入驱动,彼此没有连接。
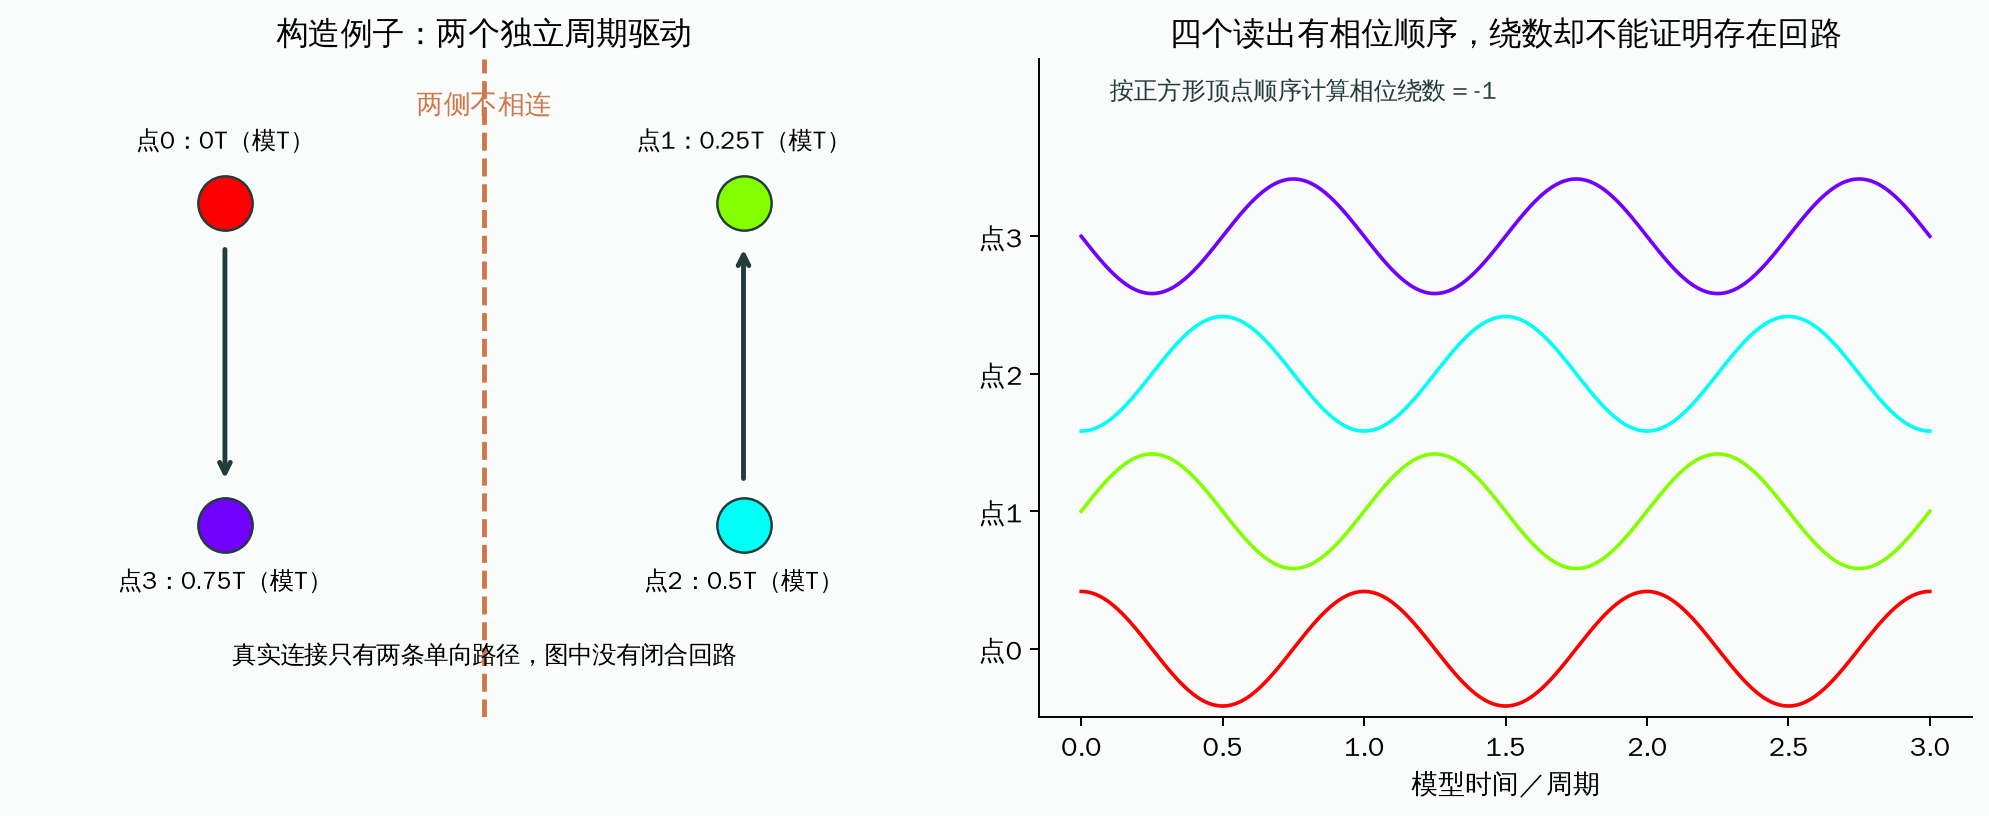
真正需要补充的,是组织连接是否连续、激动先后能否沿该路径走完一圈、波能否再次激发原处,以及改变相关位置后是否出现机制所预期的变化。相位图可以提供线索,这些信息让线索更接近对机制的识别。
改变了标测图上的目标,是否就会改善长期结果
器官中的一个回路可以是真实的,某种算法仍可能在部分情况下定位不准。即使定位准确,处理后也可能留下其他路径或改变原有的传播条件。因此,实验机制、标测性能与临床结局需要分开验证。
两项2025年发表的随机试验提供了不同的比较,但不能直接拿它们给设备排一个名次。
REAFFIRM研究比较常规方案加用FIRM定位的局灶/旋转目标,与常规方案。正文报告350名进入分析的人群;3至12个月单次操作后无房颤/房性心动过速复发的观察比例,分别为115/166和110/163,即约69.3%与67.5%,未显示加用方案的优效。6
这里的常规方案不是在所有人身上完全相同:两组分别约41%与49%接受了额外处理。事后按实际接受操作分出的亚组,不再是独立随机比较;不能挑出其中最好的一组来宣称已经证实了某种机制或最佳方案。
这项试验在2014至2017年入组,最后随访在2018年结束。2025年的发表时间不意味着这些是当年最新设备和操作环境的结果。它约束的是该研究中的方案与终点,也不能倒推出组织内折返不存在。
TAILORED-AF则研究针对AI识别的时空离散电图区域进行额外处理。作者的主要分析包括180与177名参与者,主要终点是单次操作后12个月内不再记录到房颤,结果约为88%与70%,支持该方案在这个终点上的优势。7
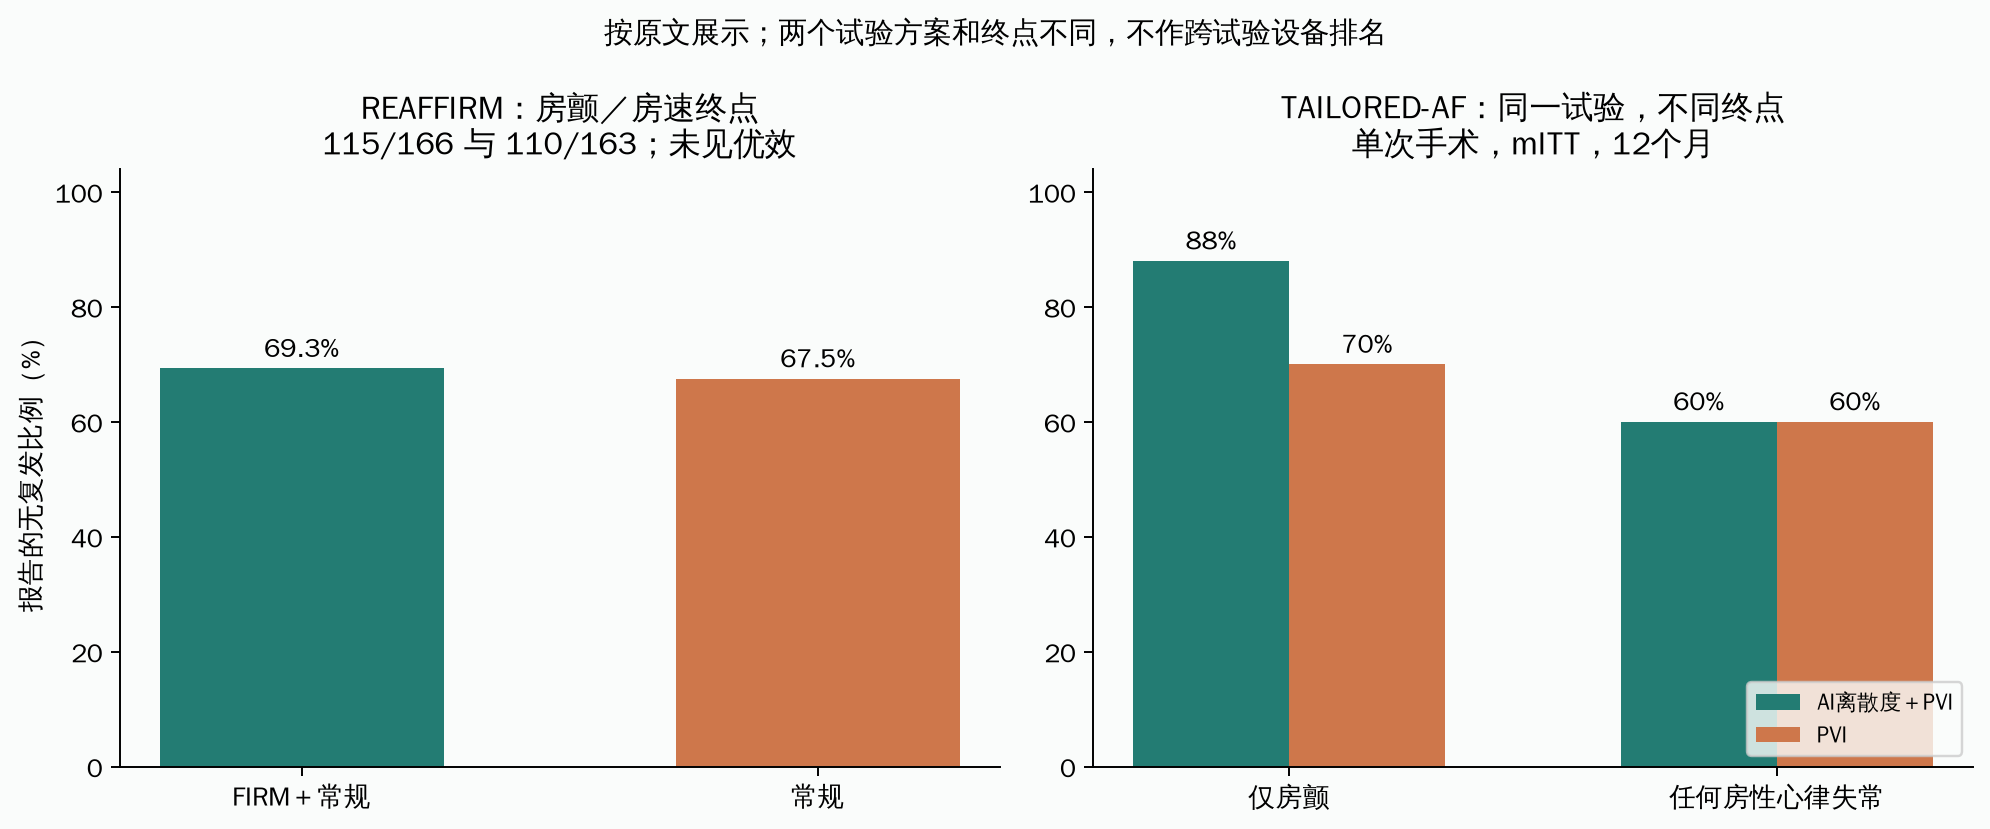
但在TAILORED-AF中,如果把终点改成“没有任何房性心律失常”,单次操作后的两组估计都约为60%,没有显示相同的优势。额外处理组中,部分房颤转成了更有规则的房性心动过速,且操作时间更长。一次房颤终止,与持续保持正常节律,是不同结果。
本文回核了该研究的公开方案和统计分析计划:仅房颤的主要终点与更广的心律失常终点需要分别理解;主要分析排除了部分早期退出者,属于修改后的意向治疗分析。按原文计数158/180和124/177重算的比例,与约88%和70%相符,但这不构成对原生存分析的复现。
AI部分同样有明确的验证对象:它主要学习专家对电图“时空离散”的标注,不是直接获得组织内回路的无误真值。临床试验可以验证使用整套方案后某种结局是否改善;它不会因此自动证明每一个被标记的区域都是同一种折返核心。反过来,仅指出标注存在不确定性,也不能抹去实际试验中观察到的终点差异。
如何从“心电变乱”走到可检验的机制解释
对一段异常活动,可以先问:它是否由某处不断产生新的触发维持,还是波在已有组织中返回并重复激发?如果怀疑折返,再问回来的时间、局部恢复和连续路径是否兼容。若看到多个波或表面突破,还要检查它们是否可能来自同一壁内过程,或者来自不断产生与消失的多个过程。
随后才是对仪器输出的解释:记录的是哪一层、覆盖多大范围、采样是否同步;激动时间和相位各如何计算;某个旋转图样是否能通过另一种读出和相应干预获得支持。最后,改变图中目标后的短期电生理变化与长期结局,也应分别记录。
现有证据能够支持:折返是心肌中真实存在、在一定条件下能够维持异常节律的机制;恢复历史、结构和传导条件决定哪些回路能够形成和持续。仍未统一的是,不同患者与不同阶段由哪些过程占主导,以及哪种标测和处理最能可靠地对应这些过程。
持续失序可以由局部可追踪的规则产生,也会因条件改变而消失或转成另一种模式。 理解它的关键,是把启动、维持、观测和改变后的结果连成一条有证据的链,而不是让一张旋转图或一个成功率替代所有环节。
本文计算结果及同目录保存的输入表和事件轨迹可回查。有限环与四点相位例子均为解释用途;没有实施人体或动物操作,没有复现原始影像、完整临床统计或AI模型,也不提供个人心律诊断或操作设置。