一段水柱进气,为什么不必立即拖垮整棵树
木质部不是一根从根部直通树梢、没有分隔的空心管。它由许多导水单元和连接组成,水可以跨越细胞之间的纹孔继续前进,气体却不一定能够同样容易地通过。
在蒸腾建立的水势梯度下,连续液相承担输水。水柱可以处于拉伸状态;在适当的组织约束和缺少足够气核的条件下,它能够保持亚稳的液相。气体进入后,这段通路的输水能力可能明显下降,并把新的气液界面带到邻近连接处。1
所以,至少有三个相接的问题:气体怎样进入一个导水单元,怎样从它传播到邻居,以及风险缓解后怎样重新获得输水能力。
本篇以干旱相关的气体入侵和隔离为主线。局部封住一个连接,可以限制传播,但整棵树的结果还受其他通路、局部压力和水分需求影响。
这里先澄清一个容易混用的量。水势描述水的化学势状态,包含压力、溶质和位置等影响;纹孔受到的机械作用,直接取决于两侧的压力差。某段木质部水势很负,不等于每一对相邻纹孔都承受同样大的压差。
两边的水同时承受相近的拉伸应力时,压差仍可能很小;一边转为含气空间后,两边的压力才可能明显拉开。阀门是否动作,取决于这个局部差别。
水能过去、气体过不去,靠的是怎样的界面
相邻导管之间的纹孔膜,主要由细胞壁材料构成。它不是一层还在主动开关离子通道的活细胞膜。水可以经过微纤维之间曲折的细小通路;气液界面若要进入这些通路,需要克服与几何、润湿和表面张力有关的条件。1
一个理想的圆柱孔喉,可以用Young–Laplace关系说明这个量级:
$\gamma$是表面张力,$\theta$是相应的接触角,$r$是孔喉半径。这里比较的是气、液两侧的压差。
例如,本库选用$\gamma=0.072\ \mathrm{N/m}$、$\cos\theta=1$。半径50纳米的理想孔,对应压差约2.88 MPa;半径500纳米时,只有约0.288 MPa。相同润湿条件下,更窄的孔喉能维持更大的压差。
但真实纹孔膜不是一排光滑、笔直、彼此独立的圆管。孔隙曲折、连通方式、纤维层叠、膜的形变和汁液成分都会影响结果。纹孔腔的微米级直径,也不能直接拿来代替膜内通路的纳米级孔喉。
较厚的孔膜可能使贯穿路径遇到更多约束,但不能仅凭厚度就断言每一个孔都更小。显微制样中的干燥、储存和再水化,也会改变纤维排列与可见孔隙;看见一张干膜图片,不等于已经量到了原位湿膜的气体进入阈值。1
这就是气体“播入”相邻导管的一个关键环节:邻近已经含气的空间提供气体来源,界面在连接处能否继续维持,决定了新通路是否被侵入。
Torus-margo纹孔:把通水与封口交给不同结构
许多裸子植物的纹孔采用另一种结构。中央有一块较厚、相对不透水的增厚部,叫torus;周围是较疏松、可透水的纤维网络,叫margo。
开放时,水主要经过周围多孔区域。压差增大时,中央增厚部可以发生位移,贴向一侧孔口,起到隔离含气通路的作用。这种被动形变,不需要纹孔本身有一个代谢性的执行器。2
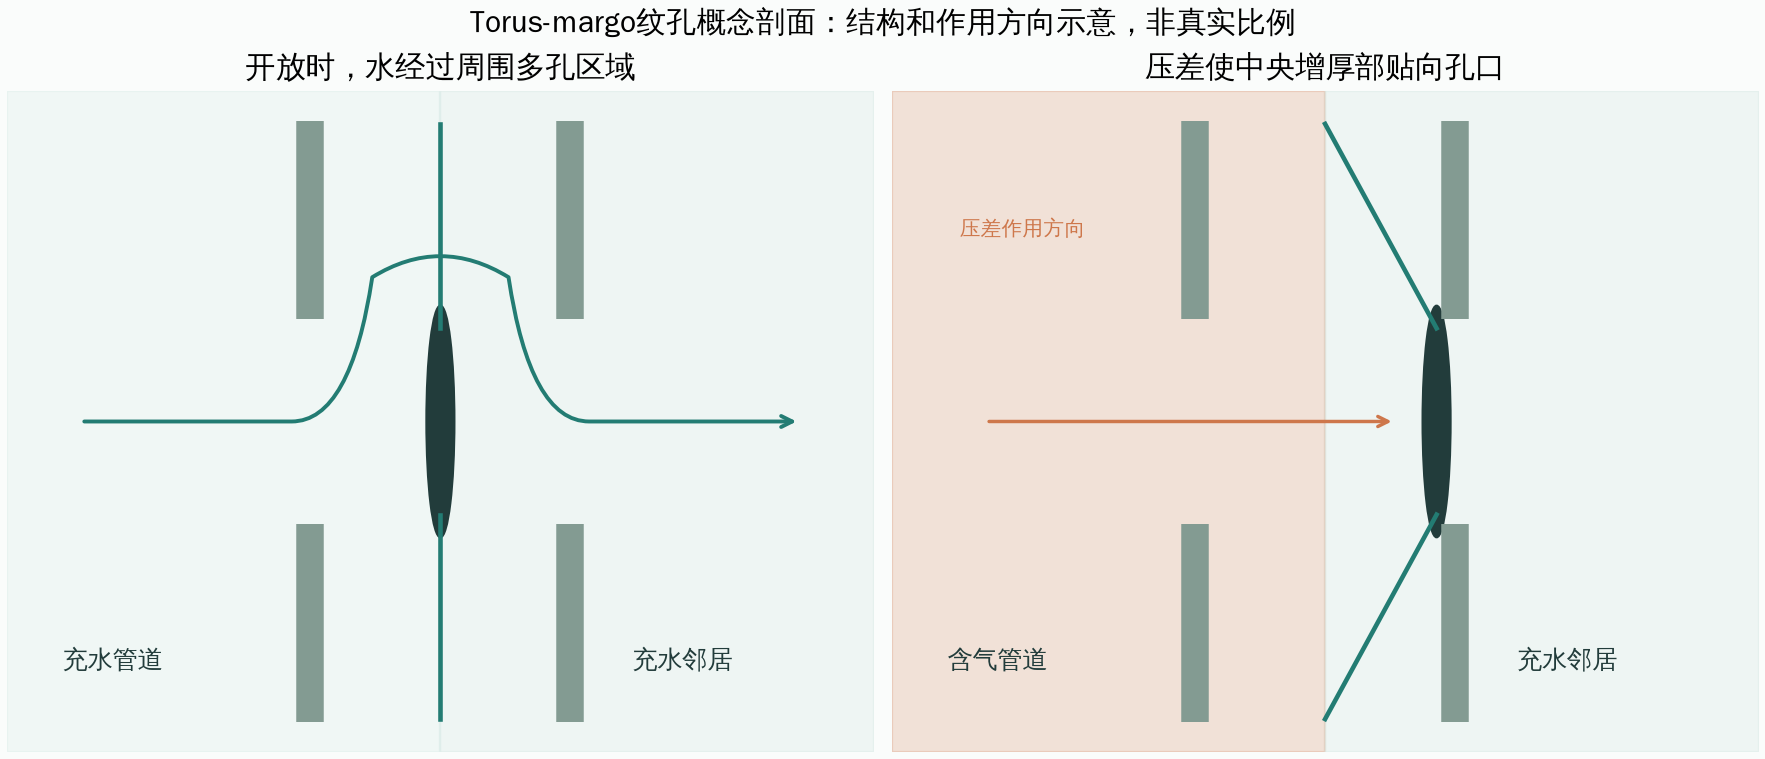
这种结构部分分开了两项任务:开放时提供较低阻力,必要时用中央结构封住孔口。它不能被简化成“同一组大孔永远既通水又完全挡气”。
因此,是否有torus还不够。中央增厚部能否覆盖孔口、周围纤维怎样变形、密封是否漏气、压差什么时候出现,都影响实际功能。
若多孔边缘在气液界面到达后容易失去屏障,就需要在那之前完成有效封闭。“必须及时”于是成为与静态结构同样重要的条件。2026年的研究正是以这个时序前提,考察导管几何与纹孔功能的关系。2
压差越大,流量为什么反而可能减少
2026年Zwieniecki等人的实验,比较了三种被子植物与四种裸子植物的枝段,其中裸子植物组包括银杏。样品设置意在使水主要跨越单层纹孔,测量不同施加压差下的稳态流量。2
本库取得公开汇总表,重绘了七个物种、61组压力点。流量$Q$表示单位时间通过多少水,导度则为:3
压差增大时,即使通路变得更难通过,流量仍可能增加。因此,“流量上升”和“导度下降”可以同时出现。
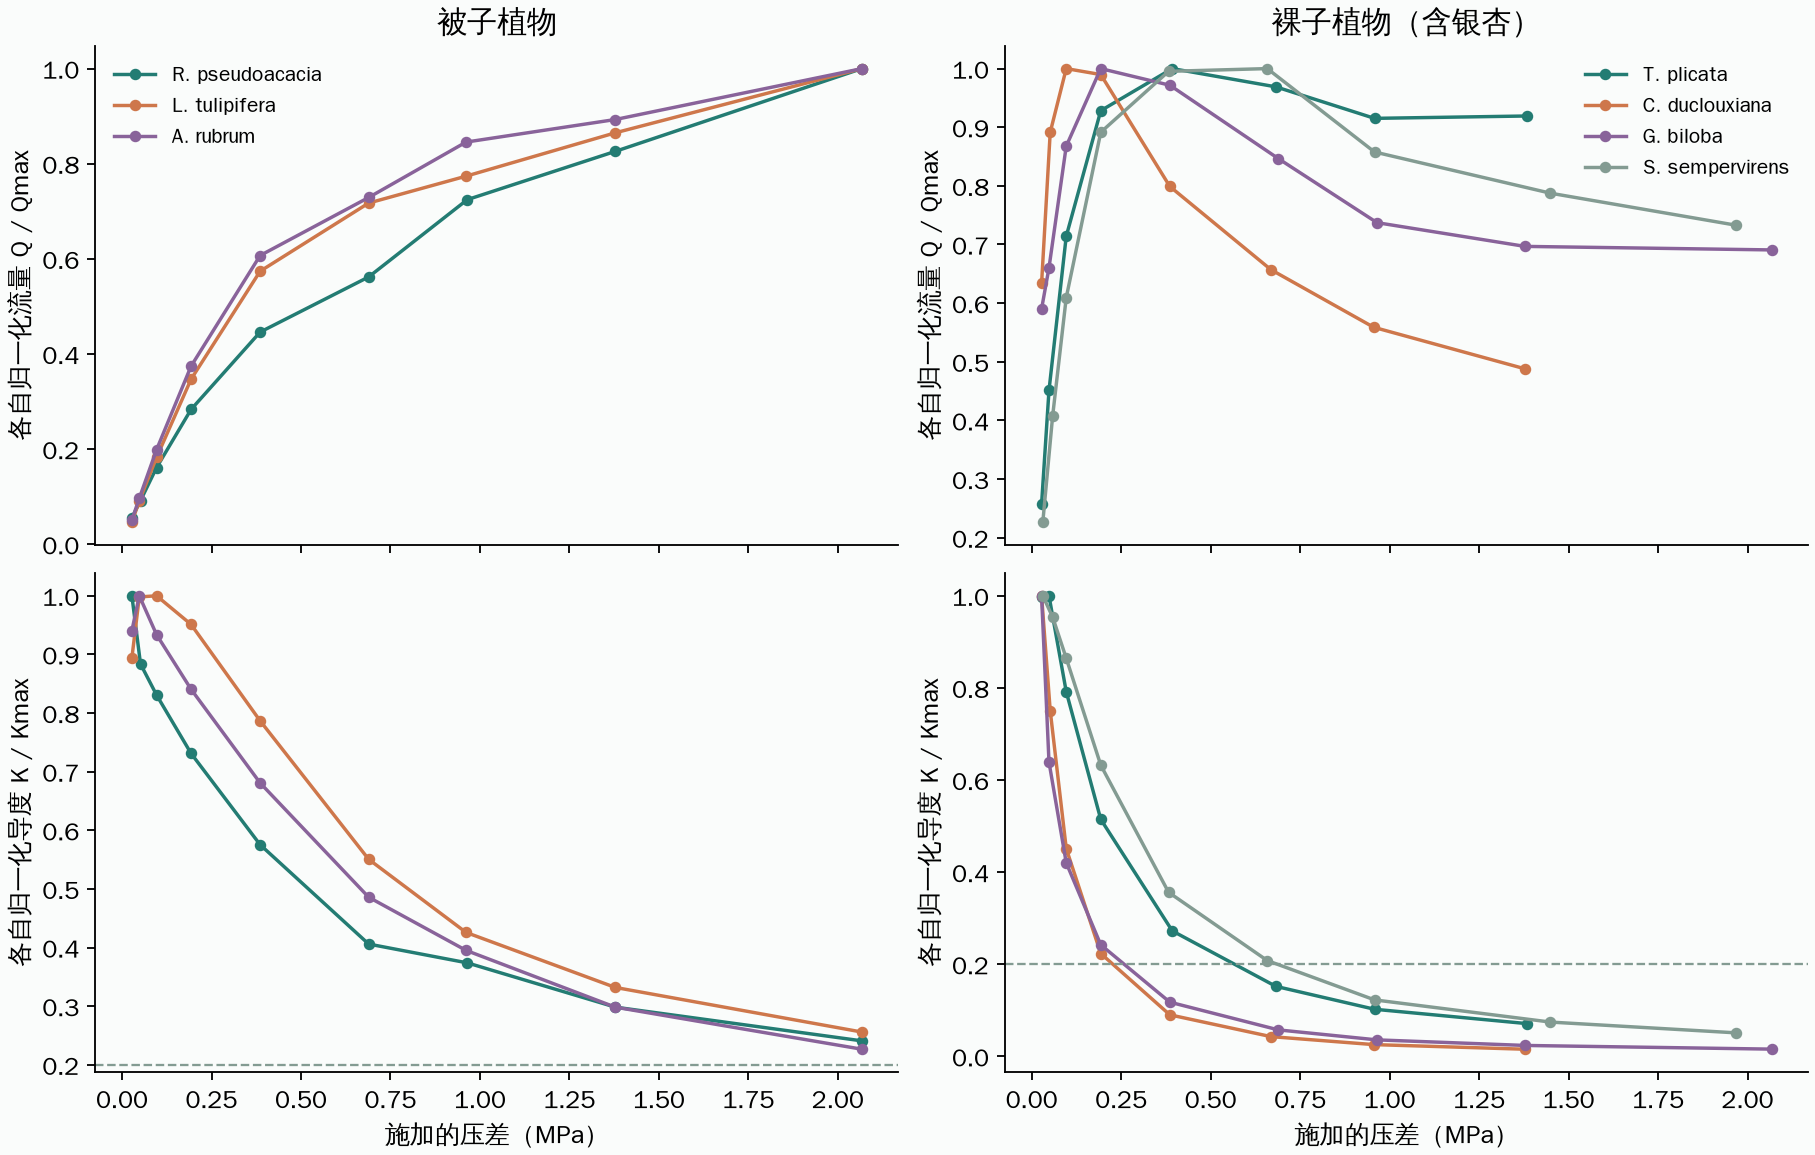
被子植物组的流量总体随压差增加,但导度已经下降。裸子植物组则出现更明显的流量峰值,之后继续提高压差,流量反而下降;这与压差引起纹孔形变、逐步封闭的解释一致。
不过,实验直接测到的是枝段的压力—流量关系,并非逐个纹孔的连续位移录像。样品形变、流路和孔膜结构,都需要与这个读数联系起来。
原文以相对导度降至约20%,作为后续模型的一个关闭参考。按公开表中跨过这个水平的两个压力点作线性插值,本库得到四种裸子植物约0.23、0.26、0.57和0.69 MPa,处在原文所讨论的相近量级。
这些是汇总曲线上的插值结果,不是每个纹孔精确一致的开关阈值。导度损失80%,也不等于恰好80%的纹孔数量已经关闭,因为不同通路对总流量的贡献可以不同。
气泡排出去的水,到了哪里?
气体扩展,会把原先占据那部分空间的水排走。若这些水进入邻近的有限储水空间,邻居的压力可能升高,于是使两侧的差压减小。
这提供了一个重要反馈:驱使纹孔形变的事件,也可能同时减弱驱使它形变的压差。
先用一个明确的等效模型说明。设邻近受压区域的压力顺应性为$C$,即注入一定体积需要改变多少压力。若在短时间内忽略未计入的外流,则:
再把$C$写成有效体积$V_{\mathrm{eff}}$除以等效刚度$K_{\mathrm{eff}}$,就有:
在本库自选的$K_{\mathrm{eff}}=5\ \mathrm{GPa}$例子中,注入量只要达到等效体积的万分之一,压力就会改变约0.5 MPa。关键不只是气泡本身有多大,还包括它推动的水由多大一片区域接收、那片区域有多硬,以及水能否继续流走。
2026年论文进一步把体积比近似为气泡扩展长度与总输水路径长度之比,得到几何限制。按其基本参数,本库重算的参考比值约为$5.37\times10^{-4}$与$9.42\times10^{-4}$。采用原文参数端点的八种组合,结果从$10^{-4}$变化到约$2.45\times10^{-3}$。
这是一组模型敏感性结果,不是树种实测置信区间。把体积比替换成长度比,额外假定了相应横截面积、有效连通体积和排水边界。真实树木存在并联水路、沿壁分布的纹孔、不同位置的组织顺应性和持续变化的外部供水,不能只凭一个长度比就判定所有结构必然能用或不能用。
此外,若模型中的压差已经降到零,就不能继续用同一个驱动力假设让气体无限推进。后续是否还能扩展,需要重新检查外流、压力供给和界面状态。
几何换成流速时,先守住同一笔水量
几何确实可以改变气泡排水的速度,但面积换算必须与流量守恒一致。
若以$v_e$表示一个简化界面的前进速度,管腔横截面积为$A_c$,所有参与排水的纹孔总面积为$A_p$;在无额外贮存和其他出口的近似下:
同一股水分摊到更大的出口总面积,平均速度会降低。这里的平均速度还不等于每个微小孔喉中的局部速度。
本次核对发现,2026年正文及其早期稿所写的面积因子方向,与上述定义下的守恒关系不一致;附表的直径单位也存在需要核清的地方。因此,本篇采用可回查的实测压力曲线,并把该文跨物种动压和作用力的定量预测留作待复核项。
即使速度已算对,$\rho v^2/2$所表示的动压、纹孔两侧静压差和膜片实际承受的力,也不能不加条件地互换。在微小、黏性作用显著的结构里,需要根据具体流场、阻力和受力面积建立联系。
静态压差够大,也可能来不及封口
下面用另一个自选模型,只研究膜片对给定压差的响应。
设$y=1$表示中央结构首次到达封口位置,膜片有一个响应时间$\tau_v$。取最简单的过阻尼关系:
$P_c$是这个模型中达到相应静态位置所需的参考压差。我们让压差从0.8 MPa开始,随后按指数衰减,选取$P_c=0.5$ MPa。所有时间尺度均为本库自选,未从实验曲线拟合。
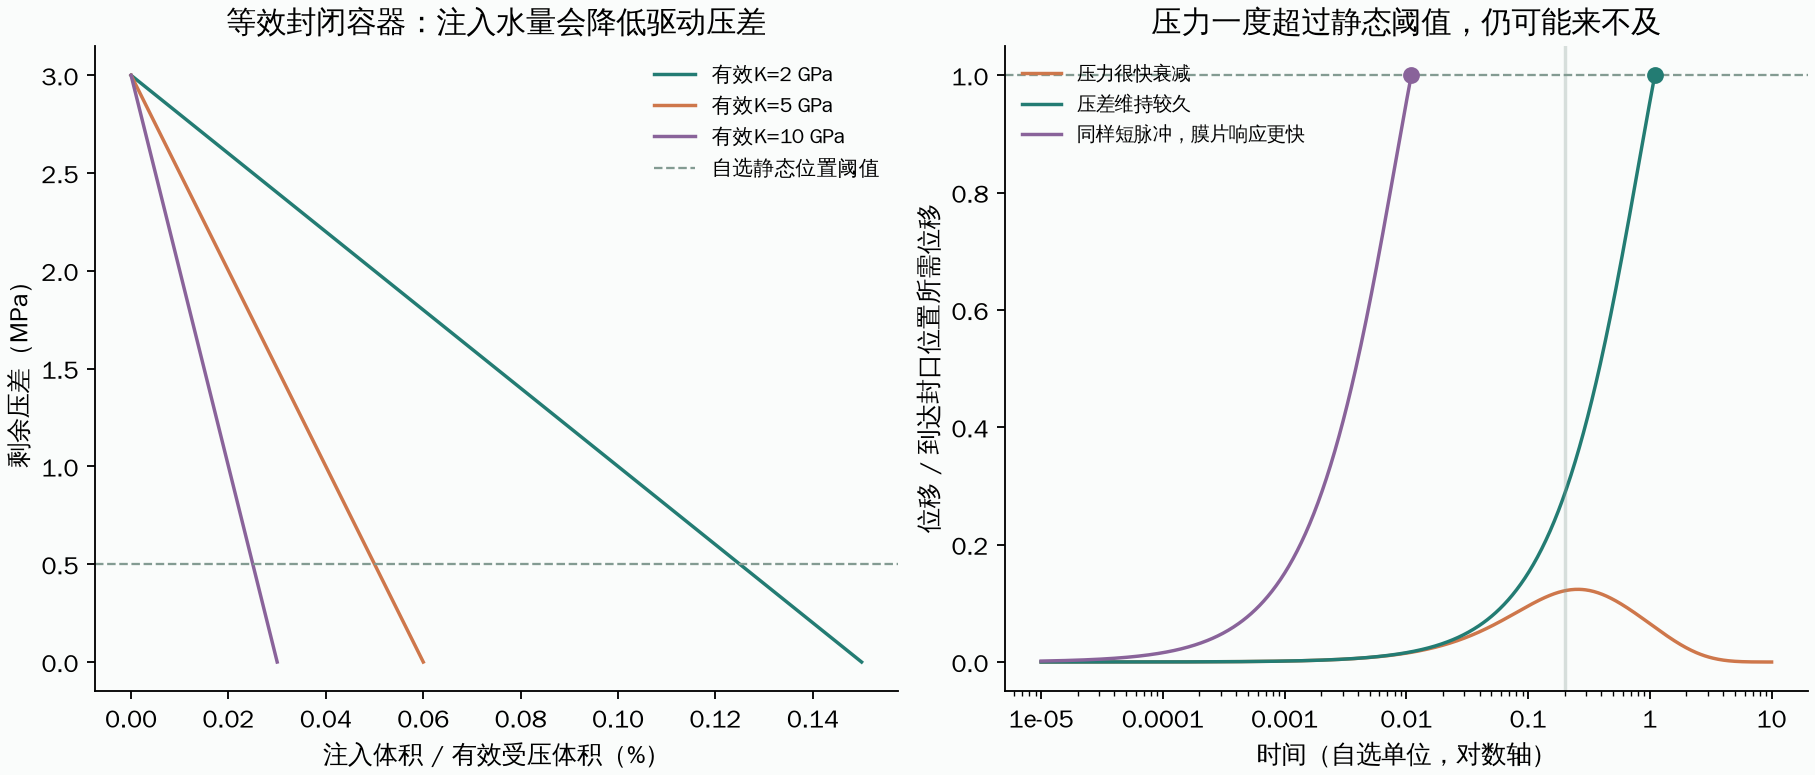
| 自选情形 | 结果 |
|---|---|
| 压差很快衰减,膜片响应较慢 | 最大位移仅为封口所需的约12.4%,没有到达封口位置 |
| 同样初始压差维持较久 | 约1.10个时间单位首次到达封口位置 |
| 压差仍很快衰减,但膜片响应也快很多 | 约0.011个时间单位首次到达 |
| 压差维持较久,但气体到达时间预设为0.2 | 膜片虽稍后能到达,却没有满足“到气前封口”的判据 |
本库用解析解与独立数值积分核对了这些结果。它们说明,判断能否及时响应,至少需要同时知道压力幅度、维持时间、膜片响应时间和气体到达时间。
本例只计算首次达到位置。是否真正形成不漏气的密封、能保持多久、接触后是否反弹或重新打开,还需要另外的接触和界面描述。气体到达时刻在本例中也是给定条件,而非由完整流体计算产生。
这正是静态压力—流量实验与自然事件之间需要补上的一段:测到了一个参考阈值,并不等于已经测清所有关闭过程。
从一个连接到连锁断水,还要经过管路和需求的反馈
封住一对纹孔,可以减少一条气体传播通路,其他连接仍可能开放。如果气体通过某个较弱的连接进入下一导水单元,就会产生新的界面、排水和压力变化,继续影响它的邻居。
是否形成较大范围的传播,取决于各通路的界面阈值、实际压力和状态,以及剩余水路能否承担需求。气孔对蒸腾需求的调节,也会改变后续水势走势。
因此,含气导管的数量或面积,与导水能力损失并不必然成正比。较宽的导管、位于关键连接位置的单元和具有替代水路的单元,其影响可以不同。
相同的最终气栓面积,还可能对应不同的周围储水状态和不同的恢复能力。2025年的杨树研究提供了一个可回查的例子。4
干旱结束以后,恢复还需要水从哪里来
Tricerri等人比较了缓慢发展与较快发展的干旱。两组黑杨幼树在终点的茎水势都接近−2 MPa,导管含气面积占整个木质部横截面积的比例也相近,约为10%。4
这个10%的分母是木质部截面积,不是导管总数,也不是导水率。不能把它读成“只有10%的导管失效”,或与某项50%导水能力损失阈值直接等同。
复水24小时后,恢复组的平均水势已大幅回升。较快干旱后的恢复组约为−0.33 MPa,较慢干旱后的恢复组约为−0.45 MPa;两者仍可为负值。较快干旱后的恢复组,含气导管面积比例降低更明显。
恢复时张力缓解,并不意味着水势必须变为正;这些结果也不能推广成维持原来强干旱张力时,同样能够一边输水一边完成修复。
方法上的一个重要限制是:为了降低辐射影响,每株茎只扫描一次。因而,研究比较的是不同组的活体截面,没有逐帧追踪同一根导管从含气变为充水。这里的面积变化支持部分恢复的解释,但不是整株导水率恢复了相同比例的直接测量。
研究还观察到纤维与含气导管附近的空间关系。纤维的含气面积在组间较为分散,干旱终点的总体差异并未在那项比较中达到统计显著;原文还保留了一株偏离较大的快速干旱样本。因此,不能把总体平均差写成所有慢旱植物都必然有更多空纤维。
更有机制意义的线索是连接方式。在这些样品的解剖观察中,没有看见纤维与导管直接相通的纹孔,而看见了它们各自与射线薄壁细胞的联系。作者据此提出:部分纤维可能提供储水,活细胞再参与把水转送到需要恢复的导管。
这是一条有解剖和空间关联支持的假说,尚不是用示踪直接量到的完整水流路径。缓慢干旱还可能改变碳储备、活细胞状态和其他恢复条件;单凭附近是否有空纤维,不能选出唯一原因。
另外,影像中没有气体的纤维,也不一定都是装满可随时调用的自由水。原文指出,一些纤维可能仍含尚未完全降解的细胞残余,微CT不能把这两种情况完全分开。
还需要哪些观测,才能把隔离与恢复判断得更准
对于隔离功能,最有价值的是把局部压差、膜片位移和气液界面位置放到同一个时间轴上。这样才能区分:压差不够、压差消失太快、膜片响应太慢,还是已经接触却没有形成可靠密封。
对于压力反馈,需要测量参与承压的有效体积、组织响应及外流通路,而不只是套用树高或一段导管长度。
对于恢复,需要在尽量减少测量扰动的条件下追踪同一通路,结合水的来源、活细胞状态与实际导水能力。含气面积变小、某类细胞还有水和整株导水恢复,是相接但不同的终点。
这些证据共同支持的理解是:树木靠界面屏障、被动封口、管路分隔和需求调节限制气体传播;气栓后的恢复则还需要合适的水源和生理条件。结构是否有效,取决于它在当时那条管路里受到怎样的压力、来不来得及动作,以及周围还有什么资源可以接续。