协调,不一定是大家同时做同一个动作
看一排正在拍动的纤毛,可能出现一种很整齐的图样:左边先弯,邻居稍晚一点,再往右更晚一点。图样像波一样走过,但每根纤毛仍固定在自己的位置上完成循环。
这类相邻单元保持一定拍动时差的图样,文献称为metachronal wave,通常译作异时波。它与“全部同时挥动”不同,也不同于一根纤毛内部沿长度传播的弯曲波。1
因此,至少要分清四个问题:大家平均每秒拍几次;彼此保持什么时差;有效行程朝向哪里;最后有没有把液体持续送往一个方向。
前一个问题得到肯定答案,不能自动替后一个问题作答。两根可以同频却不断相互赶超;也可以一前一后、保持稳定差值。许多单元相位关系很稳定,若朝向或轨迹不合适,净输运仍可能很弱。
相邻单元怎样把“走快了一点”改回来
纤毛的拍动由内部马达、柔性结构与周围负载共同决定。若它对外界作用完全没有反应,无论邻居怎样推水,都只能改变所需的力,无法校正它的节拍。
实际运动单元具有一定的可调整性。周围流动会改变阻力和形状;内部机械联系也可能传递形变。它们使一个单元在某些阶段稍微加快、在另一些阶段稍微放慢。经过许多周期,小变化可以积累成稳定的时差。1
把一个完整周期的位置记为相位$\phi$,两单元的相位差记为$\delta$。一个常用的简化关系是:
$\Delta\omega$表示没有耦合时的频率差;后一项表示相互作用能怎样校正相位差。这是特定约化模型,不能把所有真实拍动都压成同一条正弦曲线。
若两者原本同频,$g>0$会把小偏差推向同相;$g<0$则会把偏差推向相差半个周期的反相。若本来的频率差太大,超出这条恢复作用能够补偿的范围,就难以持续锁定。
这里所说的锁定,需要看相位差是否不断积累新的整圈滑移,而不是每次都把数字折回一个周期后,发现它“总在一个有限区间里”。弱噪声下,锁定还可以伴随波动和偶尔的相位滑移。
这个方程解释了什么样的反馈能协调节拍,尚未说明$g$来自流体、内部连接还是其他作用。那一步要靠区分性实验。
两个分开的细胞,证明流体确实能够传递节拍影响
Brumley等2014年研究了两枚彼此分离、各自固定的团藻体细胞。它们之间没有共同的细胞内部连接,但靠近时可以形成持续的拍动协调;距离变大后,协调减弱,调整相对朝向又可以得到不同的相位关系。2
这里每枚细胞本身有两条已协调的鞭毛,研究把它们的周期作为一个运动单元来比较。因此,这项实验直接支持的是:两个独立细胞之间,周围流体能够产生足以协调节拍的作用。 它并没有同时证明一枚细胞内部的两条鞭毛也主要靠同一路线。
研究还观察到拍动形状随细胞间距改变。这很关键:流体联系会改变运动本身,给相位校正提供可能,而不是只在两条完全预设的轨迹之间计算流速。
同一类可见协调,放在不同对象上,主导联系可以不同。2025年的一个实验恰好把另一条路线分离出来。
2025年的隔板实验:保持同步、波动大小与反相状态不同
Zorrilla等在同一枚固定衣藻的两条鞭毛之间放入物理隔板,显著削弱两侧流场的联系;另外用单鞭毛细胞的流场检查这种隔离效果。3
普通型细胞在隔板存在时仍保持同相拍动,而且短暂受扰后还能恢复。对这一配置而言,外部流体联系被削弱并未消除协调,支持细胞内部联系足以维持这一模式。具体通过哪些内部纤维、以怎样的力学参数完成,仍不是此次直接测力的结果。
另一类ptx1细胞的表现不同。它原先会在同相和持续反相拍动之间切换;隔板加入后,较长的反相段消失,同相仍能维持,只夹杂短暂的大偏差。作者把它解释为内部与外部作用的竞争,内部状态起伏与流体稳定反相共同参与;尚未逐次直接测到全部内部变化。
这也说明,“同步还在”不等于“隔板完全没影响”。本篇从公开相位处理表重新配对,同相片段中,8个普通型细胞和11个有完整配对数据的ptx1细胞,在隔板存在时的相位差方差都更大。4
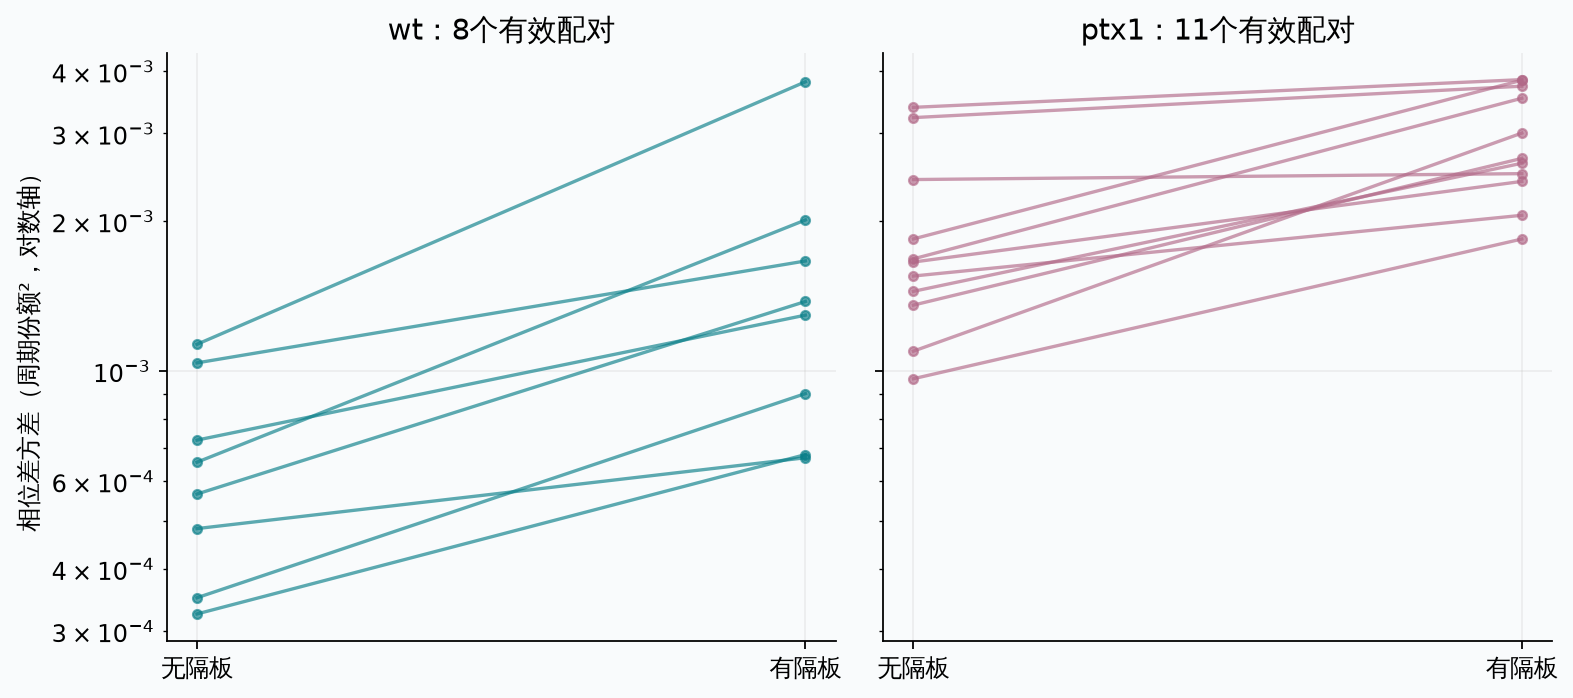
按每个细胞先算“无隔板方差/有隔板方差”,再等权平均,普通型为0.476,ptx1为0.642,与作者公开汇总一致。ptx1虽然有14个纳入实验的细胞,但其中3个缺少可用的配对方差,不能填成零,也不能说此处用了14个完整配对。
普通型平均比值的倒数约为2.10;如果反过来,先给每个细胞算“有隔板/无隔板”,再取平均,则是2.29。它们不是计算冲突,而是不同汇总顺序。较稳的观察是加入隔板后相位波动增大,具体“平均增加几倍”需要说明口径。
隔板也可能改变局部负载和感知,并非只改变一个抽象耦合常数。原文用有效势和有效温度描述相位统计,但它们不是直接测得的细胞弹簧刚度或热温度;尤其当波动有记忆时,从统计曲线到内部力学参数还需要模型假设。
所以,这组实验支持不同路线在不同状态下发挥作用。它没有要求我们在“流体有用”与“内部连接有用”之间选一个通用于所有细胞的答案。
流体在微观尺度,也不总能瞬间跟上拍动
微小物体在水里运动,常可以忽略对流惯性,使用黏性主导的近似。但“对流惯性很小”与“流场每一刻已经调整到稳态”,是两个不同条件。
周期性推动液体时,动量和涡量的分布需要时间调整。一个与此有关的时间尺度是:
$d$为考察距离,$\nu$为运动黏度。要判断非稳态效应,应把这个时间与拍动周期$T$比较。距离增大十倍,这个扩散时间就增加一百倍。5
这里的“流体记忆”来自非稳态流动,不要求液体具有黏弹性。扩散也没有一个整齐的硬前沿;不能理解成邻居必须等待固定的传播秒数,才突然受到作用。
von Kenne等2025年用弹性圆轨道上的小球代表运动单元,把流体对过去驱动力的响应纳入耦合。模型中的轨道半径可以因负载稍微改变,再由弹性作用恢复;它保留了校正节拍所需的响应环节。56
本篇按原文的历史积分重算相位作用。在保持同一弹性参数时,流体响应的时间关系变化,能够使有效恢复系数换号:原先偏好的同相,变成偏好反相。
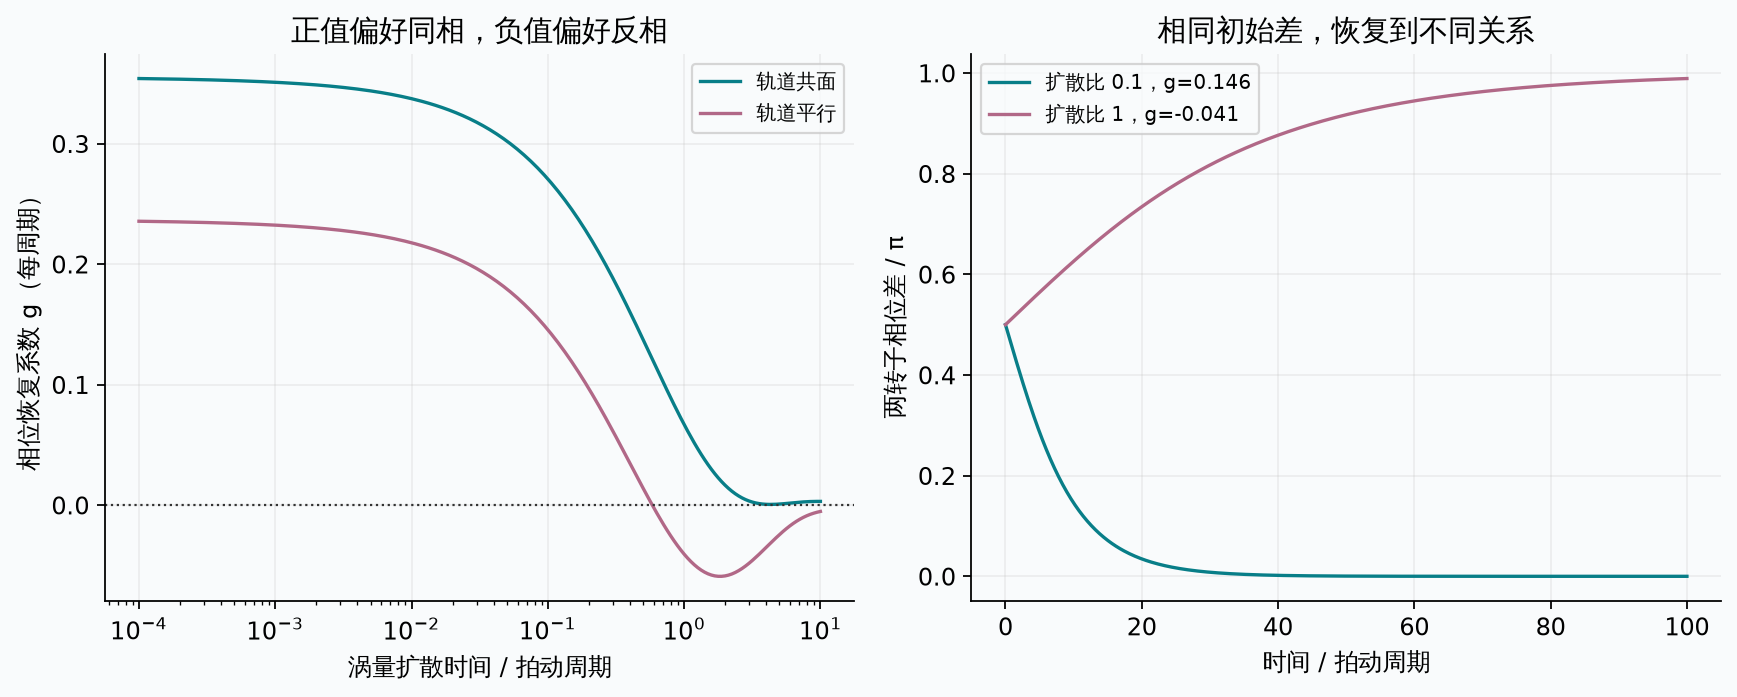
用两种不同积分方法核对历史作用,并把两单元的相位方程与解析解比较,都支持图中的数值关系。但这只确认了该模型里的机制,没有把真实纤毛的全部内部马达、复杂波形与近场接触都纳入。
从两根到一排,哪些相位图样能够稳定
两根可以保持某种相位差,不意味着一整排只会有一种排列。一个单元同时受到许多邻居影响,近处与远处的作用可能不同;边界还会改变它有多少邻居。
2025年模型表明,非稳态流动既改变相位作用,也改变它随距离衰减的方式。相邻单元之间并非只有一个与距离无关的“拉齐”常数;这种空间结构可以允许有限波长的异时波稳定下来。5
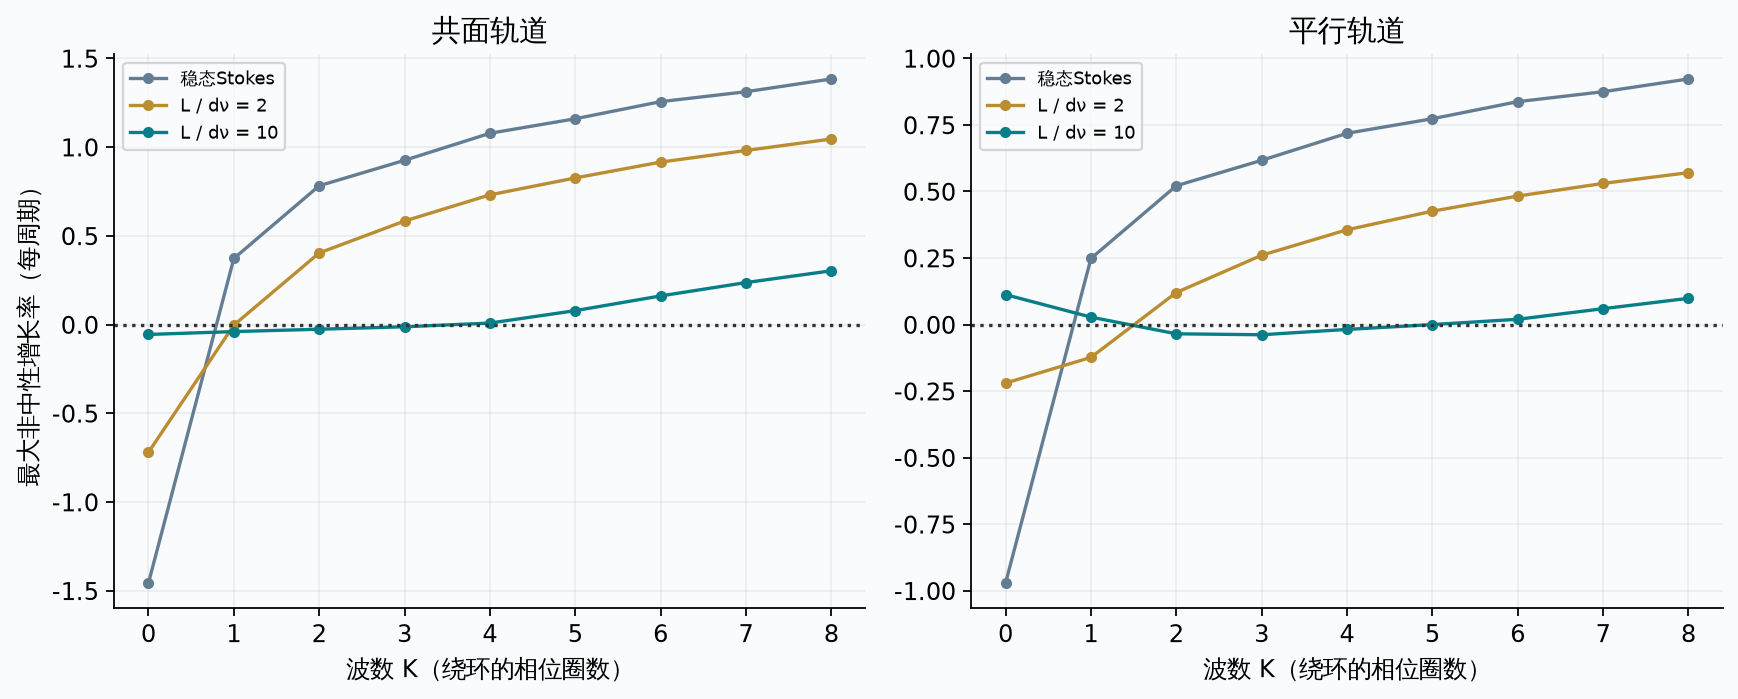
本篇复算了200单元、使用周期边界的一维链。用$K$表示跨过整个周期链时,相位累计绕过多少圈。$K=0$表示同相,非零$K$表示相邻单元有规则的时差。
在所选参数下,稳态Stokes近似只保留同相状态的线性稳定性;加入非稳态流体响应后,稳定的波数范围改变。例如,在平行轨道配置、链长为文中黏性穿透尺度的10倍时,非负波数中的$K=2,3,4$稳定,而$K=0$失稳。
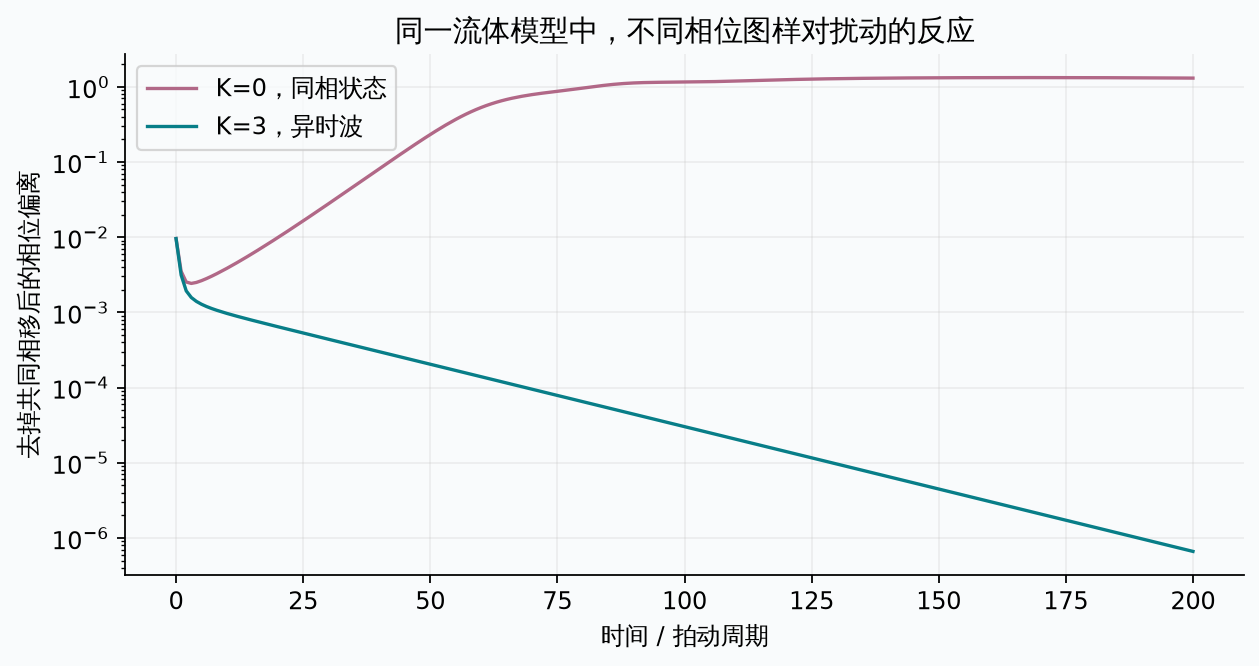
这里还实际做了一次扰动对照:在同相状态与$K=3$的波上加入同样的小相位偏差,前者明显离开原状态,后者恢复;更细的时间步得到一致结果。
最后一句限制需要认真保留。本篇另一次随机初始状态计算,延长到5000个周期后,形成的是持久的空间调制,尚未进入均匀相位差的相对稳态。因此,本篇不能声称完整复现了原文随机初始状态的图,也没有证明所有起点都会得到一种整齐波形。
这区分了两种知识:我们可以判断某种波受到小扰动后是否恢复;从杂乱初始状态真正形成什么,还要检查非线性演化与吸引范围。
壁面、边界和个体差异,也会改变波
2025年的上述模型研究无限体相流体,未加入细胞表面的固定壁面。它不能被概括成“只有流体记忆才能形成异时波”。
同一研究方向2024年的近壁模型,已经展示稳态黏性流体也能支持异时波。壁面改变流动的空间结构,开放链的端点又打破左右邻居的对称;弹性参数和初始条件会影响最终波向与波长。7
更近的2026年微转子阵列研究提供了另一种例子:非生物转子可以形成相位有序,空间上不同的固有转速又能够驱动相位波。公开作者稿比较了不同相互作用,提出偶极作用与转速差的机制。这是另一个物理系统,不能替活纤毛证明具体耦合路线,却能提醒我们,类似的波形并不只对应一种成因。9
因此,识别真实纤毛阵列时,要同时看运动单元怎样响应负载、离壁面多远、邻居如何分布、个体本来有多大差异,以及是否存在内部或细胞间联系。仅看一张“波很漂亮”的图,还不能在这些解释之间作选择。
有相位波以后,液体就一定输送得更多吗
还需要把力与流动接起来。相位方程能告诉我们谁先谁后,却未必计算了流量。
在一个固定、无滑移壁面附近,平行于壁面的点力$F_x$作用在高度$z$处,对应的体积流量满足:8
$\mu$为动力黏度。这个结果说明,同样的平行点力,作用高度不同,输运效果也不同。近壁负载本身还可能增大,所以局部阻力与远处输送效果应分别判断。
本篇用一个稀疏、互相负载可忽略的示例:小球沿预设椭圆轨道运动,较高处向右、较低处向左。其横向力按速度乘常数阻力计算。于是,一个周期里,两个方向的流量贡献不完全抵消;几何上的高低差提供了正的平均输送。
接着,让12个相同单元分别采用三种节拍:全部同拍、依次错拍向右成波、依次错拍向左成波。它们的轨迹和朝向保持相同。
计算结果是,三种情况下的周期平均流量都等于单根平均值的12倍。全部同拍时,流量强烈起伏,甚至会瞬时回流;均匀错开的两种相位波,则在这个理想例子中把起伏相互抵消。相位组织改善了平稳性,但没有提高这一例子的平均流量。
再加一个对照:大家仍全部同拍,但一半单元的有效行程朝左,另一半朝右。净流量相互抵消。相位很整齐,仍需要合适的朝向才能共同输送。
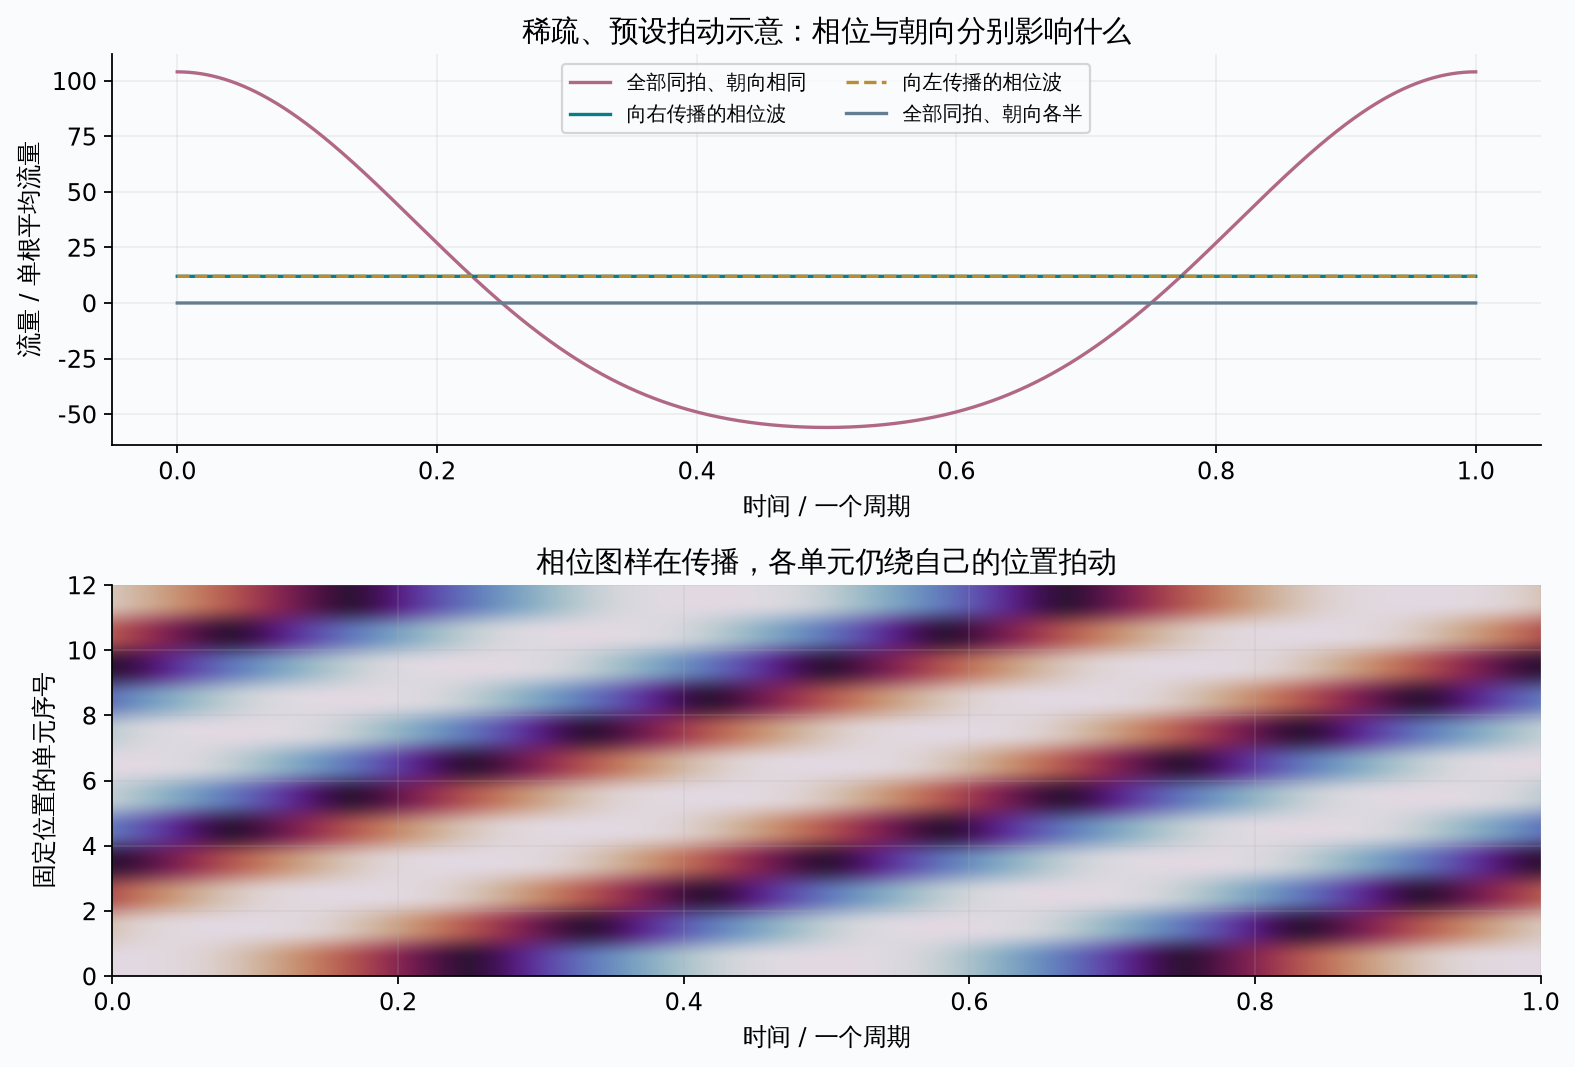
这些结论依赖“轨迹预设、相互负载忽略”。在密集真实阵列中,邻居会改变所需驱动力、拍动形状或频率,黏液等介质的流变也会影响结果,平均输送和耗能便可能随相位关系改变。因此,不能反过来把这个例子推广成“异时波从不提高输运”。
零脉动也是相同单元、规则相位和上述近似下的抵消结果。本例没有计算真实纤毛的能量消耗或悬浮物清除率。
它说明的是:平均流量、流量是否平稳、耗能、混合与真正带走多少物质,是不同功能指标。要说哪种协调“更好”,应先说明比较哪一项,以及保持了哪些条件。
从协调到功能,需要完整的几步
现有证据支持一个具体的过程链:内部周期产生拍动,机械与流体作用改变负载和节拍,相位偏差在相应条件下得到校正;空间几何与边界允许某些集体图样维持,最终轨迹、朝向和相互负载共同决定液体怎样运动。
| 观察到什么 | 它能帮助判断什么 | 还需要补什么 |
|---|---|---|
| 两单元同频或保持时差 | 存在节拍协调的候选现象 | 排除共同驱动,并确认相位提取与滑移 |
| 减弱外部流体联系后仍协调 | 该配置中还有足以维持协调的路线 | 内部具体力学过程、隔离与负载改变的边界 |
| 距离、朝向改变后协调改变 | 支持空间耦合与负载响应 | 哪种流体或机械作用主导,以及适用尺度 |
| 一条波受扰后恢复 | 该图样附近的稳定性 | 从不同初始状态能否形成、是否存在其他结局 |
| 相位图样规则传播 | 时差具有空间组织 | 平均流量、方向、耗能与物质交换的独立读数 |
许多纤毛能够在没有逐拍统一指令的情况下协调,原因在于每个单元都能影响邻居,也能被邻居和环境影响。把这种协调接到持续输运,还需要合适的几何、朝向和负载条件。流体与内部结构在不同层次合作,其相对重要性由具体系统决定。
可回查:同细胞方差配对、非稳态耦合参数、两单元相位过程、积分方法对照、周期链稳定区、扰动恢复、随机初始状态的余留行为、预设拍动的流量计算、计算汇总与限制。