一片叶子消失后,碳还可能在土里
落叶变碎、腐烂,最后看不出叶子的样子。这不意味着其中的碳已经全部回到空气中。
一部分碳在分解过程中变成二氧化碳;一部分进入微生物的身体,随后又进入其他有机物;还有一部分随水移动,或与矿物和已有有机质形成结合。叶子的形状消失了,来源于这片叶子的碳原子仍可能留在土壤里。
因此,“留了多久”首先需要说明追踪什么。追踪原来的完整分子,与追踪来源于某次输入的碳原子,答案可以不同。用同位素作标记,主要是在追踪来源;它不会自动证明多年后的标记仍处在最初的分子中。
本题关注的是:碳经过哪些过程留在土壤里,这些保存条件怎样维持,又会在什么情况下失效。 土壤不是一个性质均匀的容器;几微米的接触差异、几厘米的层间迁移和许多年的输入历史,都可能改变答案。
分解需要一条能够走通的路径
有机物能够参与某种分解反应,并不等于在当时、当地就会迅速分解。
先要有相应的分解能力;有机物和起作用的酶等还要能接触,产生的可利用物质要能到达微生物,后续代谢又需要合适的水分、养分及电子受体等条件。一个环节受到限制,整体过程就可能很慢。12
这有点像原料就在附近,但通道、搬运和后续处理没有接起来。这里的“附近”也不能只按肉眼距离理解:两样东西在同一团土里,中间可能隔着不连通的孔隙,或者分别处于充水和充气区域。
水在其中有双重作用。过干时,溶解和扩散可能受限;水增加能连通一部分传输路径,却也可能占据原来供气体通行的孔隙,使氧的补给跟不上消耗。所以,不能仅凭“湿”或“干”给保存效果排一个放之四海而皆准的顺序。
化学结构仍然参与这条过程链:它影响哪些反应可发生、分解需要什么能力、产物容易怎样结合。把环境和接近性加入解释,并不是把分子性质删掉;要判断的是当前哪一步最限制总体速度。
矿物怎样帮助碳留下来
矿物会提供有机物可以结合的表面,也会参与构造孔隙与团聚体。不同矿物的表面电荷、反应位点和已有覆盖层不同,有机物并不是均匀地贴在一层干净的“墙面”上。2
结合可以降低一部分有机物进入溶液、被酶接触或被微生物利用的机会。孔隙隔离则会改变它与分解者相遇的频率。这些作用可能同时发生,但不能相互替代:观察到某份碳与矿物同处一处,还不知道主要限制是结合、空间接触,还是局部环境。
研究常把土壤分成颗粒有机质(POM)和矿物结合有机质(MAOM)等组分。这些名称很有用,不过实际结果依赖分离方法。它们是帮助观察物质分布的分类,不是贴上以后就附带固定寿命的标签。
特别是,结合本身也处在变化中。其他有机物可能竞争或交换,水溶液化学会改变,矿物可能转化或溶解。一些矿物表面还会促进有机物反应。于是,“结合得上”和“能一直保存”需要分别解释。
2026年的标记试验,把三种去向同时摆了出来
Wang等在长白山野外环境中观察了三种构建的模型土,黏土含量分别为20%、40%和60%,追踪两类微生物残体来源的标记碳氮,持续386天。3
在这组条件下,黏土较多的处理留下了更多标记碳,估计的标记二氧化碳累计释放较低;下部土层也检出了从上部迁移而来的标记。微观成像中,新标记较多地出现在已经有有机质覆盖的矿物区域,而不是裸露表面。
这把“矿物帮助保存”的图景推进了一步:新进入的物质可以与已有的矿物—有机质结构相联系,保存过程不必每次都从一块空白表面开始。不过,共定位提供的是空间关系,不能单凭它读出每一种化学键的强度。
本篇从作者公开表格重新汇总了六种来源—黏土组合、四次土壤采样的结果,并重算气体通量的时间积分。4 下图按最初加入的标记碳为100%,把主要观测量摆在同一张图上。
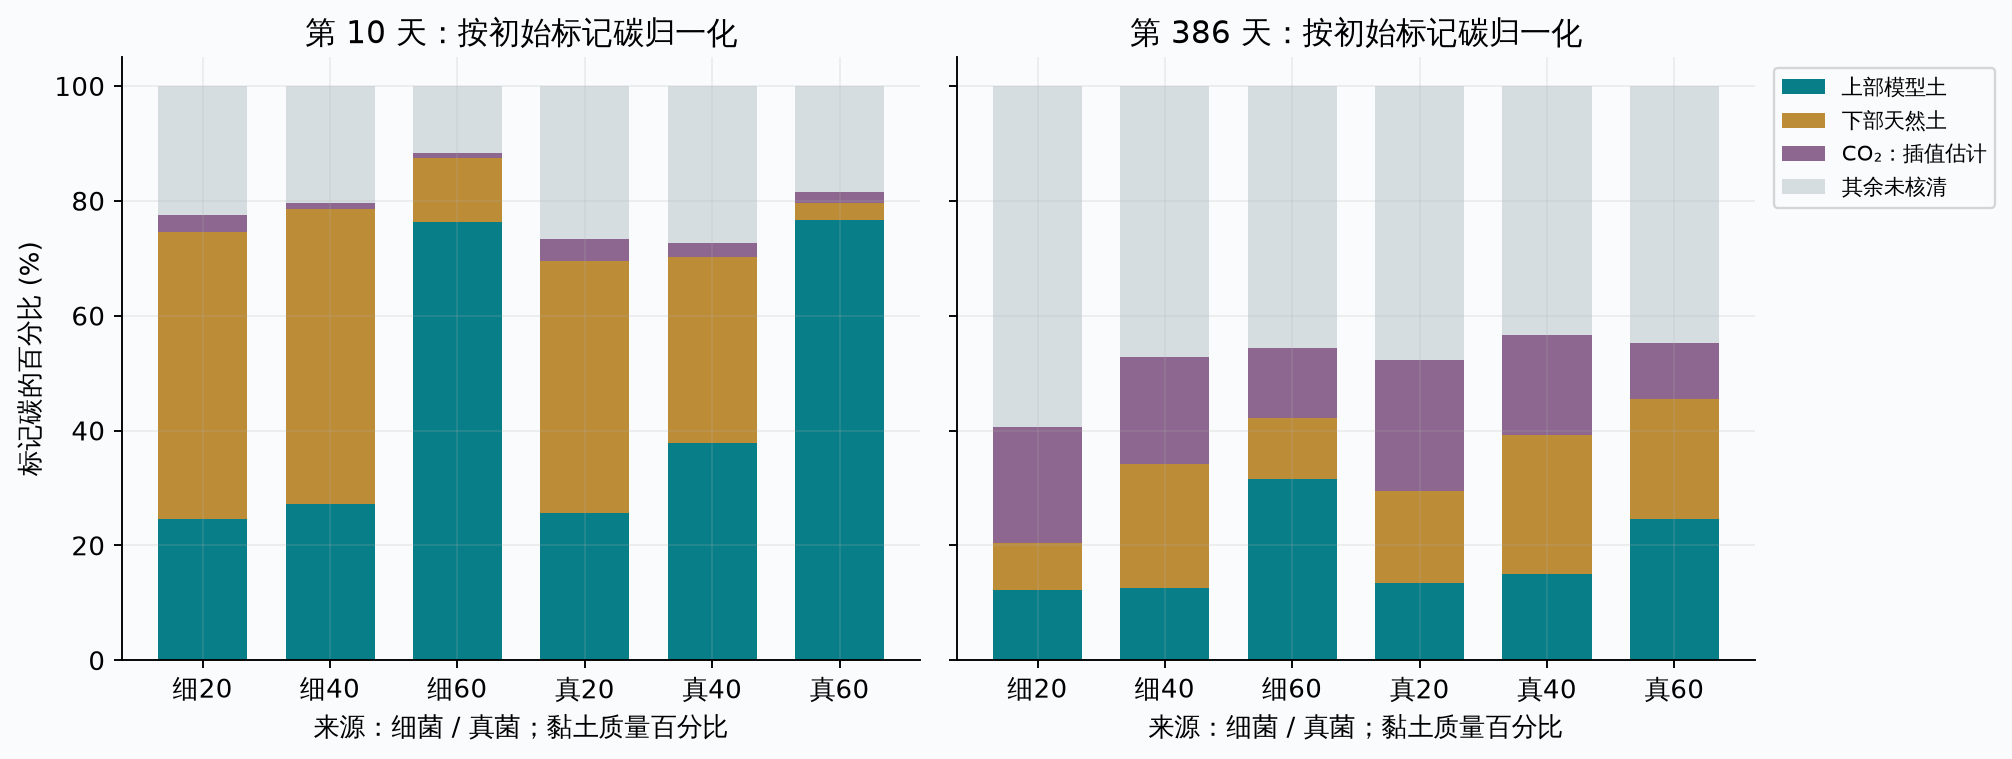
以细菌残体来源的标记碳为例:
| 黏土含量 | 第10天上部土保留 | 第10天下部土回收 | 第386天上部土保留 | 至第386天CO₂累计估计 |
|---|---|---|---|---|
| 20% | 24.60% | 50.00% | 12.28% | 20.17% |
| 40% | 27.14% | 51.39% | 12.59% | 18.68% |
| 60% | 76.27% | 11.13% | 31.49% | 12.17% |
这些数字展示了两个不同层次的事实。高黏土处理在原层留得更多;同时,低黏土处理里相当一部分早期“少掉”的碳,可以在下面找到。仅看原层保留量,会把迁移和分解混在一起。
还有三个边界关系到怎样理解结果。
第一,各处理的重复是同一样地内的土柱。处理在样地层面的独立重复不足,不能把这项试验讲成跨地点普遍规律。5
第二,黏土含量改变时,表面积、水分、孔隙和微生物状态一起变化。氧受限是作者提出的机制解释;本篇核到的是水分及估算的充气孔隙等证据,并非直接、独立操纵氧供应后获得的因果份额。统计相关和成像合在一起增强了机制图景,仍没有把各条路径逐一分账。
第三,气体只有八次采样,中间有长空档。重新积分可以核对作者怎么算,却不能补出没有连续测到的变化。图里余下的差额,也不能全部指定为更深迁移或全部指定为漏测呼吸。
另外,下层某天回收到的标记是那一天仍在下层的库存,不是历史上所有穿过界面的累计流量。后来下层变少,既可能继续下移,也可能继续分解,仍需新的观测区分。
一个只看表层就分不清的例子
把初始一单位碳放进上层,记作$A$;下层的碳记作$D$,累计转成二氧化碳的量记作$R$。考虑一个自选的简单模型:
$r$是上层呼吸损失率,$\ell$是下移率,$r_D$是下层呼吸损失率。这个封闭示例满足$A+D+R=1$;现实土壤还会有侧向或更深出口。
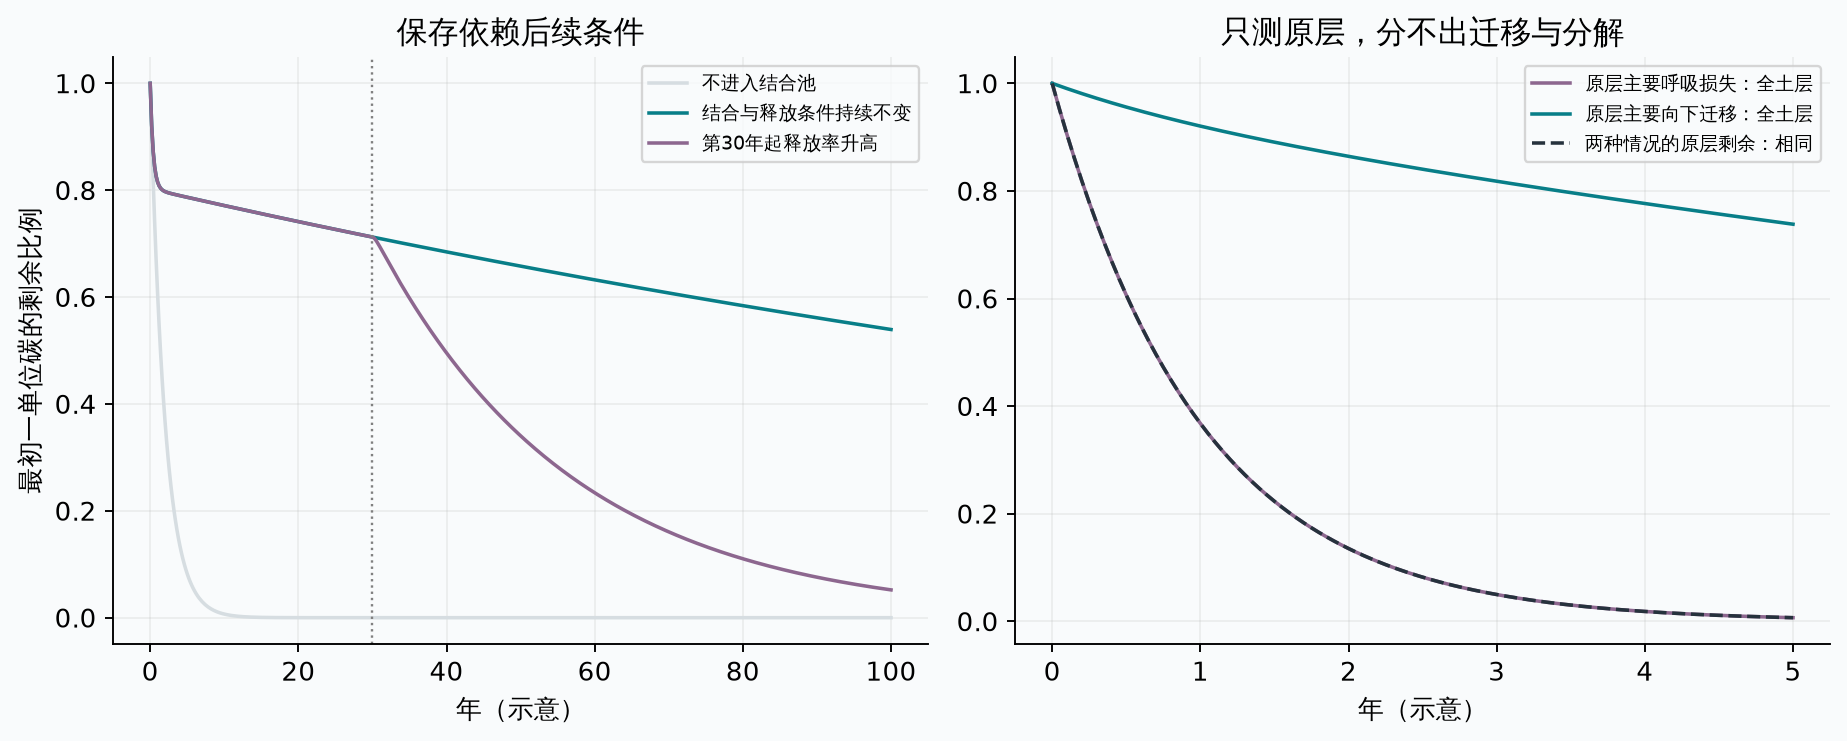
现在比较两种情况:一种$r=1,\ell=0$,另一种$r=0.1,\ell=0.9$,下层$r_D=0.05$,单位都为每年。它们的$r+\ell$相同,所以上层的下降曲线完全相同。
实际算到第5年,两者上层都只剩初始量的0.67%。但主要向下迁移的情况,全土层还剩73.82%,累计变成二氧化碳的比例为26.18%;原层全部通过呼吸损失的情况,全土层只剩0.67%,累计二氧化碳比例为99.33%。
这不是两个真实地点的预测,而是一个可核查的反例:同一条原层下降曲线,能够对应非常不同的全土层保存和大气排放。 要识别机制,必须增加层间与气体信息,不能只把曲线拟合得更精细。
结合是一个状态,后续条件会改变它的效果
再用两个状态解释矿物结合。$A$表示较可接近的碳,$M$表示处在结合状态的碳;结合率为$b$,释放率为$u$。为把问题讲清,这个示例只允许$A$以速率$r$转成二氧化碳:
这是一种刻意简化:自然条件下,结合状态也可能发生反应,而且结合位点并非无限。这里先看可逆交换本身能造成什么。
一单位碳从$A$出发,取$b=2,u=0.02,r=0.5$,单位为每年。较多碳先进入结合状态,之后缓慢释放;释放出来的碳又可能重新结合。因此,即使任何一次结合都不必永久,整个系统仍能表现出较长保存。
在这些条件持续不变时,第100年还剩53.93%。如果前30年完全相同,此后只把释放率提高到0.2,第100年就只剩5.20%。两个系统在第30年以前具有相同历史,之后却出现很不一样的结果。
这个一次性输入模型没有新的碳补充;只要释放与呼吸持续发生,碳最终仍会全部离开。第100年的留量只表示有限时间的保存,不是永久封存比例。
现实中,哪些变化可能使这种“再释放”变重要,需要实验支持。Keiluweit等2015年的研究比较了不同根系分泌物成分的影响:在其人工根际条件下,改变矿物—有机物联系、提高原有土壤碳的可接近性,可以与单纯增加可利用能量的路线区分。6
它为保护能够被解除提供了具体依据,却不意味着所有根系活动都会减少碳。新输入既可能增加新碳的保存,也可能改变旧碳的分解;最终库存要看两边相加后的收支。上述模型只演示其中一条路线,没有把新输入、微生物数量和所有矿物反应都算进去。
长期追踪提醒:能留下来的物质,也不只有一种
Leuthold等2025年发表的草原研究,追踪植物输入与火成有机物(PyOM)的来源碳氮。PyOM指有机物经燃烧或热作用形成的物质,其中一些成分的结构与未经历这一过程的植物材料差别很大。7
本篇用公开观测表和作者计算口径,重算了后期0–10厘米土壤里仍保留的输入碳:植物输入在作者主要使用的F处理历史下为7.03%,另一个NF历史处理为8.82%;火成输入为60.82%。先在同一野外重复内加总深度,再对四个重复取平均,才能得到这个分母一致的比较。8
这些差别确实很大,但实验不是只改变一种化学键的对照。作者2024年学位论文中的同项研究章节说明,植物与火成输入的起始年份、放置方式不同;植物追踪约120个月,火成输入约101个月。正式资料中的部分月份标签仍有混用,本篇不把它们说成完全相同的十年处理。9
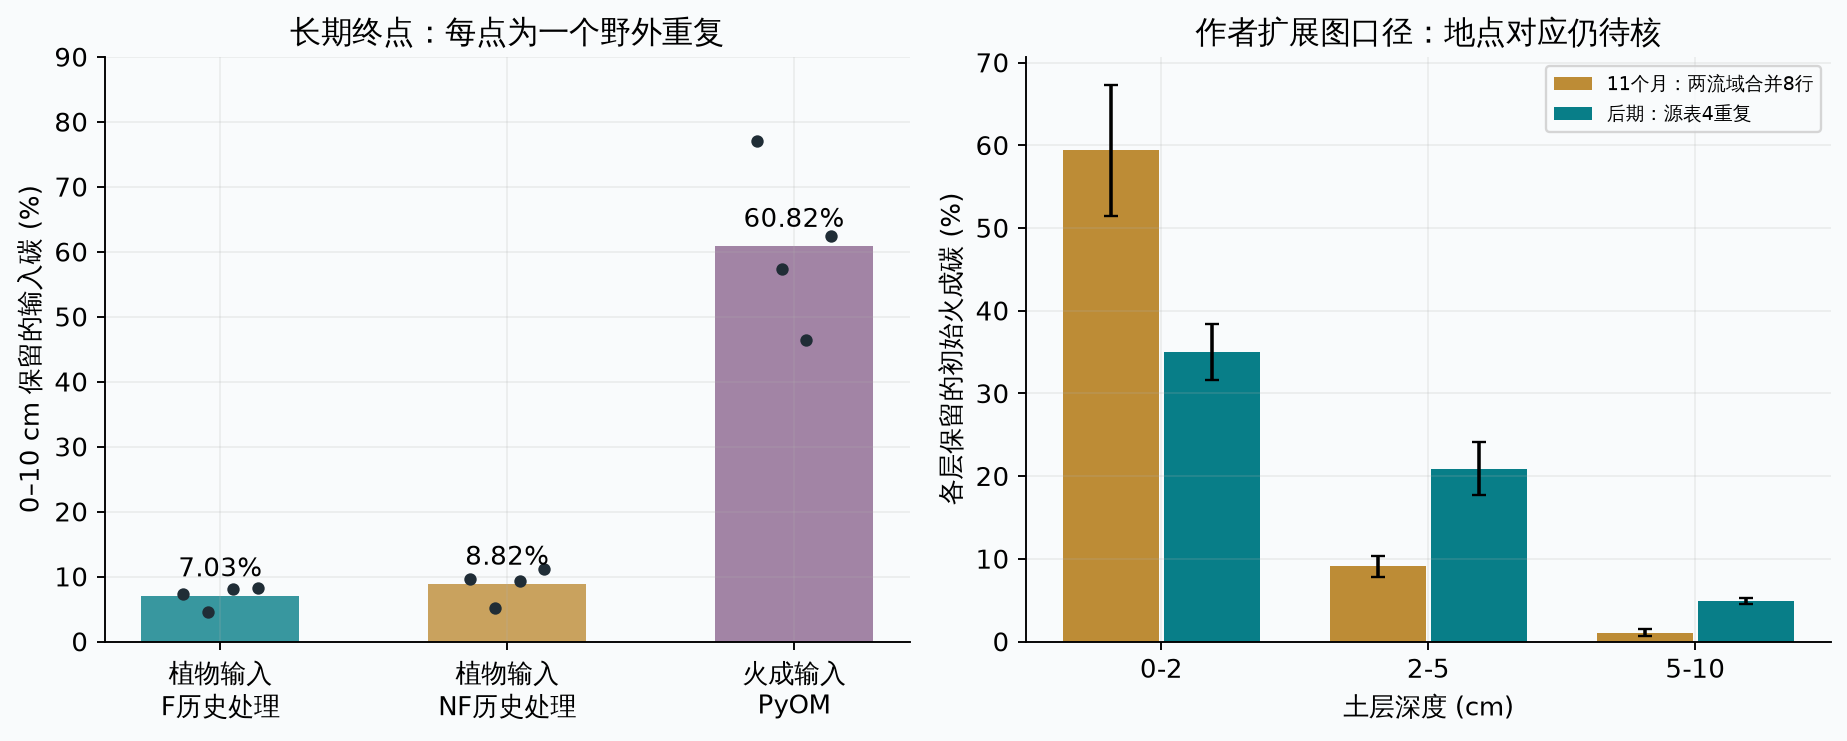
这里对机制更有启发的是分级结果:长期留下的植物来源碳,较多位于矿物结合组分;火成来源碳则主要还处在颗粒有机质组分。正式补充材料与作者早期研究章节共同支持这一差别。79
因此,POM不总能等同于“马上分解”,MAOM也不等同于“以后都安全”。同一个分级名称中,可以包含不同来源、经历和反应机会的碳。
反过来,主要留在同一分级中,也不等于分子完全没变。正式补充材料的红外分析提示,一些火成有机物的化学特征发生了变化,即使它们没有明显转移到另一个操作性组分。组分位置、分子变化和来源碳是否仍在,要分别观察。
这项长期研究对本篇是重要补充,但读取范围需要说清:本篇取得了正式摘要、扩展图和补充材料、公开数据与代码,以及作者2024年的相应完整章节;未取得2025年正式主文全文。重算支持的是上述具体指标,不冒充已复现全部分级模型。
库存很老,为什么流出去的碳仍可能很年轻
想象一个仓库有两类货物:一类经常进出,另一类很少出库。去仓库里随便抽一件,容易遇见积压很久的货;去出货口抽一件,却容易遇见最近才入库的货。
土壤碳也存在类似的抽样区别。Sierra等2018年的理论研究把它写成了年龄分布与通过时间分布:10
- 库存年龄:现在仍在土里的一份碳,已经待了多久。
- 通过时间:正在离开系统的一份碳,从进入到离开一共用了多久。
- 未来剩余时间:现在这份碳还会待多久,取决于接下来的条件。
本篇用一个稳定输入的两池模型实际算了一遍。每年输入1单位碳,其中90%进快池、10%进慢池;快池损失率为每年1,慢池为每年0.001。两池之间暂时没有交换,长期保持相同条件。
达到稳态后,快池库存为0.9单位,慢池为100单位。于是,尽管只有10%的新输入走慢池,现有库存却有99.11%在慢池中。去库存里抽样,几乎总是抽到慢池。
从离开通量看则不同:稳态时,快池每年流出0.9单位,慢池流出0.1单位。大多数出去的碳来自快池。
计算得到,库存平均年龄约991.1年,而离开通量的平均通过时间为100.9年;两者的中位数分别约684.2年和0.81年。少量很慢的碳把平均通过时间拉长,因此平均数与中位数本身也回答不同问题。
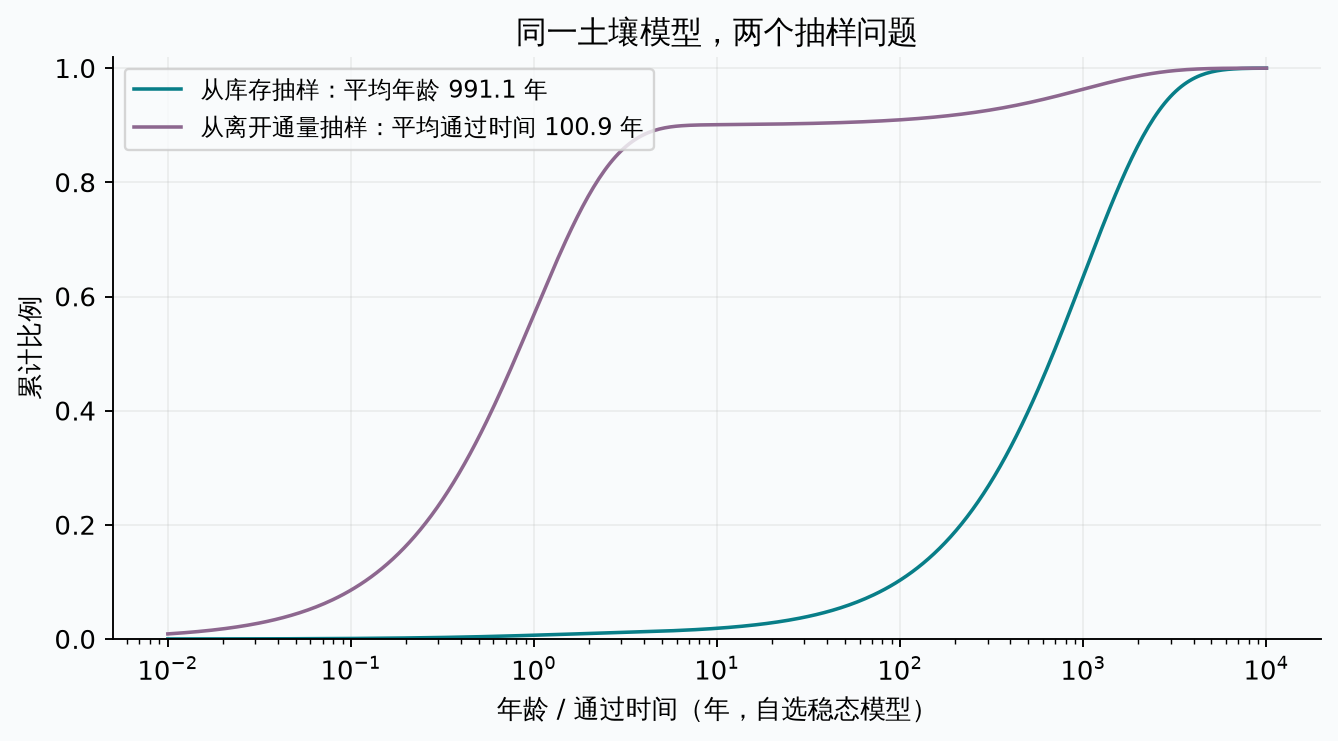
常见的“库存除以每年流出量”,在这个稳态例子里等于100.9年,对应平均通过时间,并不等于991.1年的库存平均年龄。把一个数统称为“土壤碳寿命”,容易把这些量混起来。
这个模型从一开始就设了快慢两种损失率,所以它没有解释真实土壤为什么形成慢池;它解释的是即使机制参数已经给定,不同抽样问题仍会得到不同时间。慢池从何而来,还要回到矿物、接近性、微生物及环境的证据。
旧碳已经保存了很久,是它的历史事实;它以后还会保存多久,则仍需检查维持条件。上一节可逆结合模型已经展示,相同过去可以接上不同未来。
为什么“能拟合很久的保存”还不足以选出唯一机制
另一个有力的候选解释是:易利用底物减少之后,微生物数量或活性下降,剩余物质的处理速度也随之下降。表观的长期保存,可以部分来自分解活动本身的反馈,而不是每个旧分子都具有极强的永久保护。
Woolf和Lehmann在2019年的SOMic模型中,把底物供应、微生物活动与矿物结合放在一起,能够描述长期碳观测。模型仍然包含矿物作用,只是不要求额外预设一个本征上极慢的惰性池。11
这说明存在另一条可行机制。但作者也承认,其他具有不同结构的模型能够描述相近数据;拟合能力本身不能决定哪一种真实过程占主导。
对一个具体地点,更有区分力的问题包括:
| 想区分的机制 | 需要增加的观测 | 仍需排除的解释 |
|---|---|---|
| 原层分解与向下迁移 | 同时追踪原层、下层及来源可分的气体 | 更深或侧向出口、气体采样空档 |
| 结合保护与局部活动受限 | 矿物联系、可利用物质和分解活动的共同变化 | 水分、氧、养分同时变化 |
| 新输入促进旧碳分解 | 分开新旧来源的碳与净库存 | 只测到新碳自身的呼吸 |
| 同一组分持续存在与内部替换 | 来源、分子特征和组分库存的重复追踪 | 总量不变掩盖进入与离开 |
| 过去保存久与未来仍保存久 | 条件变化后的释放与再结合轨迹 | 用历史年龄直接代替未来响应 |
这些观测不会让所有问题一次解决,但能让不同解释承担不同的、可以被检验的预期。
保存是一个持续发生的结果
本篇较有依据的回答是:化学性质决定一部分反应与结合可能性,矿物和空间结构改变接触机会,微生物及水氧养分条件改变处理速度,迁移又把碳带入新的环境。它们共同塑造碳留在哪里、以什么形式留下,以及什么时候离开。
保存也不要求所有过程停止。一份碳可以经历分子转化、进入微生物、再次结合,来源碳仍然留在土壤中;某个组分的总量可以大体不变,里面的物质却不断更新。
具体到地点,尚不能仅凭黏土百分比、MAOM比例、一条下降曲线或一个年龄值,独自给出未来保存年限。2026年试验帮助区分了若干去向,长期追踪提供了不同材料的保存历史;各机制的独立贡献、观测边界之外的出口,以及环境改变后的寿命,仍需要相应证据。
可回查:黏土处理观测重汇总、气体积分核算、长期端点逐层数据、长期端点汇总、扩展图口径、可逆结合模型、层间迁移模型、年龄与通过时间、计算汇总与限制。