多一条路,为什么值得付钱
如果只需要从水源向两个固定地点供水,直觉上各接一根管子就够了。再把两个用水点横向连起来,看起来只是多修了一段:它既不增加水源,也不增加用水点,还要消耗材料。
叶脉却经常包含大量闭合通路,而且粗细不同的环路彼此套接。这里的“环路”指拓扑上能找到不重复边的闭合路线,不意味着水在某一时刻沿着它不停绕圈。由压差驱动的流动可以在同一个环路中分开、汇合,也可以随着需求变化而反向。额外连接的价值,需要放进具体的供水任务里判断。2 3
本文以叶脉为主要观察对象,以线性输运网络为计算对象,区分三个问题:现成的环路能做什么;有限预算下什么时候值得维持它;发育过程中它又怎样形成。这三个问题有关联,但回答其中一个并不自动回答另外两个。
切断叶脉之后,什么真的被保护了
先看操纵实验。Sack 等在八种树木和灌木上做了不同层级的叶脉损伤,其中主脉切割涉及七种植物,水力传导测量覆盖其中六种。切口位于叶柄与叶片连接处以上约 1 厘米;每片处理叶都有同一枝条上大小和受光条件相近的对照叶,对照也接受相应夹板或胶带处理。研究者在伤口愈合后的 2–9 周测量生理表现。1
结果很有层次。在测量水力传导的三种羽状脉植物中,切断主脉使叶片水力传导能力平均下降约 75%,作者报告的标准误为 10%;掌状主脉组则没有显著的总体下降。不过,后者中央区域的气孔导度仍可能下降,不能概括成整片叶毫发无损。切断二级脉、或打孔损伤更细叶脉时,在所测试的损伤程度和主要测量指标上,影响明显较小。1
最容易误读的一点是:羽状主脉不等于整张网络是一棵树,掌状主脉也不等于唯一有环的类型。 两类叶片都可能具有网状细脉。这项比较说明的是替代供水路径所在的层级和位置很重要:几条独立的大通路,与局限在局部的小网孔,对主干损伤的保护能力并不相同。种间差异还同时涉及叶形、结构和亲缘关系,作者也指出需要进一步的系统发育对照。1
另一个更直接的观察来自 Katifori 等:他们损伤柠檬叶主脉后从叶柄引入荧光素,显示染料沿已有脉网绕过伤口,到达切口另一侧;部分二级脉的流向发生反转。这支持现成网络的绕行功能。它与伤后生长新组织、修补导管是不同的过程。2
因此,抗损伤收益有实际依据;但这些实验没有单独证明所有环路都是“为了抗损伤而进化出来的”。细脉密度本身还影响向叶肉输水的距离和面积,抗损伤可能与日常输运收益同时存在;机械支撑和发育限制也不能从这组实验中排除。1
为什么最省的网络常常是一棵树
把网络抽象成节点与导管。每条边的流量 $Q_e$ 由两端压差决定:
$k_e$ 是导度,越大表示同一压差能通过的水越多。每个节点流入、流出及外部用水必须平衡。维持给定源汇流量所需克服的耗散功率为:
这里比较的是在规定流量下需要付出的功率。没有同时假设泵压、输送流量和所有管径都可以任意固定。2 3
成本使问题变得非平凡。沿用经典模型,用
表示固定的建造预算。在等长、圆柱形、Poiseuille 流动的导管中,导度随半径四次方增加,而流体体积随半径平方增加,对应 $\gamma=1/2$ 的体积约束。其他成本定义会给出不同的指数,不能将一个 $\gamma$ 当成所有叶脉或工程管网的实测值。3
在固定负荷、固定候选边和这类 $0<\gamma<1$ 的预算条件下,把资源集中到较粗的通路常常更划算,经典优化结果倾向于树。若把材料分给一条新跨接边,原有供水管就必须变细;跨接带来的改道收益要超过这种代价。脱离预算,单说“多一条路更好”没有完成比较。2 3
负荷会变化时,目标要改成:
注意是先平方再平均。一次流向左、一次流向右的跨接边,平均流量可能为零,却每次都在输运。只画平均流量图,就会把它的作用抹掉。
波动的大小相同,空间关系不同
并非任何时间波动都会改变最优结构。假设所有节点的供需始终保持相同比例,只是整体乘上一个系数 $A(t)$。在线性、准静态、导度不变的模型里,每条边的流量也乘上 $A(t)$,于是任意一个候选网络的平均耗散都变成原来的 $\langle A^2\rangle$ 倍。所有方案同时乘上同一个系数,优劣顺序不变。 这个结论不覆盖弹性储水、惯性、饱和或随时间改变导度的网络。3
更值得比较的是不同地点怎样一起变化。考虑一个水源和两个用水点,三条候选边构成三角形,比较两种等概率出现的需求:
| 情景 | 一半时间的需求 | 另一半时间的需求 | 每个点的均值与方差 |
|---|---|---|---|
| 同步涨落 | $(0,0)$ | $(2,2)$ | 均值 1,方差 1 |
| 轮流用水 | $(2,0)$ | $(0,2)$ | 均值 1,方差 1 |
两种情景的单点统计相同,协方差却分别为 $+1$ 和 $-1$。水源每时刻补足需求,所以同步情景的总供给在 0 和 4 之间切换,轮换情景的总供给恒为 2;我们没有假定总需求的方差也相同。
本篇取 $\gamma=0.9$ 做无量纲示例。这个取值让细跨接相对于 $\gamma=1/2$ 的成本更低,它是明确选择的示意条件,不是对真实叶片材料成本的拟合。 三角形只有三种树形边界,可以逐一解析优化;闭环则用数值搜索寻找候选,并与全部树形结果比较。
| 情景 | 三种树中最小的平均耗散 | 纳入闭环候选后的结果 |
|---|---|---|
| 同步涨落 | 8.64048 | 仍选树,8.64048 |
| 轮流用水 | 8.64048 | 找到闭环,8.35197 |
轮换情景的闭环候选比每一种树都省,较最佳树降低约 3.34% 的平均耗散。找到这样一个可行闭环,就足以说明这张候选图中的最佳方案不会是树;并不需要把某一次数值搜索包装成一般网络的全局最优证明。本篇计算
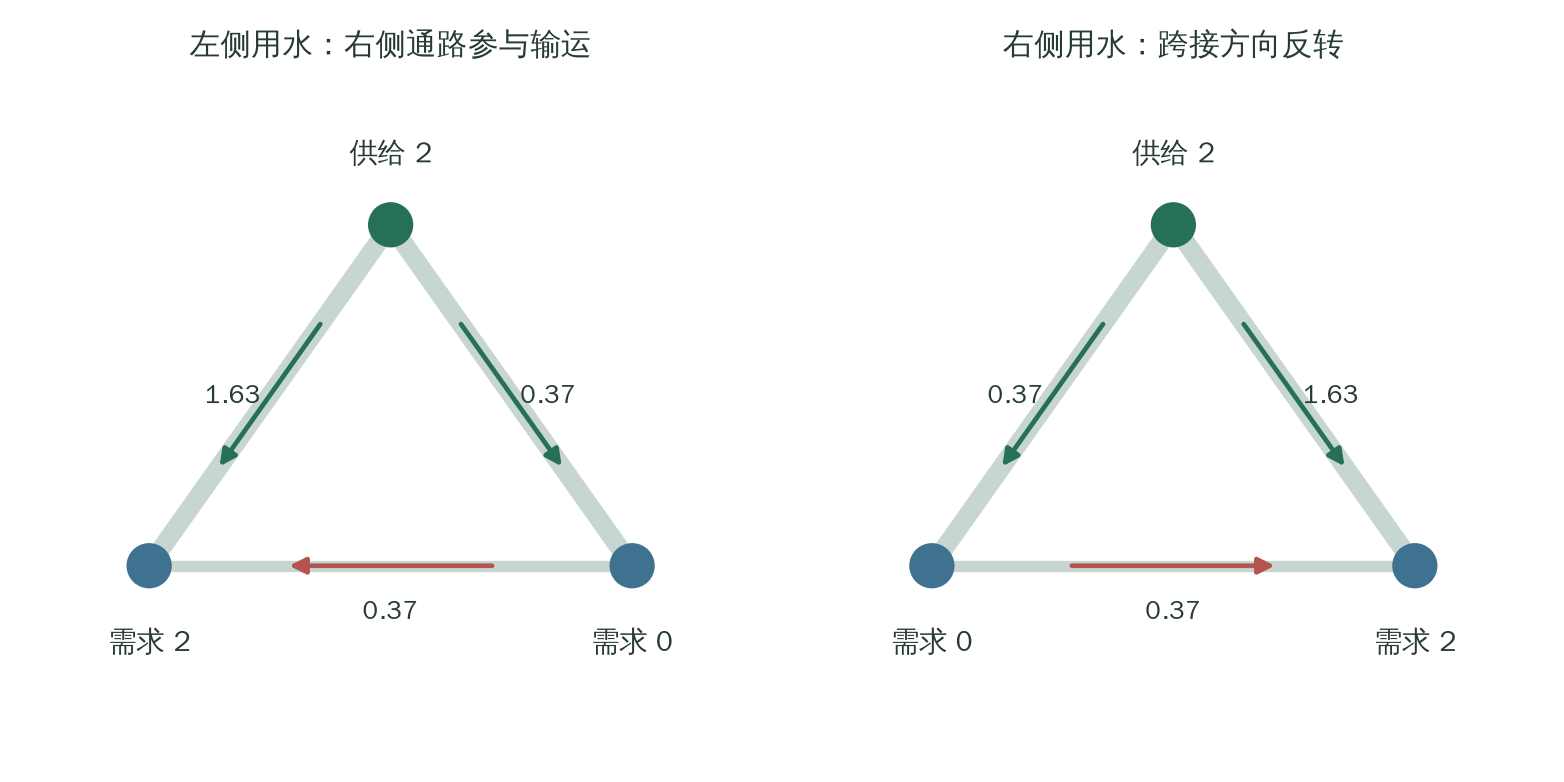
这条跨接把原本闲着的一侧供水能力调给正在用水的一侧。它在两个情景中反向工作,因此平均流量为零,而均方根流量约为 0.37。是否值得保留它,取决于这些改道能省下多少耗散,以及为此需要削减其他管道多少预算。
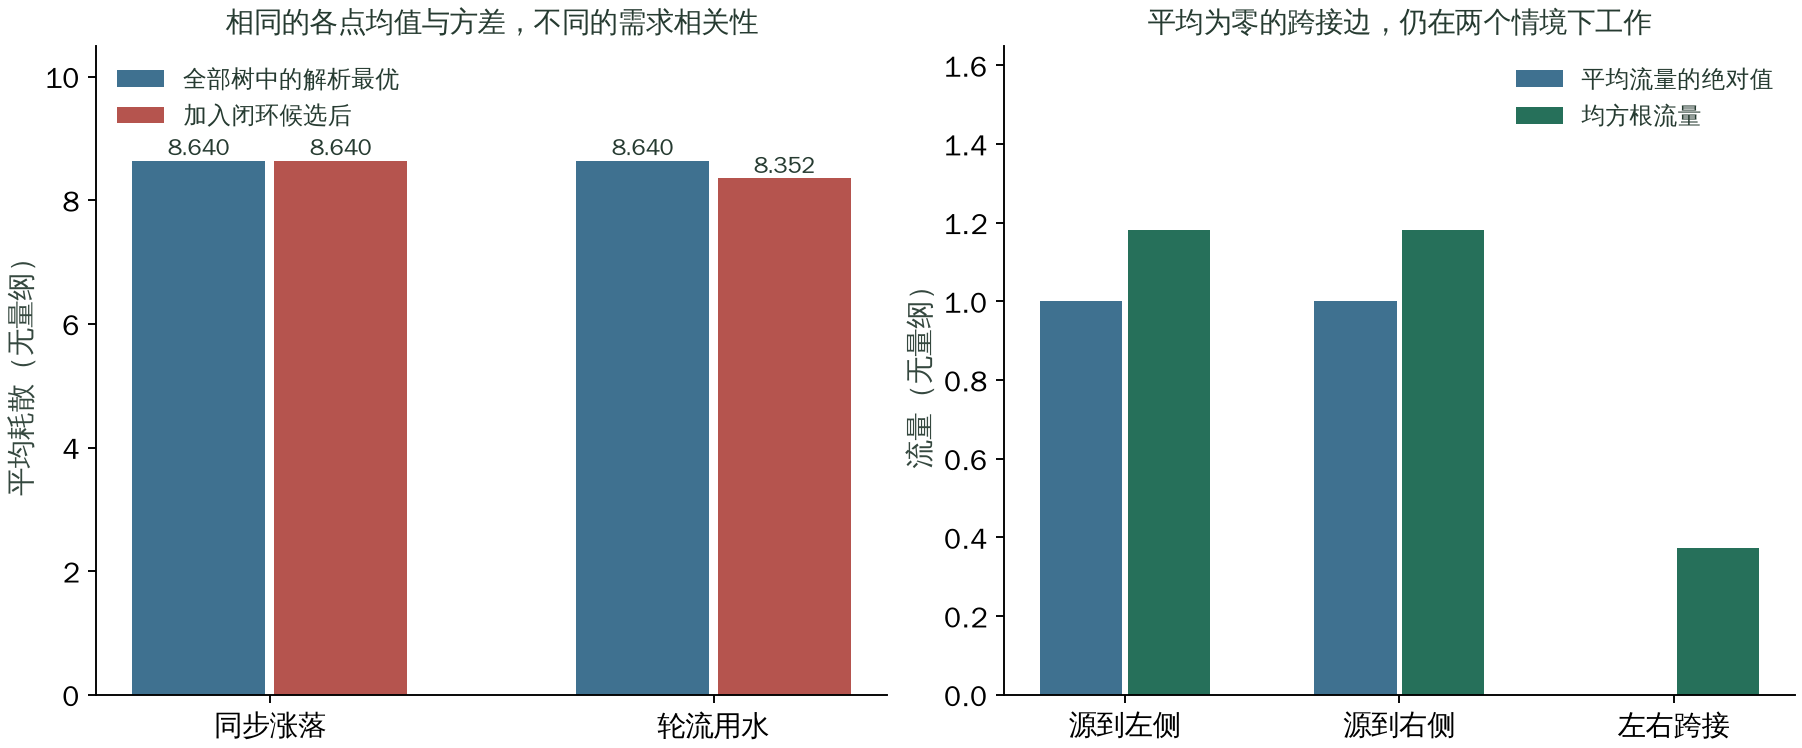
这个例子也有明确边界:将成本指数改为 $\gamma=1/2$ 后,在同一三角形与同一需求设置的搜索中,没有找到优于解析树边界的闭环;左右对称设计族也不出现有利的闭环分支。这不是对复杂叶脉的否定,而是说明“有波动”本身不足以保证“环路划算”。成本关系、几何候选边和空间负荷分布都参与决定答案。本篇计算
有路可绕,不等于绕得起
损伤问题要另算。Katifori 等的断边模型逐条切断连接,并计算仍要满足所有源汇时的耗散。如果某次切割使一个有净需求的区域与水源断连,该流量任务就没有可行的稳态解,模型将其耗散记为无穷大。于是,要让这个目标有限,网络首先就必须容忍单边断裂。在这种目标定义下,树会被排除;环路的出现部分来自任务本身的要求。2
真实叶片不会因此产生无限大的压力,它可能关闭气孔、减少供水、使局部组织失水,或在更长时间内修复。把断供当作不可接受、允许损失一部分需求、或只考虑部分导度下降,是不同的模型。Kaiser 等明确区分了完全断边与部分降容,不能将它们混成同一种损伤风险。4
即使网络没有断连,旁路也可能太细。本篇固定两端需求均为 1,在同一预算下比较树,以及跨接分别占预算 1% 和 20% 的两个环路。完整时,较粗跨接占用了本可留给两根供水管的材料;切断水源到左侧的导管后,它却显著降低了维持供水的代价。
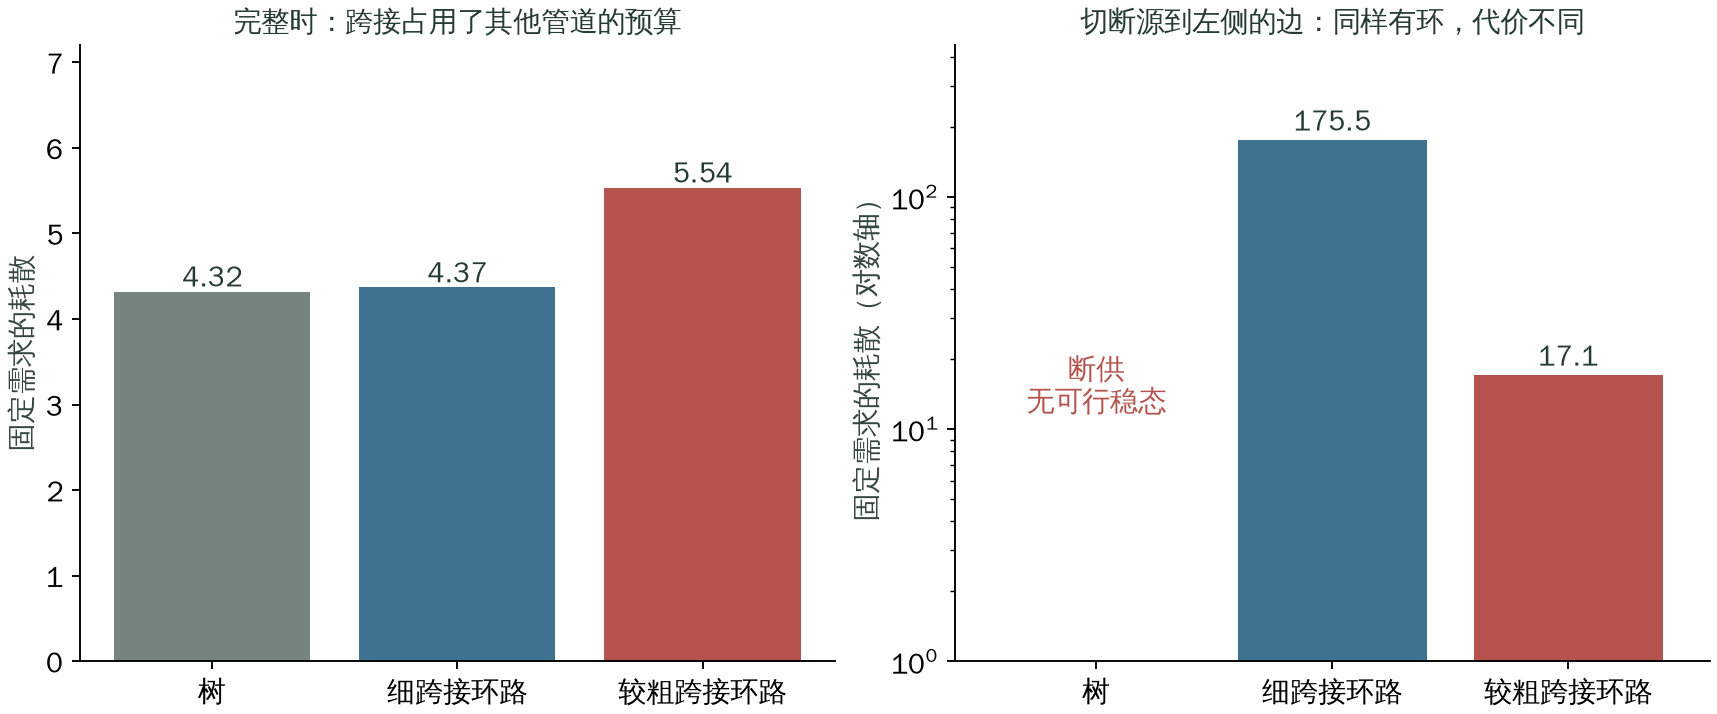
所以,判断冗余不能只数有几个圈。还要问替代路线的导度、长度、所在层级,以及堵塞后允许多大压差、能保住多少需求。这也解释了为何“细脉有网孔”不保证能替代被切断的高容量主脉。上面的两个闭环仅为等预算对照,并未声称它们是损伤目标的最优方案。
为什么环路可能要跨过一个门槛
即使某个闭环方案优于树,它也未必能通过“一根极细导管慢慢长粗”这条路径出现。在 $0<\gamma<1$ 的预算中,新添极小导度 $\kappa$ 的成本按 $\kappa^\gamma$ 增长。靠近零时,这一代价可能先压过改道带来的收益:微小起步不划算,但投入到一定容量后,闭环可能形成另一个更低的耗散点。4 5
为把这个过程算清,本篇进一步限定左右供水管导度相等,用 $r=k_{12}/k_{01}$ 表示跨接强度,让两端需求在 $(1+a,1-a)$ 与 $(1-a,1+a)$ 之间切换。该设计族的耗散可以直接写成:
在 $\gamma=0.9$ 下,一个非零跨接的局部极小值约在 $a=0.784$ 出现,但此时它仍比树贵;直到约 $a=0.805$,它才与树等价并随后成为该对称设计族中的优选方案。切换时跨接已经占总预算约 5.35%,并不是从零连续加一点点。本篇计算
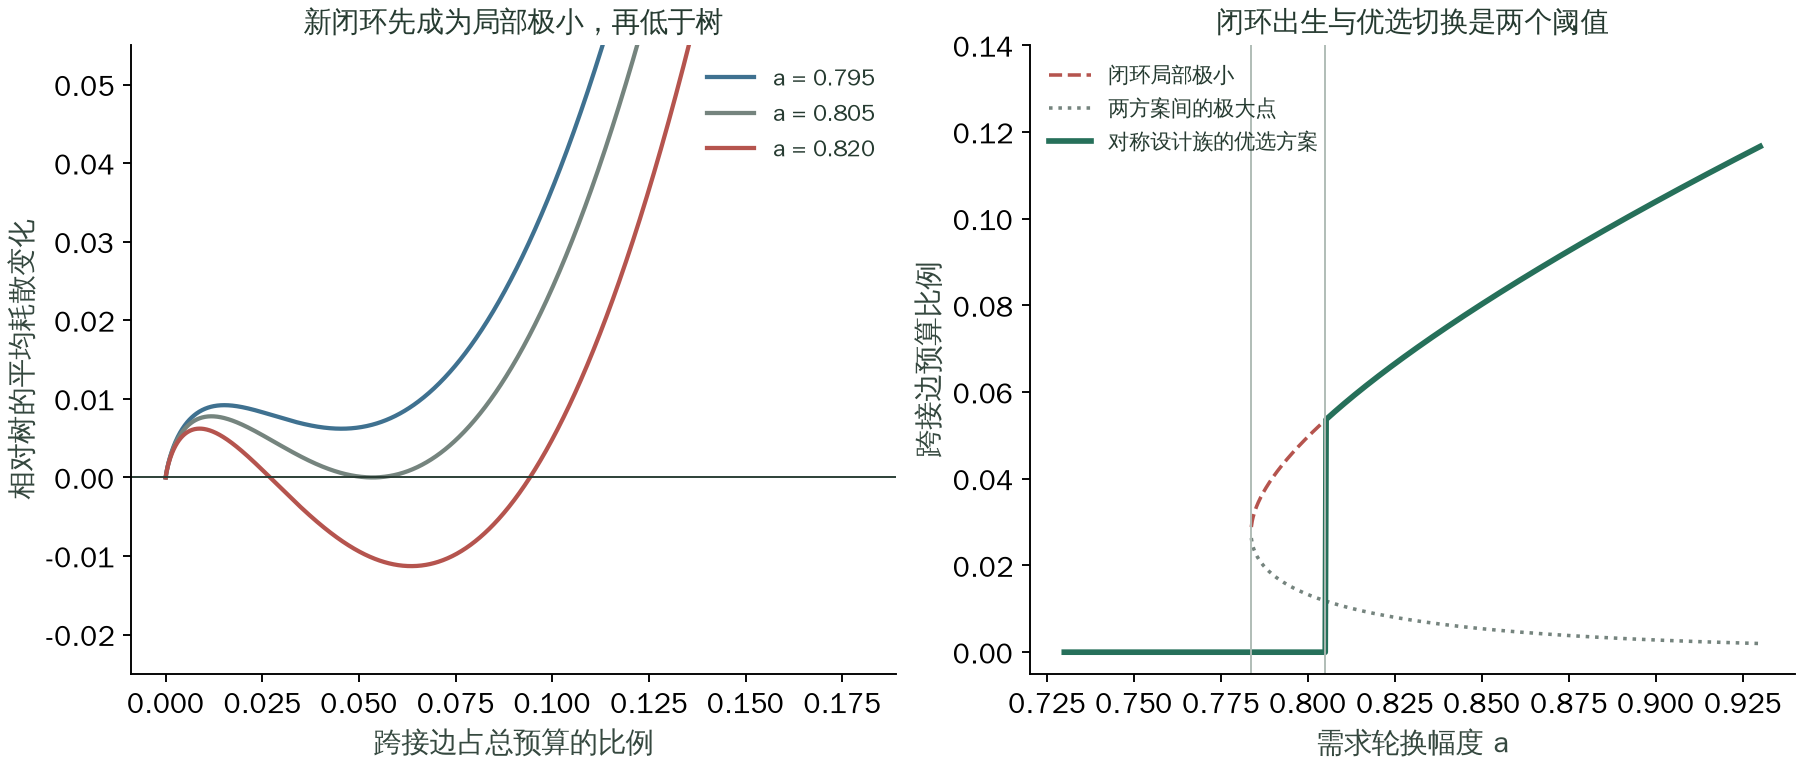
Kaiser 等对其供给网络模型研究了同类不连续变化:新的闭环极值可以在非零容量处出现,而原先的树仍保留为一个局部候选。局部优化方法因此可能停在树上,也可能停在一个尚不如树的闭环上。正文中“大网络的最优设计”与现实发育中“从现有结构走到哪一步”,不能仅凭这个能量景观画等号。4 5
环路怎样形成:功能解释之外的证据
镜面草提供了可以检验的几何关系
2026 年,Zheng 等分析了六株镜面草的 34 片叶。部分主要叶脉形成的多边形围绕排水孔分布:约 73% 的最小多边形含一个排水孔,其余含零个或多个。因此,研究讨论的是近似关系,而非每个网孔都严格服从某个理想几何图形。6
以排水孔为中心构造 Voronoi 分区,会把一片区域分给离它最近的中心,区域之间的边界位于相邻中心之间。作者用实际排水孔位置预测主要叶脉位置,并与其他中心选择和分区方法比较;结果支持围绕排水孔的次级脉具有近 Voronoi 结构。这里的重点不是“圈很好看”,而是有一组独立可测的中心位置,可以用来检验边界应该出现在哪里。6 7
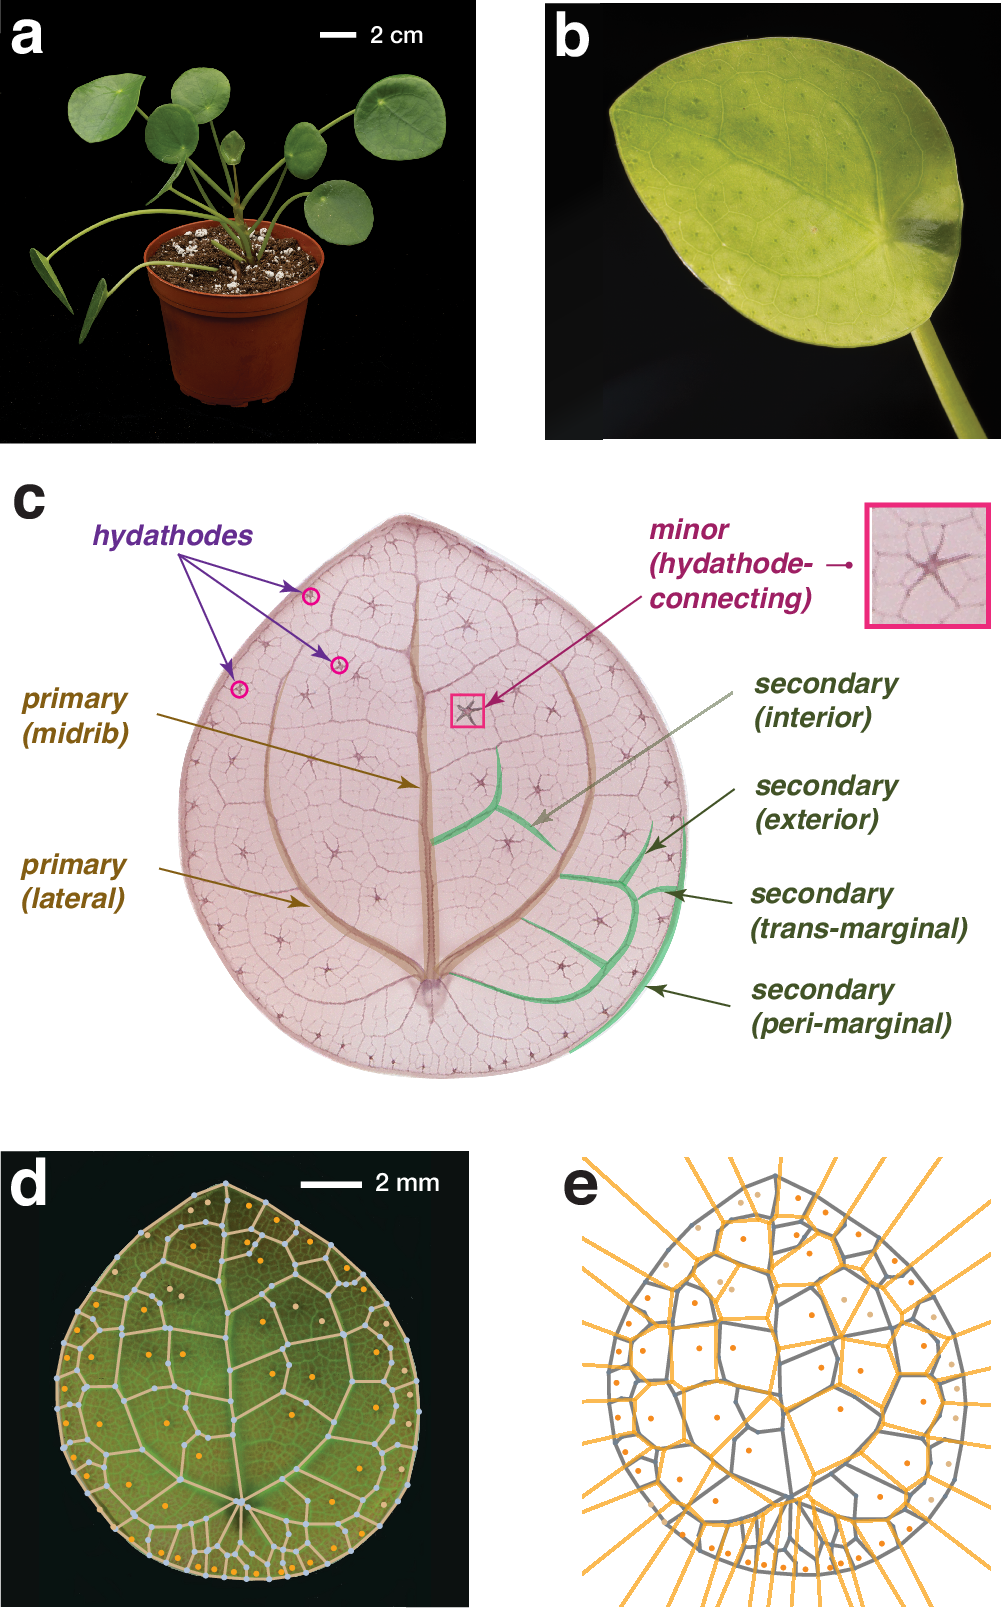
图像来源:原文图1;许可:CC BY-NC-ND 4.0。
形成模型提出:排水孔附近的生长素源,与极性运输蛋白 PIN 的分配反馈,可以产生向外推进的高浓度波;来自不同源的波相遇后,浓度脊出现在源之间,进而与次级脉的位置对应。模型包含浓度上限等调节,并在与成像比较后补入分化后的 PIN 去除和生长素对 PIN 表达的影响。6 7
这项工作有支持,也有尚未跨过的证据台阶。发育阶段成像与 PIN 定位限制了模型可以怎样解释形态,但它们不是实时观察到生长素波相撞;所用抗体可能识别多个 PIN 蛋白,极性解释也有局限。主脉早于多数排水孔与次级脉形成,作者认为它可能由另一过程塑造。因此,现有结果不能被升格为“所有叶脉环路都已由一种机制解释”。6 7
其他材料中,重连可以由边界条件推动
2024 年的指进研究提供了另一个形成思路:在溶蚀和两流体实验中,较长分支接近或贯通出口后,短分支可以恢复生长并与它重连。作者用保留分支内部场降的简化模型解释这一过程,而不是先指定一个有环网络再优化其耗散。这里主要借用其重连观察与形成模型;它的界面、迁移率和生长假设并非叶片发育的直接证据。8
两种形成研究共同提醒我们:功能上有益的结构,还需要局部规则和发育路径才能出现。环路可能同时有输运与抗损伤收益,但不能仅凭这些收益反推它是由哪一种过程长出来的。
怎样区分几种解释
| 要解释的现象 | 更有区分力的证据 | 单凭什么还不够 |
|---|---|---|
| 环路缓冲需求变化 | 控制各点均值与方差,改变空间相关性,测量跨接流向、压差及耗散 | 只有一张有环的形态图,或只有总体需求随时间变化 |
| 环路提供损伤绕行 | 在明确位置与层级施加损伤,对比保留流量、所需压差和生理功能 | 网络在图论上仍连通,或只统计环数 |
| 网络沿局部发育规则形成 | 追踪信号源、运输蛋白、组织分化与连接出现的先后,并施加能区分模型的干预 | 某个优化算法生成了相似形状 |
| 某个环路特征因功能收益被选择 | 在成本、形态和亲缘等因素受控的比较中连接结构、功能与适合度 | 一项现存功能优势,或同一种形状出现在不同系统 |
前两行主要回答功能与任务条件,第三行回答形成过程,最后一行才进一步涉及演化解释。它们可以共同成立,不需要强行选出一个适用于所有网络的唯一原因。
边界与收口
本篇计算假定管道是线性的,每个负荷情景足够慢,可以先达到稳态;没有弹性储水、气栓传播、主动阀门、导管重建或生长中的几何变化。它用来区分成本、需求相关性与拓扑冗余,不直接预测某片叶应该有多少条脉。
在这一范围内,答案可以说得清楚:环路保留了根据情境改道的能力。 需求在空间上轮换,或损伤改变可用路线时,这种能力可能抵偿其建造代价;固定负荷与不同成本关系下,树又可能更划算。真实叶脉已有损伤实验支持冗余的功能,但将功能收益连接到环路的具体形成和演化,仍需要发育与比较证据。判断一个圈是否“多余”,最终要同时说明它服务什么任务、花掉什么资源、在什么条件下才发挥作用。