钟走得准,不等于内部的一切都没变
把三种纯化蛋白 KaiA、KaiB、KaiC 放进含ATP、镁离子和合适缓冲液的试管,即使没有完整细胞,没有交替开关的灯,也能看到 KaiC 的磷酸化比例按接近一天的周期起伏。改变恒定培养温度,这个周期在一定范围内仍然变化不大。1 4
这件事难解释的地方在于:升温通常会加快很多生化反应。假如整套钟里的每一步都快一倍,同一条循环路径不变,绕完一圈就只需要原来一半的时间。为什么试管中的钟没有照这个直觉大幅变快?
先说清楚“稳定”的究竟是什么。设周期为 $P$,频率为 $f=1/P$,本文使用频率的温度系数:
$Q_{10}^{f}$ 接近1,表示升温10°C后频率变化较小;等于2,表示频率加倍、周期减半。若有人用周期的高温值除以低温值,得到的数与这里互为倒数,不能直接比较。2
温度补偿也不等于严格24小时,不等于任何温度都有效,更不等于振幅不变。一个在某温区始终以20小时为周期的钟,也可以具有良好的温度补偿。一个振幅逐渐衰减到零的体系则不能继续赋予稳定振荡频率。我们需要把周期、振幅、相位和停振分开:恒温下周期变化小,与突然变温后出现相位调整可以同时成立;后者不是本文模型已经检验过的功能。
KaiABC怎样绕完一圈
KaiC通常组装成六聚体,每个亚基含两个相连的结构域。CII一侧有两个主要磷酸化位点,Ser431和Thr432;CI一侧的ATP水解与构象状态参与控制KaiB的结合。常见的占优顺序可以简写为:
$U$ 表示两个位点都未磷酸化;$T$ 表示只有Thr432带磷酸;$D$ 是两个位点都有;$S$ 是只有Ser431带磷酸。这是对群体中主要循环顺序的概括,不是每个分子只允许单向走四步。2 4
KaiA活跃时促进KaiC磷酸化。随着Ser431磷酸化增加,KaiC更容易进入能够结合KaiB的状态;这个结合还需要CI端的ATP水解及相应构象变化。结合后的KaiB-KaiC复合物能够抓住并抑制KaiA,使系统转向去磷酸化。随着复合物解离,KaiA重新可用,下一轮开始。许多KaiC分子共享有限的KaiA,因此这些结合事件还会改变其他分子能得到的调节资源。3 4
这里至少有三种可能的计时环节:KaiC自身反应与构象循环的速度;KaiB变成可结合状态和装配复合物的等待;反馈何时足够强、能够把KaiA从活跃状态切换到受抑状态。寻找温度补偿,不能把这三种量都压成一个“反应速率”。
KaiC的慢ATPase:强线索,但不是完整答案
2007年的原始实验发现,KaiC单独存在时,ATP水解非常慢:在30°C标准条件下,平均每天每个KaiC亚基产生约14.5个ADP,报告标准差为2.0,测量次数为9。加入KaiA和KaiB后,ATPase活性本身也随周期起伏。这里是每个亚基,不是每个六聚体,也不是每次水解就代表钟完成一次循环。1
更关键的是温度依赖。25至35°C间,单独KaiC的ATPase活性温度系数约为1.0;加入KaiA、KaiB后的平均活性约为1.2。野生型和几种长、短周期突变体中,较高ATPase活性与较高振荡频率相关。这支持KaiC的内部反应参与设定时间尺度,而不是一个外部控制器不停校准它。1
但相关关系仍留下两个问题:突变是否只改变了ATPase;一个温度不敏感的反应,是否足以让全网形成温度不敏感的振荡?2022年的突变研究把这个问题拆得更细。2
作者同时测KaiC单独的ATPase和加入KaiA、KaiB后的磷酸化振荡。S258A、F247A等突变让两者都随温度加快,N390A则让两者都随温度减慢,显示了方向性的联系。可是两种温度系数并不逐一相等。例如Q361E的ATPase温度系数约1.70,振荡频率约1.23。更直接的边界是磷酸化模拟突变体KaiC-DE:其ATPase温度系数约0.98,但它不形成磷酸化振荡。一个“温度不敏感的发动环节”不能独自提供整套反馈循环。2
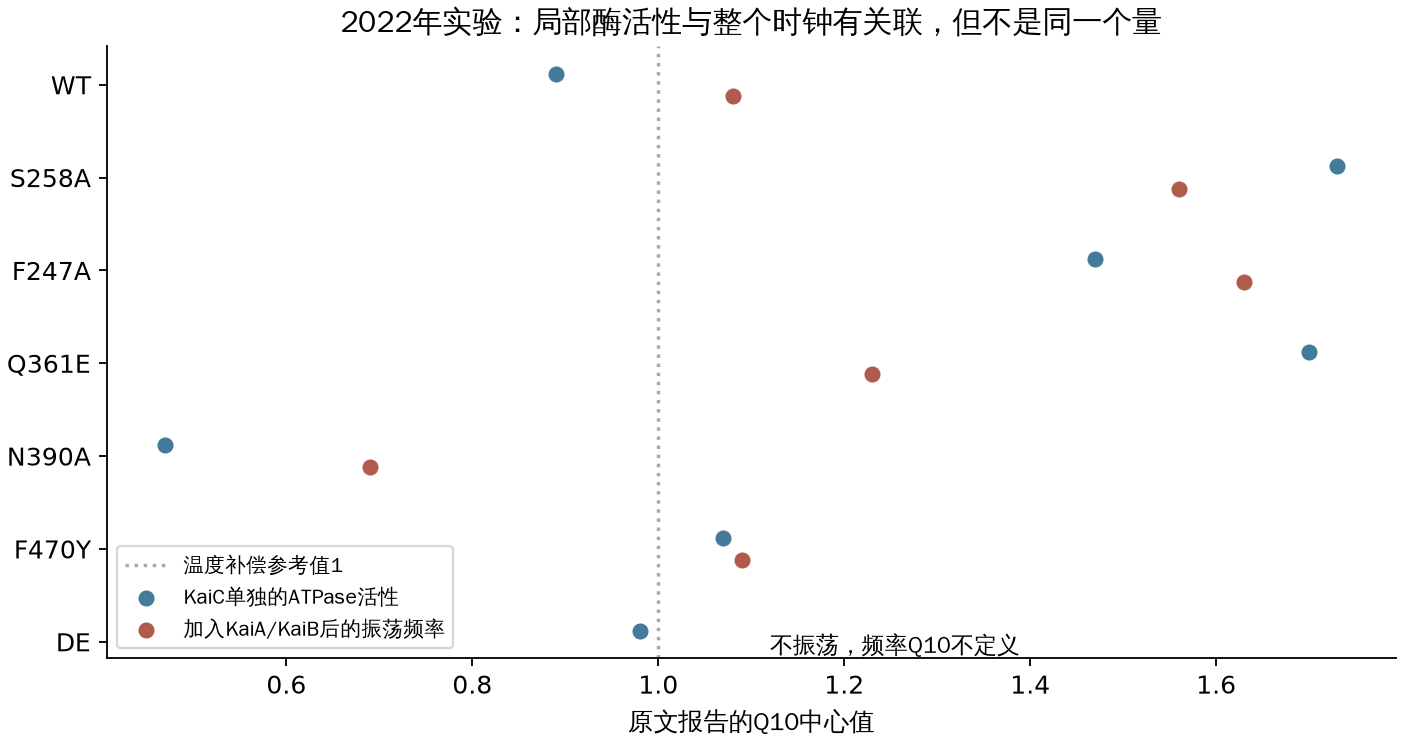
这项研究还用准弹性中子散射观察蛋白运动。它没有发现一个简单的“蛋白所有局部运动都不随温度变”的答案:所测快速局部运动的温度依赖,不能很好地区分哪些突变破坏了时钟补偿。较整体的运动和结构域接触更值得追踪,但具体因果桥梁仍需其他时空尺度的测量。不能把一种局部酶活性的稳健,解释成整颗蛋白完全不受温度影响。2
KaiB变形时,两条相反反应并不同步加速
KaiB可以在两种折叠之间转换。通常的基态形式记为gs,能参与KaiC结合的转换形式记为fs。要理解它怎样影响计时,至少要同时看从gs到fs有多快、从fs退回gs有多快、fs能否及时结合KaiC。3
2024年的NMR研究观察到,升温使gs相对fs更稳定。在其主要改造构建体KaiB-D91R中,25至35°C间,gs→fs的速率温度系数为 $2.1\pm0.3$,逆过程为 $5.7\pm0.8$。两边都加快,但退回基态的一边加快更多,因此fs的平衡占比反而下降。这个例子说明:某一步变快,不保证它的产物在稳态下变多。3
这仍不能直接推出“所以整个时钟就不变快”。fs一旦与KaiC结合,就进入了另一个反应过程,实际复合物生成还取决于结合与解离速率、游离浓度和构象转换的竞争。作者建立的折叠加结合模型中,纳入实测温度依赖后,不同温度的复合物生成曲线更接近,属于部分补偿;高温下结合依然更快。论文将其表述为可能贡献,未在这里单独证明野生型整套时钟的周期完全由该机制决定。3
实验对象也很重要:研究主要使用嗜热蓝细菌来源、截短并带多处替换的单体KaiB,以便两种折叠都能被NMR观察。对这个构建体,加入脯氨酰异构酶会加快转换,抑制该酶后效应消失,支持脯氨酸异构化参与慢步骤。但野生型KaiB还涉及寡聚体解离,限速环节可能不同。把“改造蛋白的结构机制”直接写成“天然时钟的唯一限速步骤”,会跨过尚未验证的一层。3
新的关键:KaiA也会反过来阻止自己被关掉
2026年5月,Liu、Pattanayak及合作者发布了一篇预印本,提出并实验检验一条值得注意的反馈:KaiB-KaiC抓住KaiA,使它失活;而游离KaiA又能通过KaiC,抑制KaiB-KaiC装配,并促进已有复合物拆开。4
这是两次抑制形成的正反馈。KaiA多一些,复合物更难形成,留下更多游离KaiA;复合物多一些,就能压住更多KaiA,使复合物更容易保持。这样的相互压制可能产生两个可保持的状态,而不只是一个随浓度平滑变化的结合比例。
他们先把会随时间变动的磷酸化步骤冻结:使用两个位点都替换为磷酸化模拟残基的KaiC-EE。先加入KaiA或先加入KaiB,预孵育6小时,再补上另一种蛋白,使最终组成相同。中间一段KaiA浓度内,两种添加顺序在后续约25小时观察中保留不同的复合物水平。另一个探针实验在24小时结合后加入未磷酸化KaiC,测它是否还能得到游离KaiA的促进,也支持两种不同的活性状态。4 5
这套设计有区分力:KaiC-EE不能继续走正常磷酸化循环,因此观察到的历史依赖不能直接归因于两组样本还处在正常时钟的不同相位。模型也确实出现两个稳定定态。不过,实验时间窗有限,磷酸化模拟突变也不等于每个状态下的天然蛋白;它支持结合子网络中的双稳态解释,不是对所有条件下无限期记忆的证明。
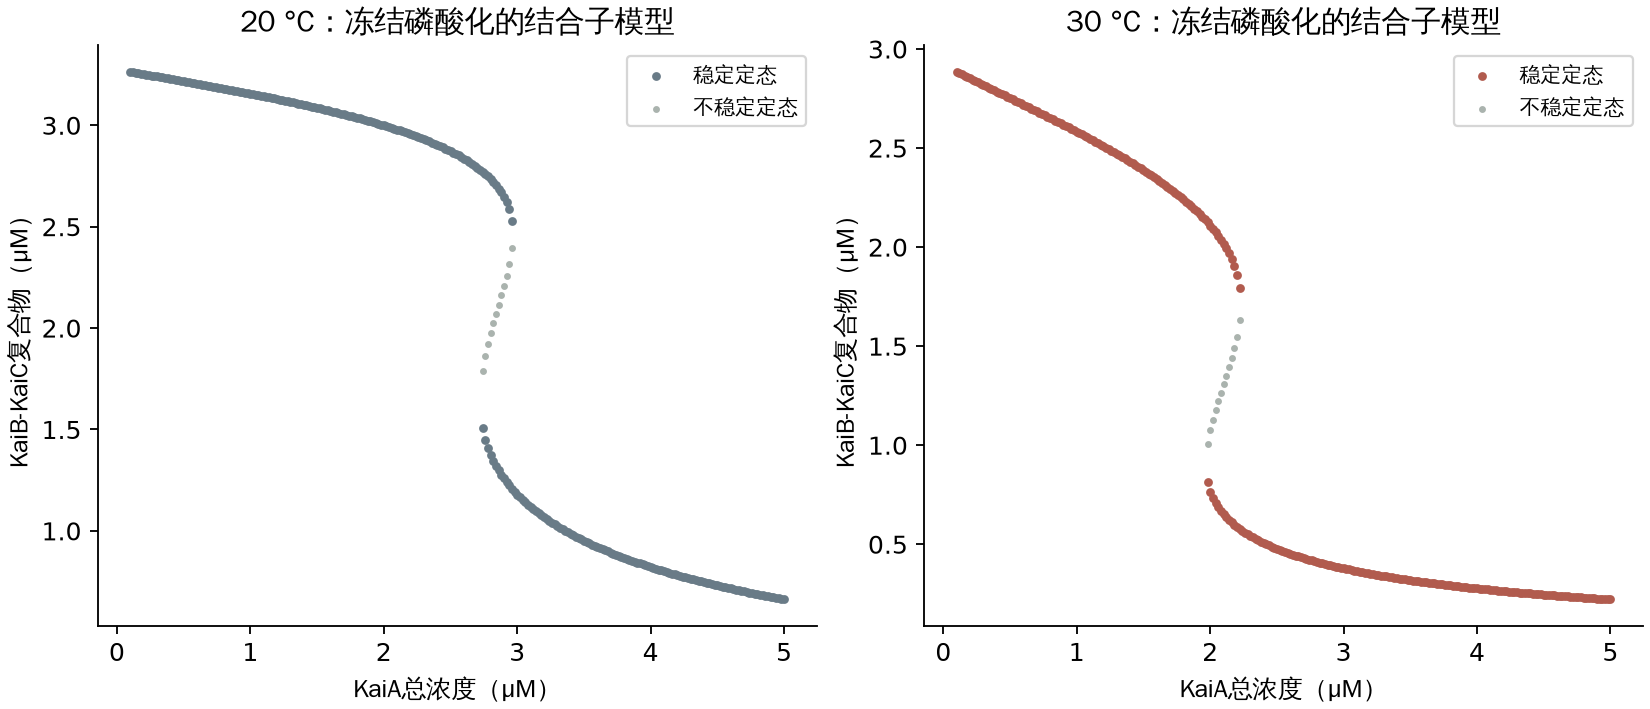
温度改变了这个开关。没有KaiA时,KaiB与KaiC-EE的装配速率在20与30°C下相近,约为0.10与0.12 µM⁻¹h⁻¹;加入KaiA后,升温明显增强了它对复合物的反向调节。另一方面,分别解析两个磷酸化位点后,Ser431的去磷酸化被发现具有较强温度依赖,在该研究中20至30°C约加快6倍。4 5
因此,一个具体的补偿路线出现了:升温让化学循环走得更快,同时也加强KaiA对关闭自身的抵抗,使系统需要积累更多抑制性的磷酸化状态才能切换。跑得更快,但要走过的状态范围也变大。 这句话需要下面的模型和反事实对照支持,不能只凭“平均速度=路程/时间”这个恒等式就宣布机制成立。
按作者模型重算:拆开两组温度效应
本篇取得了作者公开的Julia方程、参数表和示例笔记本,将同一反应网络转写为SciPy积分。没有重新拟合,也没有人为调节周期到24小时。模型跟踪六类KaiC状态:$U,T,D,S$以及结合了KaiB的$DB,SB$;总KaiC守恒,游离KaiA由快速结合平衡计算。6
作者的结合反馈项可写成:
$A_f$ 是游离KaiA。它越多,KaiB结合越受抑制,已有复合物解离越快;而$DB,SB$增加又会降低$A_f$,形成正反馈。随后,磷酸化和去磷酸化不断改变能参与复合物形成的状态,使这个本可停在某一分支的子系统反复切换。5 6
按照公开示例,KaiA总量设为1 µM,KaiB与KaiC各3.5 µM,ATP比例固定为1。20与30°C使用作者参数,23与27°C按作者方法线性插值,连对数解离参数也按其定义插值。这个1 µM的KaiA设置与完整时钟实验的1.5 µM不同;作者还用一个亲和力修正量衔接结合子模型与完整模型。本篇保留这些公开设定,不把模型数值称为原实验的逐点重现。5 6
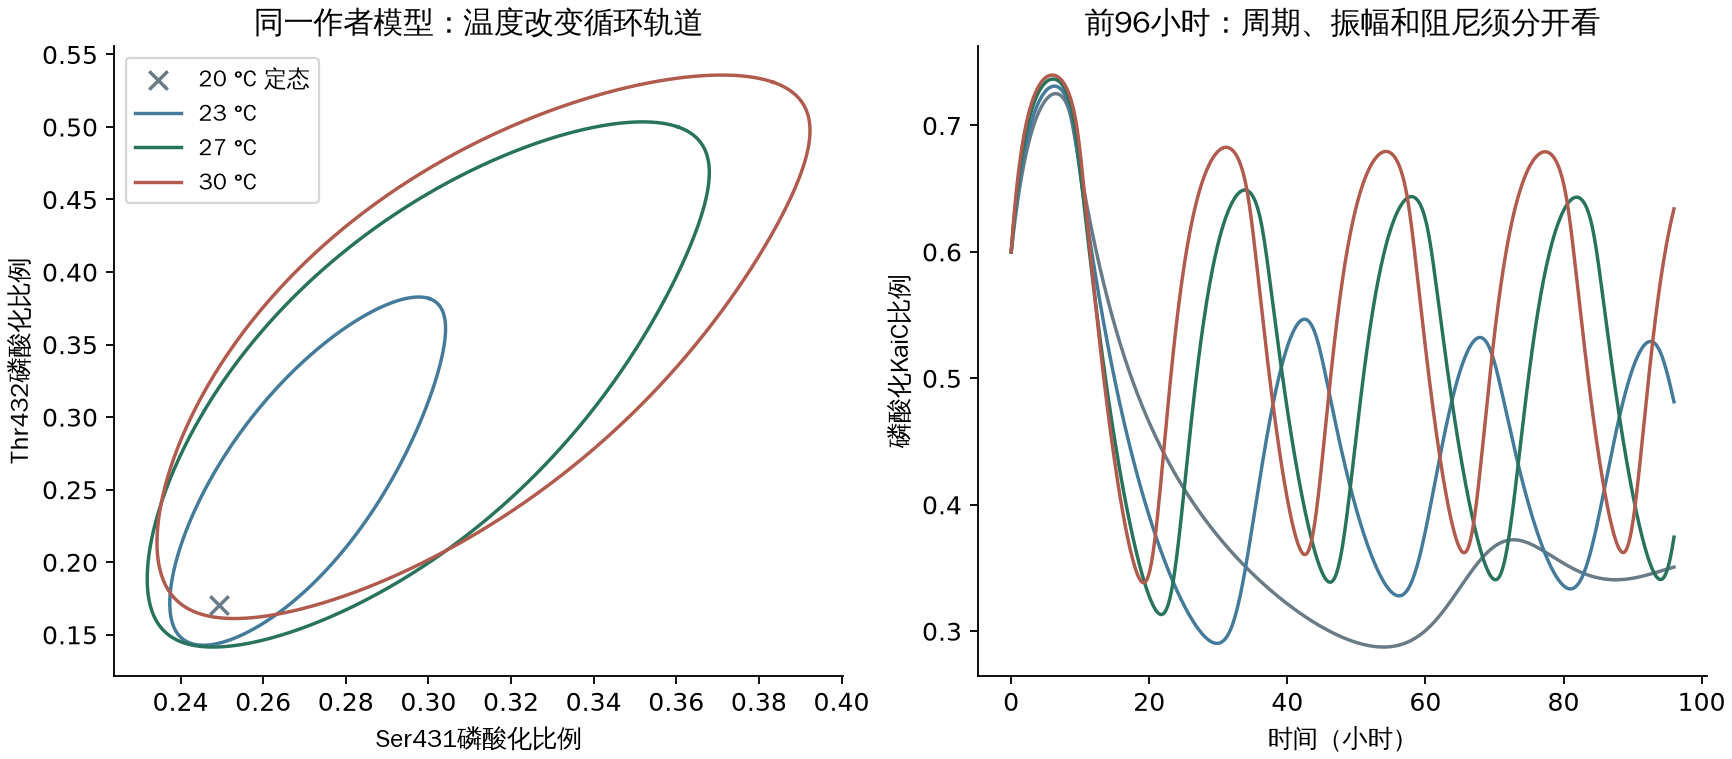
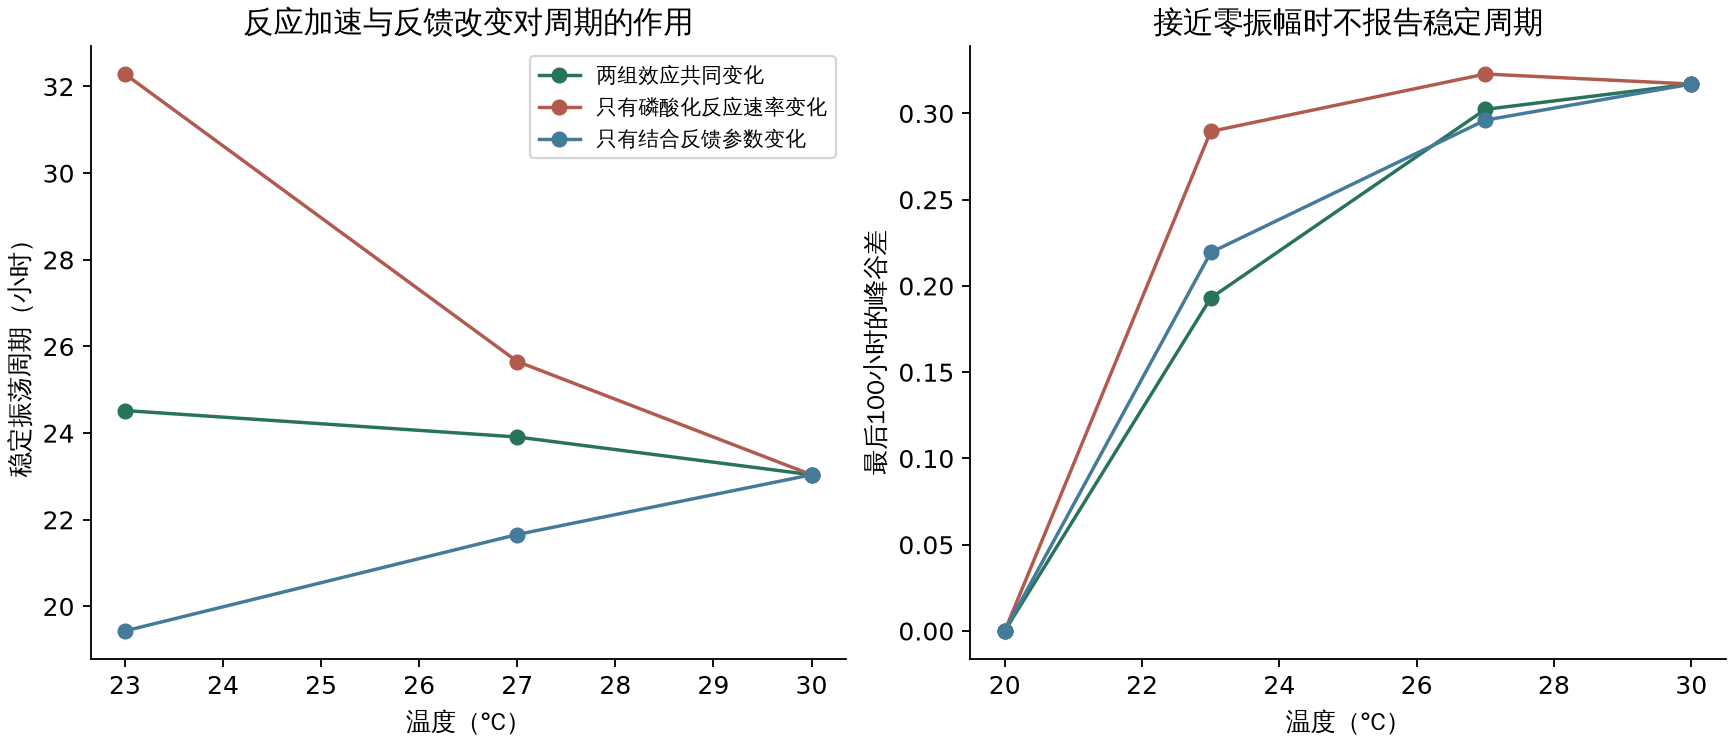
我们把温度效应拆成三组。保留一组温度变化时,另一组参数固定在30°C值,而不是删去整个反应或重新调参。运行1200小时,舍去前半段,检查后续峰间距与振幅是否稳定。本篇复算
| 温度变化施加在哪里 | 23°C周期 | 30°C周期 | 23→30°C折算的频率 $Q_{10}$ |
|---|---|---|---|
| 只改变磷酸化、去磷酸化速率 | 32.29 h | 23.04 h | 1.62 |
| 只改变结合反馈参数 | 19.43 h | 23.04 h | 0.78 |
| 两组共同改变 | 24.52 h | 23.04 h | 1.09 |
前两组作用方向相反。反应加速缩短周期;结合反馈随温度增强,却让时钟要经过更大的状态变化才切换,从而延长周期。共同变化时,两种作用部分抵消,周期维持在接近一天的范围。补偿不是精确抵消为零:完整模型的周期仍有约6%的改变,不能写成完全温度无关。
同时,完整模型的磷酸化比例峰谷差从约0.193增到0.317。我们在固定的两个磷酸化比例坐标中算出的循环弧长从约0.511增到0.854;这只是该坐标投影中的路径长度,不是蛋白真实运动的空间距离。弧长除以周期得到平均遍历速度,是描述性量;有机制含义的证据是温度效应拆分后,周期和振幅按不同方式改变。
还有一个基础对照:保持浓度和结合平衡参数不变,把所有动力学速率统一乘2,周期确实变成原来的一半。原因是此时方程整体变为 $\dot x=2F(x)$,原有轨迹只被更快地走过。复杂网络本身不会自动获得温度补偿;必须存在不同步骤、不同状态范围或不同可用组分对温度作出的差异化响应。
计算检查包括总KaiC守恒、浓度非负、通量形式与原始矩阵形式的一致性,以及两种积分器对周期的比较;两种积分器在30°C的周期差小于 $10^{-8}$ 小时。它们说明转写和求解在本例中可靠,不证明这套分子模型唯一正确。
尤其要注意:论文完整模型的参数同时拟合了结合实验和振荡数据,部分温度系数从其他反应拟合后再引入,另一些步骤被简化为温度不变。因此,“模型能重现补偿”具有机制相容性与充分性示例的意义,不是独立于拟合数据的盲预测,也不说明KaiC ATPase或KaiB构象机制已被排除。4 5
加盐后的变化,说明了什么
2026年另一项已发表的实验改变NaCl浓度,同时测25与35°C的KaiABC振荡。在100至250 mM范围内,增加盐浓度总体缩短周期;升温的影响随盐浓度改变,图中频率$Q_{10}$约从0.95上升到1.06,幅度不算大。改变KaiB浓度也能改变周期,但没有出现同样清楚的温度系数趋势。这说明“把钟整体调快一点”和“改变钟对温度的敏感程度”是可以分开的。7
它尚未把盐效应唯一定位到KaiB折叠。论文的化学交联实验支持KaiB寡聚状态受盐影响,但没有直接测到同一条件下gs与fs的平衡比例;独立磷酸化、去磷酸化实验未检出显著的盐浓度趋势,也不能据此证明KaiA和KaiC完全不参与效应。因此,将盐通过KaiB构象或装配影响计时,现阶段仍是需要进一步检验的机制解释。7 8
这篇的部分图注回归系数与图面趋势不一致,例如图3d公式的斜率符号与绘出的$Q_{10}$趋势相反。本篇核对图面、周期方向与频率定义后,只引用上述有边界的趋势和约数,不用冲突公式生成精确数据。这不抹去实验的价值,但限制了它适合承担的定量判断。
现在能把答案说到哪一步
比较现有证据,不能把答案压成“有一个反应不怕热,所以全钟不怕热”。KaiC的慢ATPase及其温度依赖已有直接实验,且与周期突变联系紧密;KaiB的折叠与装配提供等待和反馈调节,但部分关键测量来自改造构建体;KaiA反向调节KaiB-KaiC复合物的新实验,则提供了一条让切换阈值随温度变化的具体路线。1 2 3 4
本文的整合判断是:局部反应的低温度敏感性,与反馈改变“要走多远、等多久”这两类机制可以共同工作。 2026年的双稳态模型让后者变得可测、可算,但它仍是预印本中的机制方案,尚不能算完成了所有分子层次的解释。
最有区分力的后续证据,是在未用于拟合的温度、KaiA比例或结构域接触突变条件下,同时预测并测出周期、振幅和结合开关的变化;或者在保留ATPase温度依赖的同时,专门改变KaiA对复合物的反向调节,查看补偿是否按预期改变。只再得到一条“周期差不多”的曲线,不能区分这些环节。
温度补偿最终是一种有条件的整体性质:组成部分可以明显改变,整体一圈的时间却变化较小;温度再低、蛋白比例或溶液环境再变,这种平衡可能失效,甚至不再振荡。理解时钟,需要追踪整个循环如何经过不同状态,而不只是寻找一个表面上恒速的分子。