刺激已经洗掉,表达为什么还没回去
2000 年,Gardner、Cantor 和 Collins 把两套相互抑制的基因元件放进大肠杆菌,构造了一个可以来回切换的表达开关。这里的“开”和“关”是两组蛋白的表达状态,不是把 DNA 序列反复改写。1
在其中一个实验里,他们把同一培养物分成两组:一组接受诱导,另一组不接受。6 小时后洗涤并转入无诱导剂的新鲜培养基,再观察 22 小时,期间继续取样和稀释。两组仍分别保持高、低荧光表达状态。1
这比“刺激后亮了一阵子”多了一层含义:外部条件已经重新相同,过去的处理仍影响现在的表达。可是,这仍是群体取样下的有限时长观察,不能直接推出每个细胞从不切换,更不能把 22 小时写成永久。
原研究还比较了只有诱导表达的对照和一个未显示双稳态的回路。撤去诱导后,它们会回落;具有记忆的构造则保持新状态。要解释的不只是分子残留多久,而是撤除刺激后,为什么新的分子还在接续旧的表达关系。1 2
互相压制,怎样构成自我维持
把两种抑制蛋白叫作 U 和 V。U 多时,V 的合成被压低;V 少了,对 U 的抑制就弱,U 得以继续合成。这是一条由两次抑制组成的正反馈。反过来,V 高、U 低也可能形成另一种自洽关系。1 7
例如系统原本处在 U 高态。一次刺激暂时让 U 失去部分抑制能力,V 就开始积累。若 V 累积得足够多,它会压低 U 的新合成;旧 U 又在降解和生长稀释中减少。等外部刺激撤去,V 已经能把 U 压在低位,于是高低关系继续保持。
保存的因而是持续更新的调控关系。原先那一批蛋白不必永远留着,但回路需要继续合成蛋白、保持功能元件和相应培养条件。它与把信息写成稳定 DNA 改变的记忆方式不是同一种机制。7
不过,两条抑制箭头并不保证成功。原研究构造了六种基本布局相同的开关,五种显示双稳态,一种没有。抑制效率和表达强度的匹配,会改变有没有两个可保持的状态;补充材料还分别测了组成元件及其对照。1 2
两个稳定状态从哪里来
沿用经典简化模型,把蛋白浓度和时间无量纲化:
分式是受到另一种蛋白抑制后的合成,最后的负项是共同时间尺度下的损失。$\alpha_U,\alpha_V$ 表示相对于损失和抑制尺度的合成强度,$h$ 控制抑制曲线有多陡。它们是简化参数,不应直接当成某条实测启动子的全部性质;漏表达、mRNA 动力学和不同损失率也被省略。1
先取对称情形 $\alpha_U=\alpha_V=\alpha$。若 $h=1$,这个对称模型只有一个正浓度的定点;单有互相抑制,还不能存下两个稳定表达状态。若取 $h=2$,情况就能严格算清。
在定点处,两个合成量分别等于损失量。相减得到:
一类解在 $u=v=s$ 上,满足 $s+s^3=\alpha$。另一类满足 $uv=1$,进一步得到:
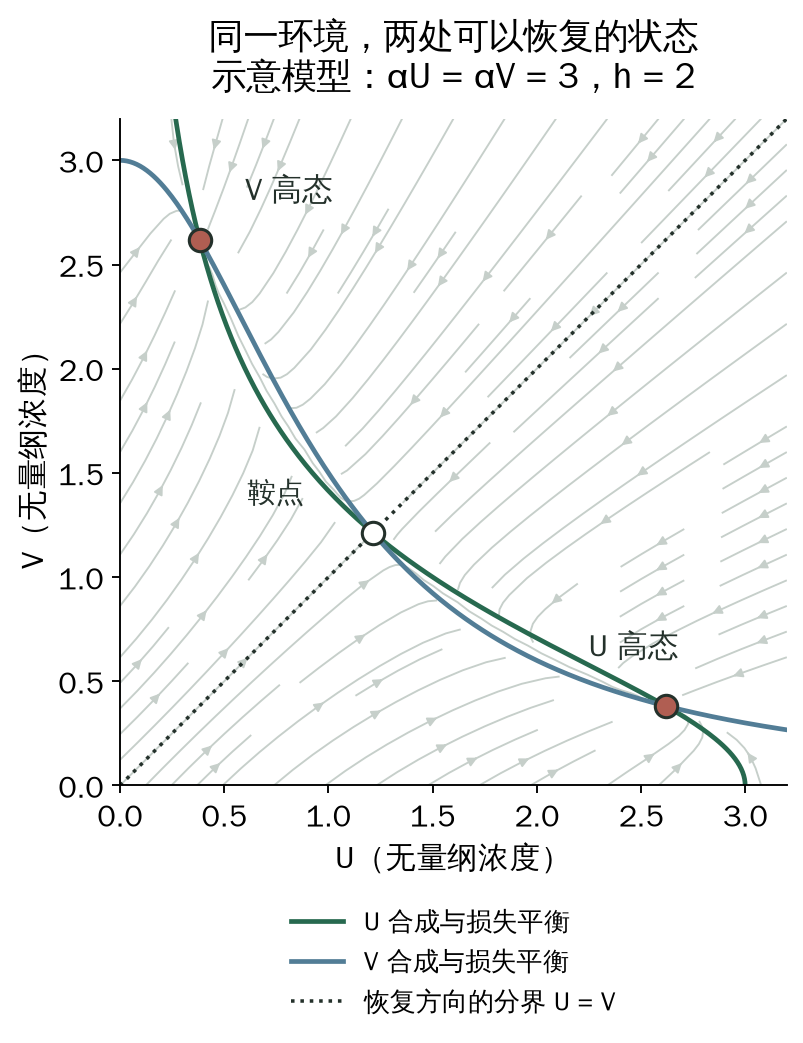
当 $\alpha>2$,出现两个不对称的稳定状态,而中间的对称定点成为鞍点;$\alpha=2$ 是这一特定模型的分界。稳定与否不是看曲线是否相交三次就算完,还要检查偏离定点后,变化会把系统带回来还是带走。本篇计算
本篇选 $\alpha=3,h=2$,两个稳定点约为 (2.618, 0.382) 和 (0.382, 2.618)。线性化的两个特征值均为负,分别是约 −0.333 和 −1.667;中间点约为 (1.213, 1.213),一个方向收回、另一个方向放大偏差,是鞍点。
固定另一侧 $\alpha_V=3$ 后,U 的强度也不能任意调整。本篇计算得到,两个稳定定点共存于约 $2.701<\alpha_U<3.542$ 的区间;越出这个范围,同样的抑制布局只剩一个稳定定点。两个端点是稳定定点与鞍点合并的位置。本篇计算
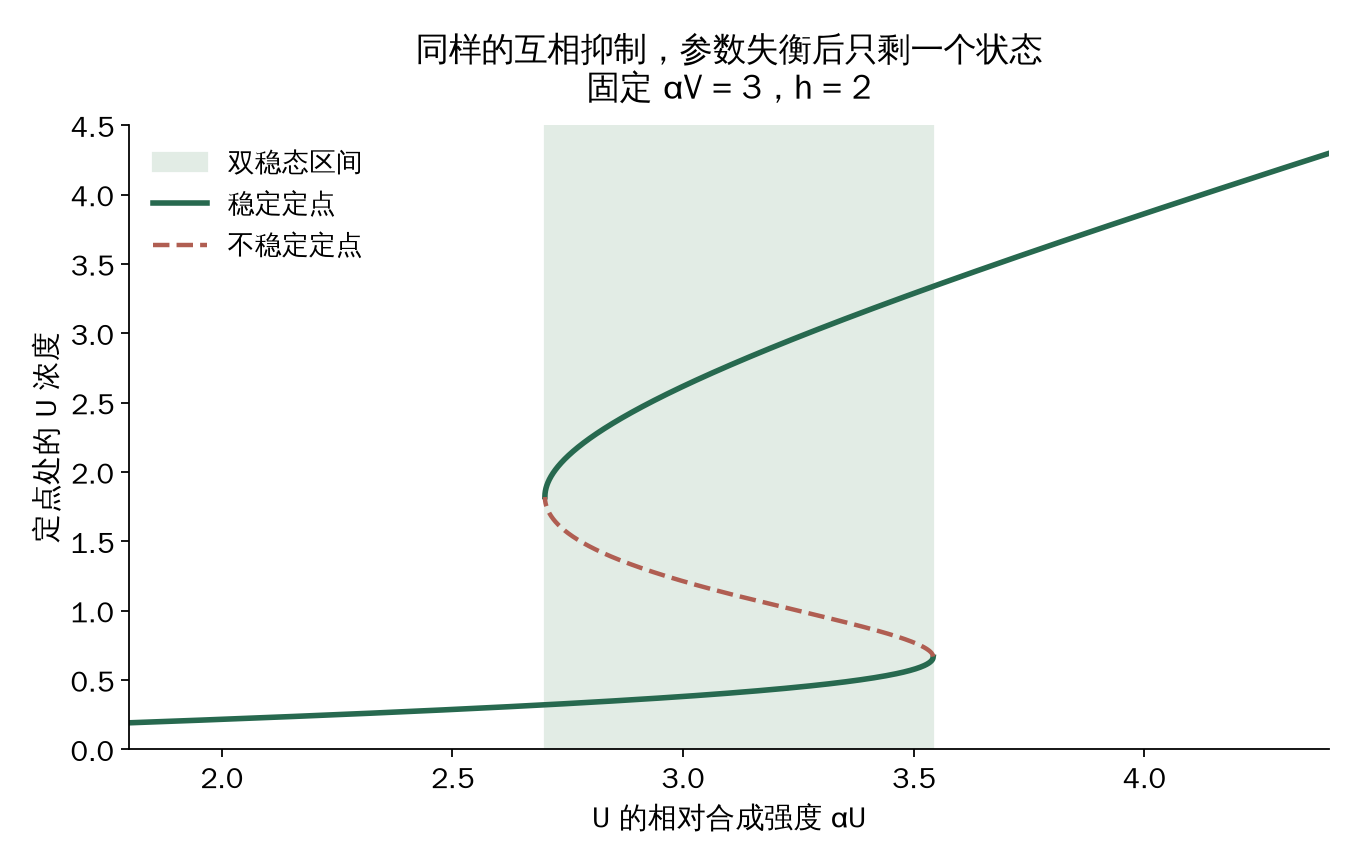
这让“记忆”有了具体的条件:历史只有在当前环境仍允许多个可恢复状态时,才可能选定其中一个。如果培养条件把回路推到只剩一个稳定状态的范围,旧的表达差异通常会逐渐消失。
短刺激需要做完哪一步
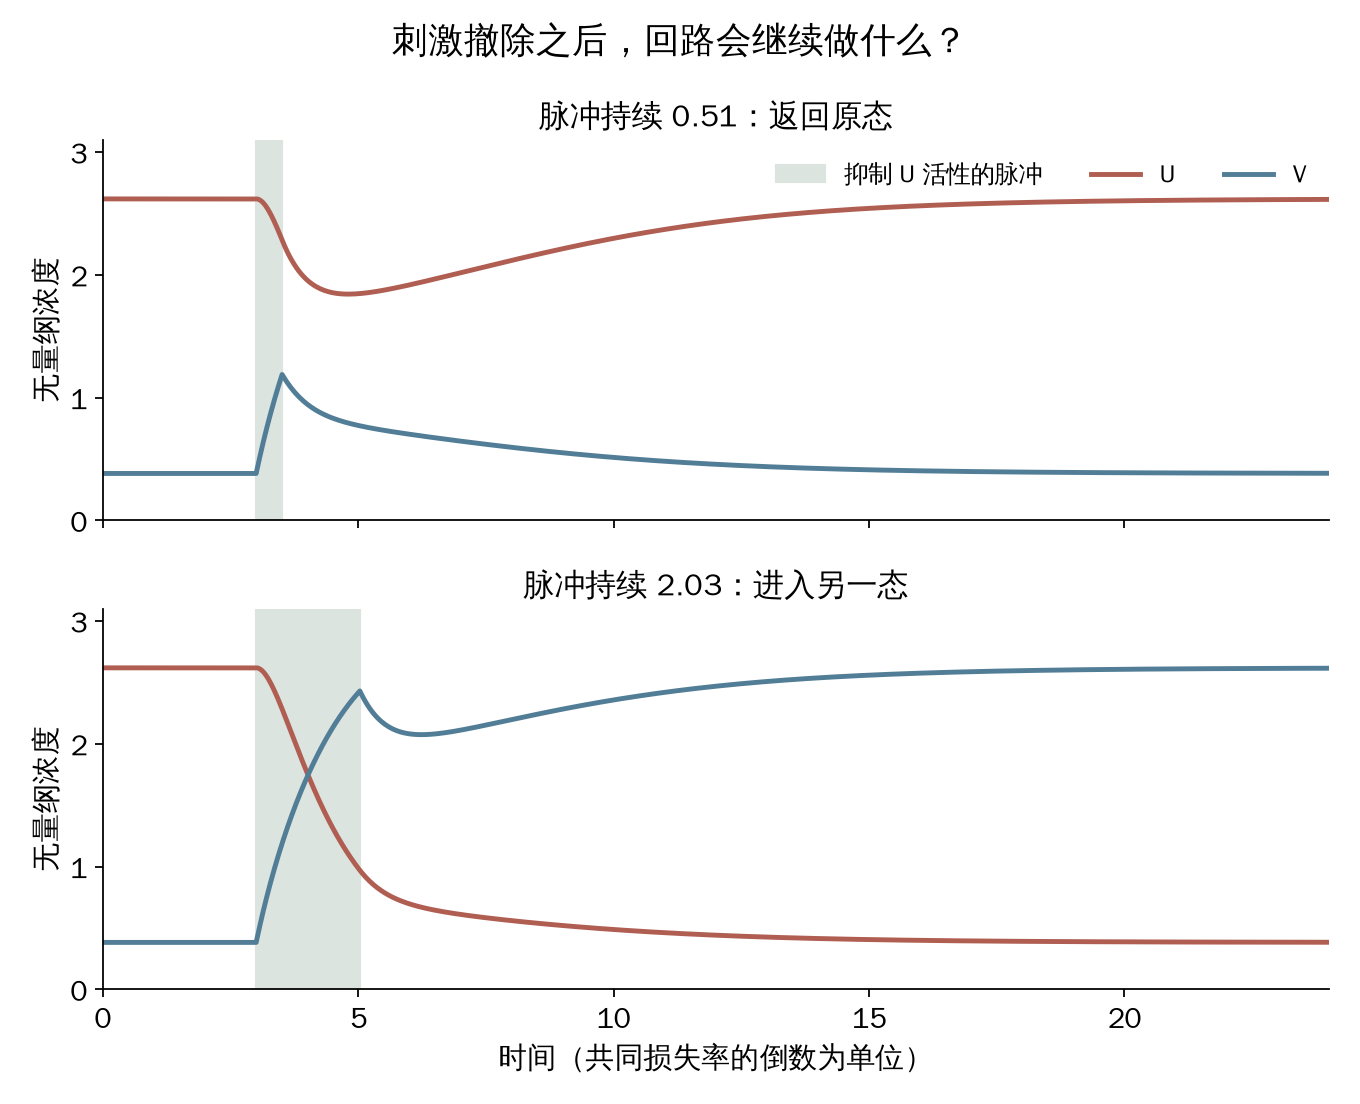
刺激不一定要持续到蛋白达到最终高低水平,它需要把系统推过撤除刺激后的恢复分界。如果还没过去就撤除,回路会把变化修回原态;过去之后,即使刺激消失,也会继续走向另一态。
为把这个过程讲清,本篇让 U 的有效抑制浓度在脉冲期间暂时变为原来的五分之一,其他条件保持相同。以 U 高态为起点,计算越过 $u=v$ 的时间约为 1.015 个无量纲时间单位。持续 0.507 的脉冲会返回原态,持续 2.029 的脉冲则在撤除后进入 V 高态。本篇计算
真实切换不必左右对称。Gardner 等的 pTAK117 构造,由低荧光态向高态切换需要较长的化学诱导,3–4 小时开始明显切换,约 6 小时完成;反向的热诱导切换在 35 分钟以内完成。作者把差别联系到两种抑制蛋白消除方式的不同。它提醒我们:相图能解释为什么可以保持状态,切换速度还取决于具体分子和驱动方式。1
所谓“短刺激”在这里指刺激先于后续保持期结束,不一定只有几秒。强度阈值、持续时间和细胞内部诱导剂消退速度,也不能互相替代。
单细胞实验把哪些解释分开了
一张双峰直方图可以来自具有双稳态的细胞,也可以来自两群参数不同、各自只有一个稳定状态的细胞;缓慢的诱导过程同样可能暂时把群体拉成两部分。因此,仅凭双峰不能判断同一个细胞能否在两种状态之间来回切换。
Lugagne 等 2017 年把相互抑制回路放在微流控装置中,持续记录单细胞的红、绿荧光,并动态改变诱导条件,观察切换和保持。荧光是表达状态的报告量,定点位置和完整相图还需要拟合模型推断,不能全部称为直接测量。3 4
这项研究还有一个重要限定:为得到可靠双稳态,其共同参考环境保留了 aTc 20 纳克每毫升和 IPTG 0.25 毫摩尔每升。脉冲撤除后回到的是这组基础条件,并非两种诱导剂都归零。因此,“不需要持续切换刺激”不等于“不依赖外部条件”。3 4
他们还用持续反馈或合适周期的交替输入,把细胞维持在两种表达相近的中间区域;一旦停止周期驱动,细胞又走向原有两侧。这种受控维持并不是回路在原参数下多出第三个稳定状态,而是持续外部驱动改变了动力学。3
比较证据时,可以据此把几个问题拆开:
| 观察或干预 | 能帮助判断什么 | 仍不能单独证明什么 |
|---|---|---|
| 撤除刺激后继续表达 | 刺激结束后存在持续响应 | 排除极慢衰减、证明无限保持 |
| 两种历史回到同一基础环境 | 当前环境相同仍可有不同结局 | 每个细胞都具有相同参数 |
| 同一细胞的时序与双向诱导 | 限制“只是两群不同细胞”的解释 | 整个真实动力学等于两变量模型 |
| 对照回路回落、记忆回路保持 | 支持反馈结构参与维持 | 拓扑在所有参数下都足够 |
| 停止外部控制后离开中间态 | 中间状态的维持依赖持续驱动 | 原系统存在第三个稳定吸引子 |
有限分子数,让保持时间成为另一个问题
确定性方程只要不受足够大的扰动,就可以一直留在稳定点。但蛋白合成和消失是离散事件,有限分子数带来的波动可能使系统离开一个状态区域。此时应问“通常能保留多久、用什么阈值判断已经离开”,而不是只问有没有两个定点。
本篇另外构造了一个明确的出生–死亡示意模型。令分子数为 $N_U,N_V$,用 $\Omega$ 表示无量纲浓度为 1 时对应的分子数;U 的合成速率为 $3\Omega/[1+(N_V/\Omega)^2]$,损失速率为 $N_U$,V 对称。它保留相同的平均调控形式,但没有显式的 mRNA、启动子开关和细胞分裂。
求解这个模型的平稳分布,可以看到两个高概率区域;不过它们属于同一个相互可达的随机过程。双峰分布与两个完全不相通、永远各自保持的分布,不是一回事。
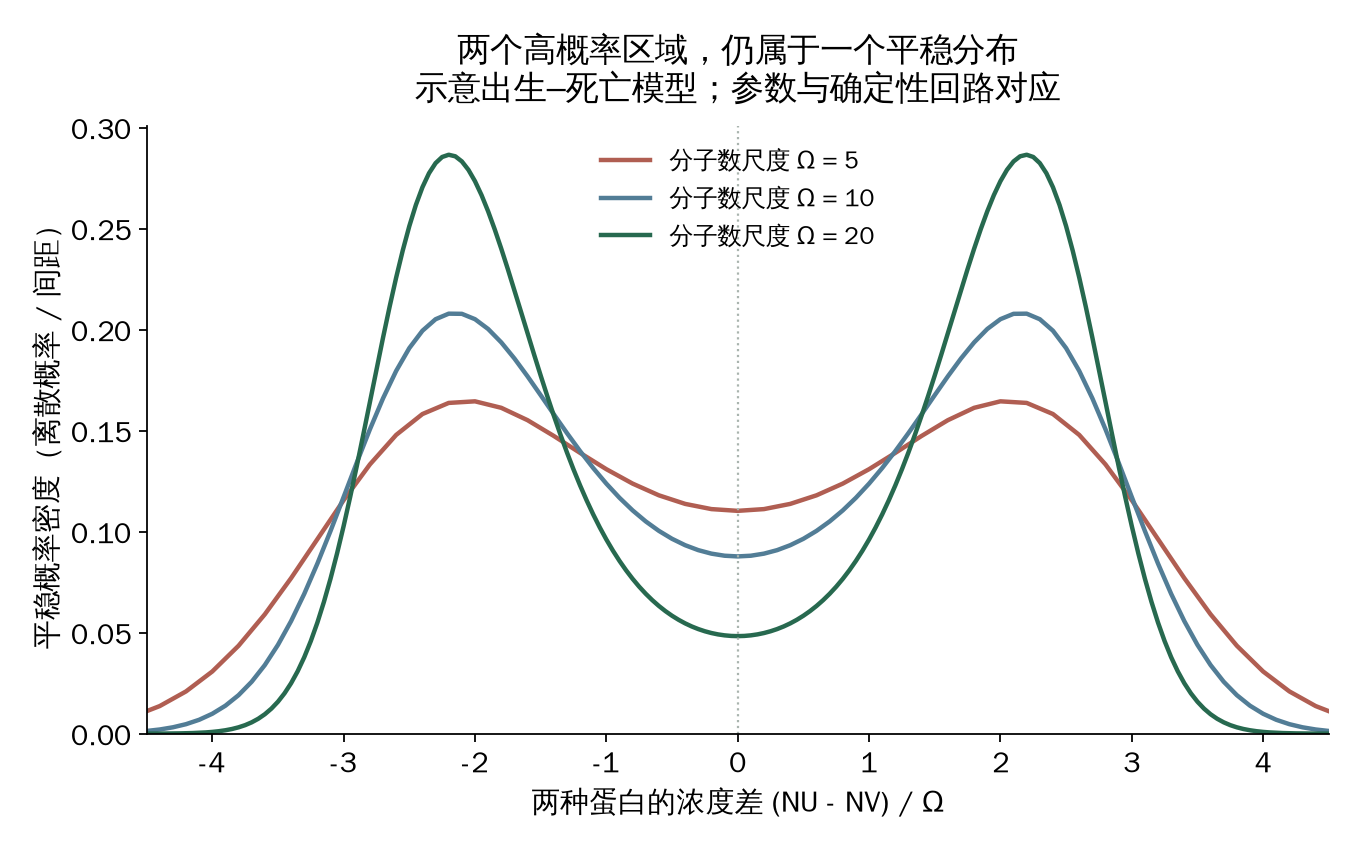
从 U 高态附近的整数分子数出发,把首次达到 $N_V-N_U\ge\Omega$ 定义为到达另一侧,所得平均首达时间如下:
| 分子数尺度 $\Omega$ | 起始分子数 $(N_U,N_V)$ | 平均首达时间 |
|---|---|---|
| 5 | (13, 2) | 21.7 |
| 10 | (26, 4) | 49.9 |
| 20 | (52, 8) | 154.7 |
时间仍以模型的共同损失率倒数为单位。三种情形的确定性定点没有改变,随机保持时间却明显不同。数值上将每种蛋白截断在 $6\Omega$,并在边界占用概率最大的 $\Omega=5$ 情形扩大到 $8\Omega$;平均首达时间改变约 0.0062%。这些数值只是本模型和此到达阈值下的例子,不是任何菌株的记忆寿命。本篇计算
而且,有一个平均首达时间,不等于所有细胞都以同一常数速率切换。要近似成“在状态内快速混合,偶尔以固定概率逃走”,需要局部恢复远快于跨越状态的过程。
Wei 等的一项 2026 年更新预印本用母机装置研究了这个条件。处理后的数据包含 1007 条约 27 小时的单细胞轨迹;他们排除开始 3 小时的适应段,取当时仍在 R 态的 477 个细胞,分析之后约 24 小时首次到达所定边界的过程,其中约 62% 达到边界。不同初始位置的首达统计存在明显差别,生存曲线也并非单一指数衰减,支持这一体系未充分满足简单常速切换近似。5
这里的边界由重建动力学选在鞍区,用来分析逃离过程,到达边界不等于已经完成另一侧的全部表达重建。未到达的细胞还受观察窗口限制;不能只对已切换者求平均,就宣布得到了全体的无限时长平均寿命。作者也明确讨论了有限窗口造成的偏差。5
这项新结果依赖荧光轨迹筛选、动力学重建和有效低维近似,本篇没有重新分析其原始单细胞数据。它支持的是对切换时标和噪声假设的进一步检查,不是对所有双稳态回路的否定。
环境和细胞周期,怎样改写恢复方向
前面的示意回路把损失率和外部环境固定了。真实细胞却会生长、分裂,表达量也受资源和细胞周期影响。改变培养条件,可能同时改变合成、稀释与诱导剂进出,进而移动两个状态及其分界。3 4
Austin 等 2026 年的预印本比较了两种建模方式:把分裂平均成连续稀释,或显式追踪体积增长与周期末分裂。在其阈值型简化回路和特定参数下,两者对部分初始蛋白计数会预测不同的最终优势侧。这个比较固定平均体积,但初始体积及其时间过程并不相同;“相同计数”不能理解为完整物理状态完全相同。结果来自模型,并非直接实验。6
一个物理细节很重要:理想对称分裂时,分子数与体积都减半,浓度不必瞬间减半。显式周期影响还与合成是否随体积变化、抑制按浓度还是分子数触发、分裂分配是否随机有关。不能只在浓度方程里每隔一段时间砍掉一半,就说已经模拟了细胞分裂。6
因此,短刺激能留下长期表达状态,靠的是刺激把回路送入另一个能自我恢复的区域,随后由持续分子更新维持。它成立的范围取决于参数与环境;实际保持多久,还取决于噪声、细胞周期和读出的定义。状态记忆是真实可构造的,但“存在可维持的状态”与“永不遗忘”是两个不同结论。