环是怎样长出来的
这里的DNA环,不是剪下一段DNA,再把它首尾接成小圆圈。它是一条连续长链在空间里折回,让原本在序列上相距很远的两段靠近;环的外侧仍连着其余DNA。所谓“挤出”,就是在环根部持续收进更多轮廓长度,使环扩大。
文中用kb计沿DNA的长度,1 kb是1000个碱基对;它与显微镜里两个标记点之间的直线距离不是同一种量。
2019年,研究者把纯化的人cohesin及NIPBL与DNA放进流动池,用单分子成像观察DNA的变化。cohesin-NIPBL能让裸DNA和带核小体的DNA逐渐压缩;ATP水解受阻,或缺少NIPBL时,这项活动受到抑制。对两端固定的DNA,成像还显示增长中的DNA环。重要的不只是“出现一个亮点”,而是亮点所含DNA增加、环外DNA相应减少,以及蛋白和环的空间关系与持续收进DNA的过程相符。1
一个静态桥接蛋白也能把两个远处位点拉近,因此压缩、靠近、持续挤出是强度不同的判断。ATP依赖的连续过程与单分子环增长,为cohesin具备挤出能力提供了比静态压缩图更直接的证据。但这仍然是重构体系中的能力证明:不能仅凭细胞内也有一个环,便确定那里只使用这一条动力路径。1 6
抓住、交接,再把下一段收进来
cohesin不是一颗普通球状蛋白。其SMC1与SMC3亚基形成长臂,一端连接在铰链处,另一端是能结合并水解ATP的“头”;RAD21连接相关亚基,STAG参与DNA相互作用。NIPBL除了参与加载,还会调节DNA结合与ATP酶活动。把它理解为“只负责把cohesin搬上DNA,随后就不管了”,不足以解释重构和辅因子干预结果。1 5 8
解释挤出的一个基本思路是:复合体同时与不止一段DNA接触,某处负责保持已有的环,另一处捕获或夹住下一段;ATP结合及水解改变这些接触和蛋白构象,使DNA的交接带有方向性。反复进行,就把随机晃动的DNA转成净的轮廓长度输运。具体是哪一个结构动作承担主要位移、何时换手、单个复合体怎样切换两侧,仍有不同模型。2 5
这个框架有实验约束,而不只是一个“夹子拉绳”的比喻。破坏特定DNA结合面或ATP反应会改变活动;挤出的步长、速度也会随外部条件变化。另一方面,不同重构对复合体计量、DNA结合方式与运动对称性有各自限制。蛋白整体带有环状结构,不等于本题所有挤出过程都已被证明是“DNA穿过那个大圆环”这一种几何方式;它与抓住两条姐妹染色单体的黏连功能也必须区分。1 2
CTCF能拦,但不是逢到必停
CTCF会识别有方向性的DNA序列,因此它在DNA上有确定朝向。N端、C端指蛋白质链的两端,不是这条DNA的两端。2023年的实验让一个正在增长的环遇上CTCF,再把结合位点翻转,比较从CTCF的N端一侧或C端一侧接近时的结果。CTCF留在环外、增长受到阻挡,与CTCF被纳入继续增长的环,是可在成像中区分的两类事件。2
在DNA张力0.04–0.08皮牛顿这一统计区间内,作者图表源数据给出的结果是:
| 相遇对象 | 被阻挡次数 / 相遇次数 | 本批事件中的阻挡比例 |
|---|---|---|
| CTCF的N端一侧 | 54 / 119 | 45.4% |
| CTCF的C端一侧 | 18 / 115 | 15.7% |
| dCas9对照 | 1 / 19 | 5.3% |
这三个数的分母都是已经发生的相遇,不是DNA上所有可能的位点,也不是CTCF在细胞内的占据率。N侧更容易阻挡,但仍有相遇后通过的事件。dCas9的分子质量更大,阻挡却较少,说明不能只把CTCF解释成一块尺寸较大的障碍物。2 3
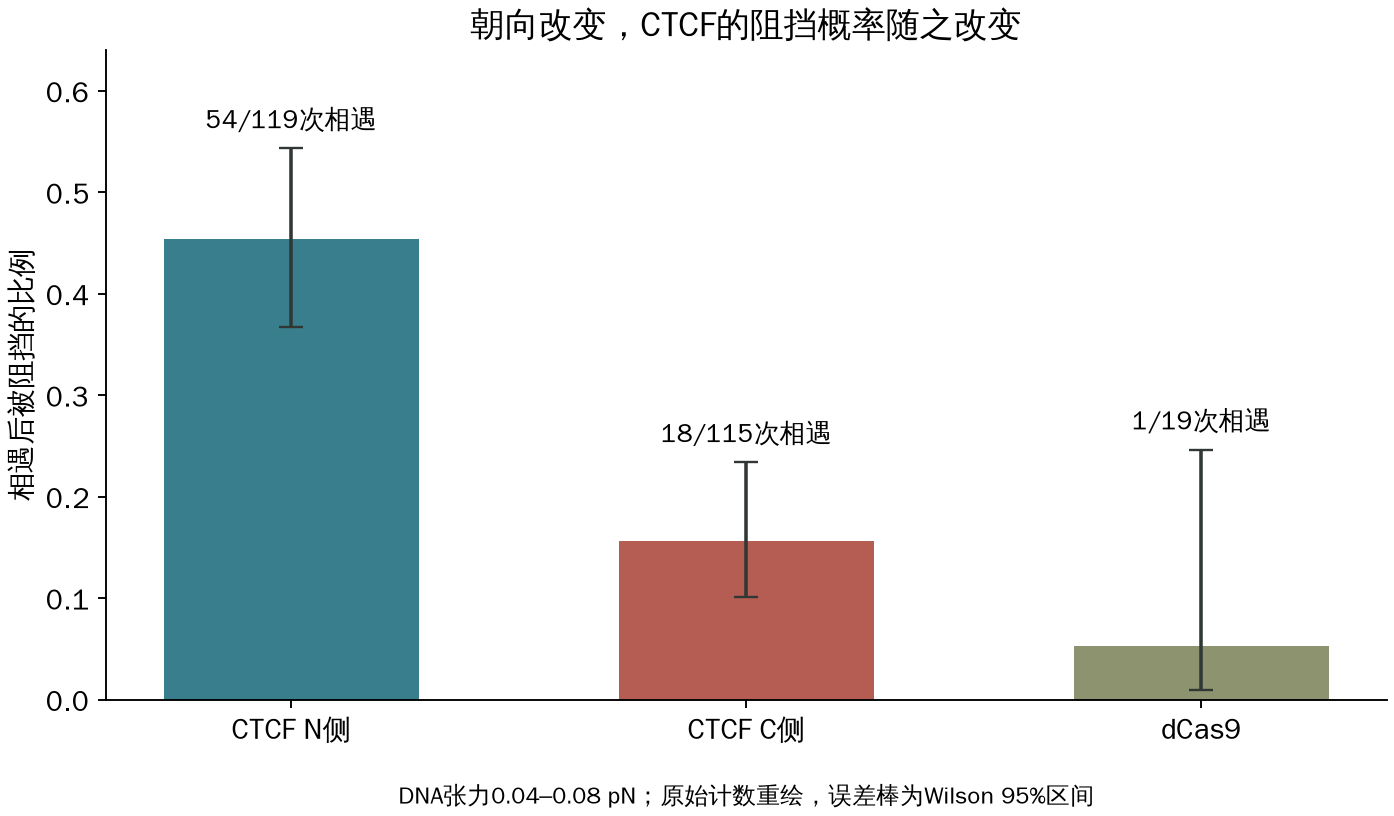
**为什么方向会有用?**CTCF的N端可以与cohesin相互作用,朝向不同会改变相遇的几何和相互作用机会。两侧朝向相向的结合位点,因此更容易在内部挤出过程到达时形成边界。这里的“更容易”很重要:序列朝向给的是偏向,是否有蛋白占着位点、相遇时能否阻挡以及阻挡持续多久,还要继续问。2
**为什么拉紧程度也有用?**在两端固定的实验DNA上,越来越多的DNA收进环里,两端之间剩下的轮廓长度变少,于是环外DNA变紧。实验发现张力较大时,CTCF更容易挡住挤出;张力很低时则更容易通过。这个力是根据DNA长度、延伸程度与力学模型估计的,不是在每次相遇时另有一台仪器直接读出。2 4
这并不等于“只是马达自己拉不动了”。在相近高张力下,没有CTCF时仍有环继续增长;从CTCF不同朝向接近,也表现出不同的阻挡效率。蛋白相互作用和机械负载共同参与了结果。但微观原因尚未被唯一分离:可能是运动变慢增加了相互作用时间,也可能是DNA涨落、接触几何或克服结合的能力变化。作者检验过“张力让步长变小,所以更难一步跨过CTCF”的简单解释,模拟没有支持它。2
CTCF还可能让cohesin换到另一侧收DNA。部分高张力事件中,环脱离CTCF后会缩小,而非继续扩大。因而相遇后的结果不只是“停”或“过”,还包括换向、短暂锚定和缩回;这也是固定路障图像不够用的地方。2
在细胞的接触图中,一段DNA内部相对更容易接触、跨越边界的接触较少,这样的区域称为拓扑关联结构域,简称TAD。这个名称描述的是接触富集,不保证整段区域恰好由一个固定的环围住。7
到得了、拦得住、留得久,是三件事
只知道马达速度,不能决定环会长多大。cohesin可能在抵达目标位点之前离开DNA,CTCF可能暂时不在位,已经形成的阻挡也可能很快结束。
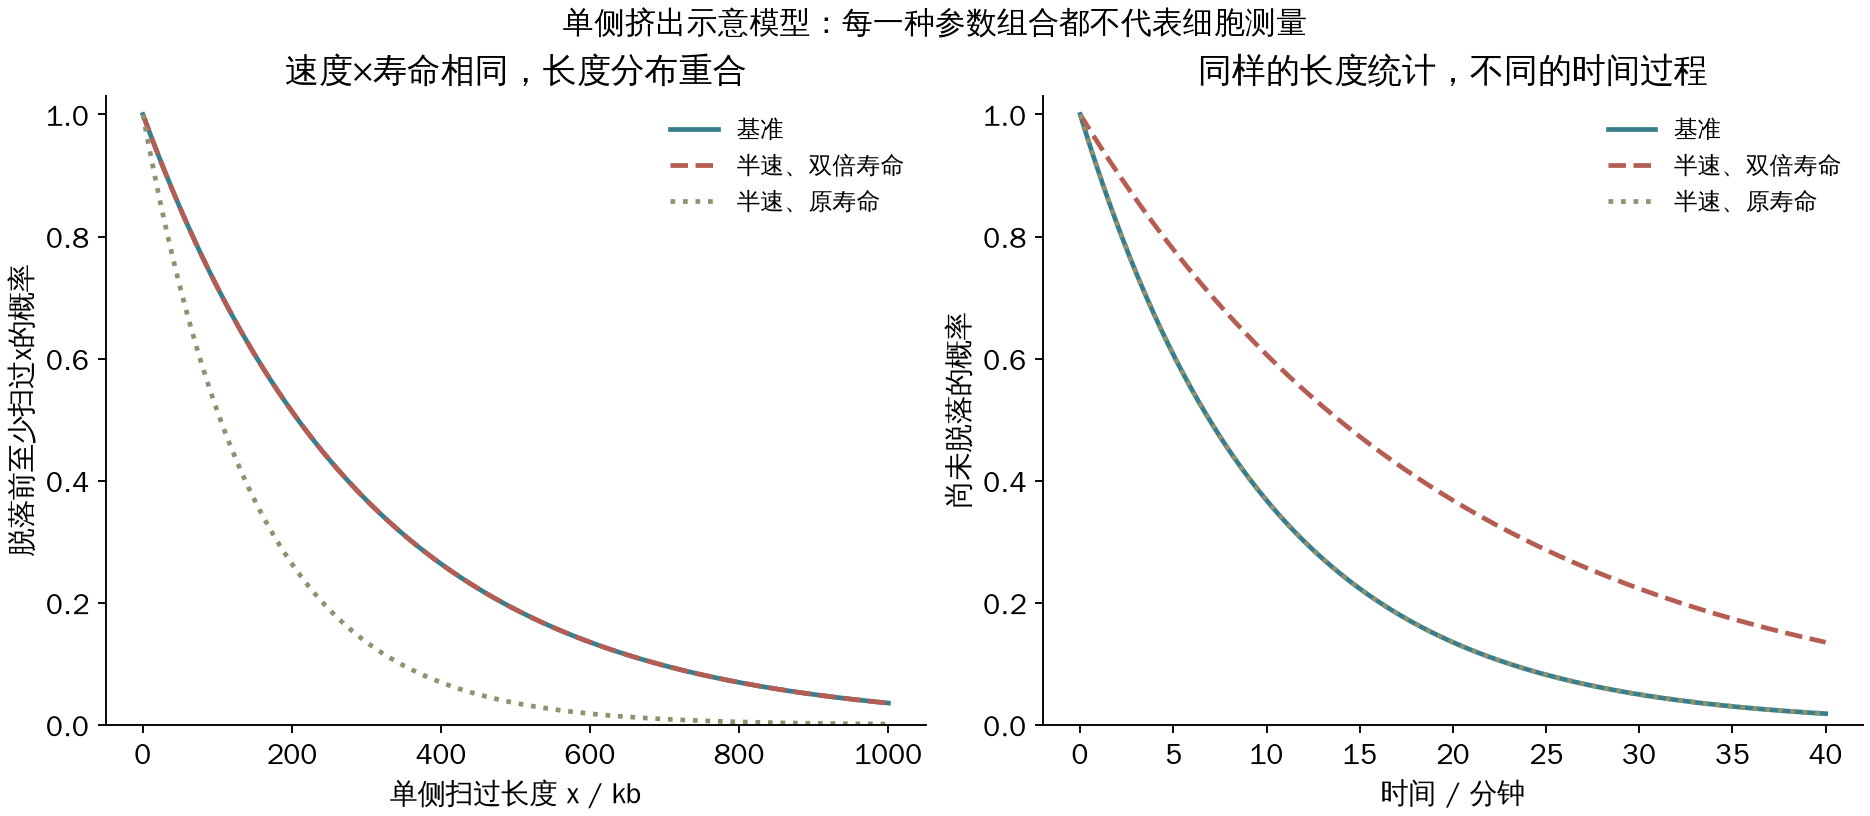
用一个可手算的模型区分这些过程。只看一个移动端,它沿DNA以恒速$u$推进;cohesin停留时间$T$服从平均值为$\tau$的指数分布,即单位时间脱落概率不随已停留时间改变。忽略其他障碍和马达,则脱落前扫过的长度$X=uT$满足
于是,推进长度统计由乘积$u\tau$控制。设一组$u=0.5$ kb/s、$\tau=600$ s,另一组速度减半而寿命翻倍,二者的平均单侧推进长度都是300 kb;但走到100 kb处,前者需要200秒,后者需要400秒。只看最后扫过多长,两组可以相同;看时间过程,就不同。这些参数是本库的示意选择,单端速度也不能直接与某篇论文的双侧总环增长速度对号入座。
再设目标位点距该移动端$d$,遇到时被CTCF占据的概率为$\theta$,有CTCF时条件阻挡概率为$p$。在这三个因素独立、且只计首次相遇的简化条件下,
代入示意的$d=100$ kb、$\theta=0.8$,以及上表N侧的条件比例,基准模型中该事件的概率约为26%。它不等于45%的实验相遇阻挡率,因为模型还计入了“没活到那里”和“那里暂时没人”。它更不是细胞内一个TAD两端形成完整闭环的概率:另一端、重复相遇、空间构型都还没建模。
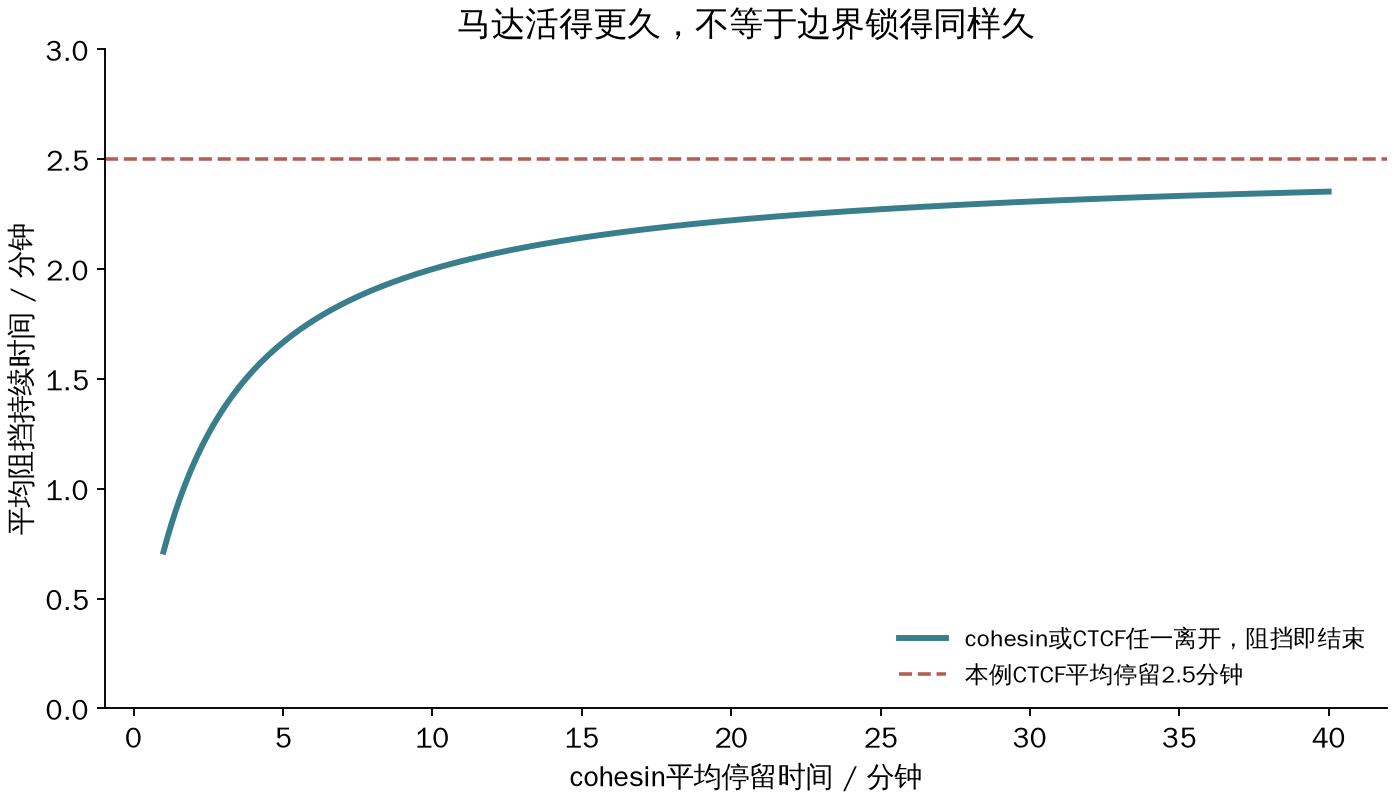
同样,cohesin在DNA上能待10分钟,不代表它会在边界上连续停10分钟。若相遇后CTCF和cohesin的剩余停留时间分别服从均值为$\tau_C$和$\tau$的独立指数分布,任何一方离开都结束这次阻挡,则平均阻挡时长为
取示意的$\tau_C=150$ s,即使cohesin平均停留600 s,阻挡也只平均持续120 s。cohesin寿命再翻倍,阻挡时长仅增加到约133 s。实际系统可有多阶段解离、重新结合和暂停后的恢复,因而这些式子是分清因素的最小模型,不是对细胞参数的拟合。
这个区分与近期辅因子研究的思路相接:NIPBL、PDS5和WAPL会影响加载数量、运动速率和停留时间。2026年发表的剂量调节研究把细胞干预、荧光测量与聚合物模型结合起来,支持“减慢挤出可部分抵消寿命延长造成的结构变化”。速率并非在这些细胞里逐台马达直接读出,而是受多种观测约束的模型推断;本文的简单乘积关系也不能替代其完整染色质模型。8 10
活细胞里,看到靠近不等于看到锁死
2025年的一项研究在HCT116人细胞的三个内源TAD两端放置荧光标记,连续跟踪三维距离;再用可诱导降解的方法移除RAD21,比较有无cohesin时的变化。不同于一张平均接触图,这能观察同一对位置随时间靠近、离开。7
研究定义的“近邻状态”,是两个标记在持续一段时间内保持较小距离。按主要分析口径,这三个TAD约16–17%的时间处于近邻状态,平均每小时进入约一次;改变判定阈值后,近邻持续时间大致落在6–19分钟。**这里量到的不是一个特定cohesin分子的寿命,也不是直接证明两端在这段时间内被同一个分子始终锁住。**随机染色质运动也可能让标记靠近,标记与真实锚点之间有基因组距离,空间定位本身也有误差。7
论文用聚合物模型进一步估计:这些区域多数时候处在包含多个内部环的状态;真正两端直接闭合的状态可以很少。它还区分“两个锚点之间未挤出DNA减少的速率”和“一个马达在无障碍DNA上的速度”。前者受多个cohesin及内部CTCF共同影响,不能直接改名成后者。其细胞内马达速度的上界判断,也依赖模型与成像频率。7
因此,TAD在群体接触图上看起来清晰,并不要求每个细胞里都有一个边界完全相同、永久不动的环。不断加载、增长、相遇和脱落的多个环,可以产生稳定的统计富集。反过来,这项研究只比较了特定细胞中的三个较强、偏低转录TAD;它们能共用一组动力学参数,并不证明全基因组或所有细胞状态都没有局部调节。7
从能力到实际动力来源,还需竞争解释
2024年的酵母研究做了一项重要拆分:某些cohesin变体在受检体外条件下失去或大幅削弱挤出能力,却仍能在细胞中形成染色质环的接触信号。研究者还先让环形成,再移除加载因子Scc2,随后让转录机器越过原先的终止位置继续前进,即“转录读穿”。已有环随之扩大,据此提出转录机器可作为外部动力,推动已结合的cohesin或相关DNA结构。6
这项研究的一组Scc2耗减图后来被更正:原实验误用了另一个蛋白的降解标签,作者补上正确菌株的数据,报告其定性结果相同。本文核对了正式勘误,并按更正后版本引用。这个竞争证据值得保留,但不能把“体外缺陷”直接等同为“细胞内所有挤出必然完全消失”;原文也承认细胞环境可能补偿体外缺陷。6 9
它与人cohesin的体外挤出实验并不互相取消:一个证明复合体能做什么,另一个追问在某些细胞条件下究竟由谁提供动力。酵母的同步培养、转录干预和环组织,不能直接套成人细胞CTCF边界的唯一解释。对本题最重要的要求是,把“存在cohesin依赖的环”“由cohesin自身持续挤出”“由外部过程推动”分成可以分别检验的判断。
DNA不只会弯,也会被扭
把DNA折成空间环,与改变双螺旋的扭转,是两种形变。2025年的研究给出证据,cohesin在夹持DNA时还能引入负超螺旋;这一过程与ATP头部结合、DNA夹持面和铰链上的DNA结合位置有关。研究不仅观察质粒拓扑变化,也比较相应突变与细胞内环长度。5
其中一个有区分力的结果是:阻碍ATP结合或头部结合会削弱超螺旋形成,而阻碍后续水解的突变仍可保留该变化。这把一次夹持导致的扭转,与需要连续循环的挤出区分开了,不能反过来说“既然水解受阻还有扭转,持续挤出就不需要ATP水解”。5
相应突变会让细胞中的长环减少,拓扑异构酶I耗减也产生较弱的相似表型,支持扭转处理与环增长相连。但突变会同时影响夹持、ATP反应和机械活动,尚不能只从一个变体的短环表型量出“纯粹扭转”贡献了多少。它推进了分子层的解释,并没有把每一个ATP事件与每一段DNA位移完整对应起来。5
回到题目:局部复合体可以通过反复的DNA接触与能量循环,把长链组织成不断增长的环;它在哪里停下,取决于途中遇到什么、以什么方向和负载相遇,以及相关分子能在那里停留多久。这个过程允许稳定的空间统计与持续更新的组成部分并存。当前最可靠的图景是这种带条件、可更新的组织过程;具体到每种物种、每个细胞状态和每一步分子动作,仍要让对应的实验来回答。