一扇门,实际上包含三件事
细胞核外面包着双层膜。许多在胞质中制造、却需要在核内工作的蛋白质,必须经过核孔。核孔并不是一块开了几个洞的普通滤网:一些没有相应相互作用的大分子进入得很慢,另一些带着运输受体的大分子却能有效交换。1 2
容易产生的疑问是:如果孔内材料会挡住大分子,为什么带上一个受体、体积反而更大以后,货物更容易通过?如果受体靠“黏住”孔里的蛋白来获得通行优势,为什么没有一直黏在那里?还有,分子本来在随机运动,怎么最后能让核内比核外积累更多货物?
这三个问题不能只用“选择性”一个词回答。
| 想知道什么 | 应当看什么 | 不能直接替代它的量 |
|---|---|---|
| 能否进入、容易穿过多少 | 相同浓度差下的通透性,或进入后成功穿过的概率 | 孔附近荧光很亮 |
| 一次运动有多快、总共运多少 | 单分子轨迹、停留时间分布、单位时间的通过量 | 核内外某时刻的荧光比例 |
| 为什么在核内积累 | 装载、释放、回收与泄漏的循环,以及持续驱动 | 孔内某一段扩散得快 |
下面以蛋白质的运输受体途径为主。核孔还承担RNA等复杂货物的运输,那些过程涉及额外因子,不能全部装进同一个Ran循环示意图。
孔里是会动的材料,尺寸门槛也不是一道刻线
核孔复合体有负责支撑的蛋白骨架。骨架上锚定着大量柔性蛋白链,其中一些重复出现苯丙氨酸和甘氨酸,简称 FG重复序列。这些链不是整齐排列、不动的刷毛;它们不断改变构象,也与邻近链和运输受体发生接触。3
一个大分子进入这样的区域,需要挤出空间,并限制周围链条原来可以采取的姿势。用热力学语言说,这会产生进入的自由能代价,其中包含熵的损失。体积、形状、表面性质,以及周围链的密度和组织方式,都可能影响这项代价。把它理解成“要在不断活动的人群中挤出位置”,比理解成刚性圆孔更接近这里的问题;但分子没有意图,也不会主动让路。
2016年的酵母实验给出一个直接例子:研究者把不同数量的蛋白结构域接到GFP上,改变报告分子的大小,漂白胞质中的荧光,再观察核内荧光如何随交换而衰减。对于实验直接测量的27至67 kDa报告物,通透性随质量逐渐下降,并没有在40 kDa处突然变成零。归一化到典型细胞后,27 kDa报告物的交换时间常数约15秒,67 kDa报告物约413秒。1
这里的几百秒是核内外荧光重新分配的时间,不是一个分子在孔里走了几百秒。 它还包括分子在整个区室中的分布、遇到核孔的机会,以及核孔数量。实验在计算通透性时专门校正了核和胞质体积,并估计核孔数。
更大的分子也可能在更长时间内缓慢交换,但“没有绝对截止线”不等于屏障没用。如果某种物质穿越所需的总体交换时间,远长于细胞需要调控它的时间,缓慢泄漏与快速有效运输仍是非常不同的功能状态。相反,不能由某个大小在一组条件下能通过,推出所有同质量分子都一样。
受体提供通行优势,也参与塑造屏障
需要进入核内的许多蛋白带有核定位信号,简称NLS。信号由相应受体或接头识别;以常见途径为例,importin α识别货物,importin β与核孔中的FG区域相互作用。Kap是这一类运输受体的名称,酵母Kap95相当于这里的importin β。2 4
受体的作用首先是改变货物与孔内材料相处的方式。没有合适接触面的货物,只承担进入拥挤区域的代价;带有受体的货物,还能从FG接触中获得有利相互作用,部分抵偿进入代价。这并不要求每个FG接触都牢固持久。一个受体可以轮流接触多个位点,有些接触断开时,另一些仍在,因此整体既可能保持在孔附近,也可能逐步换位置。
“单个接触容易断”和“整个受体容易彻底离开”不是同一个问题。多点接触、反复重新结合,以及有限空间中的运动限制,可以使两者的时间差很大。
2025年的一项高速原子力显微镜研究进一步发现,运输受体不只是穿孔的过客。研究者对分离出来的酵母核孔进行成像,看到中央区域和周围FG材料持续变化;中央凸起结构被称为中央塞,简称CP,但这个名称并不表示它是一块固定堵头。3
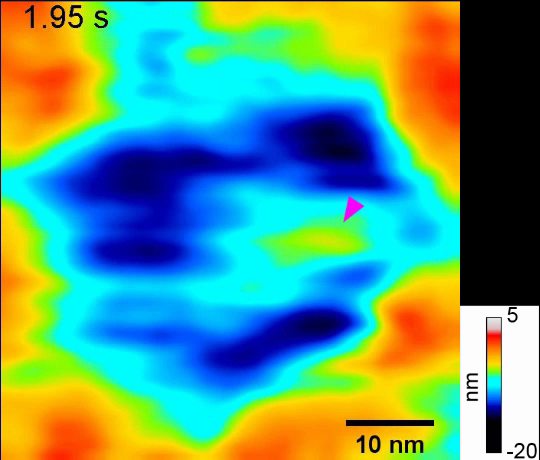
这项实验有两组特别有用的干预。
第一组,让分离核孔在缓冲液中放置。随着Kap95及其他伴随成分流失,中央结构在许多核孔中变得不再可见。随后补入纯化Kap95,能够随剂量恢复类似中央结构的高度和形态。这支持受体参与屏障组织,但不是“只拿走一种分子,再完美放回”的实验:流失的成分不止Kap95,补加后的动力学也并非处处恢复到新鲜样本的状态。CP的完整分子组成和结构仍不清楚。
第二组,改变FG链本身。研究比较正常酵母、删去一部分FG段的ΔFG菌株,以及把Nsp1的FG段加长为两倍的菌株。后者叫Nsp1FGx2,意思是这一种蛋白的相应片段加倍;按作者估计,整个分离核孔中的FG重复浓度约从53增加到69 mM,约高30%,不是所有FG都翻倍。浓度也是按结构体积与拷贝数计算的估计值,并非逐个孔直接测出的均匀液体浓度。
本库从论文公开数据表重新提取细胞荧光比,结果如下。3
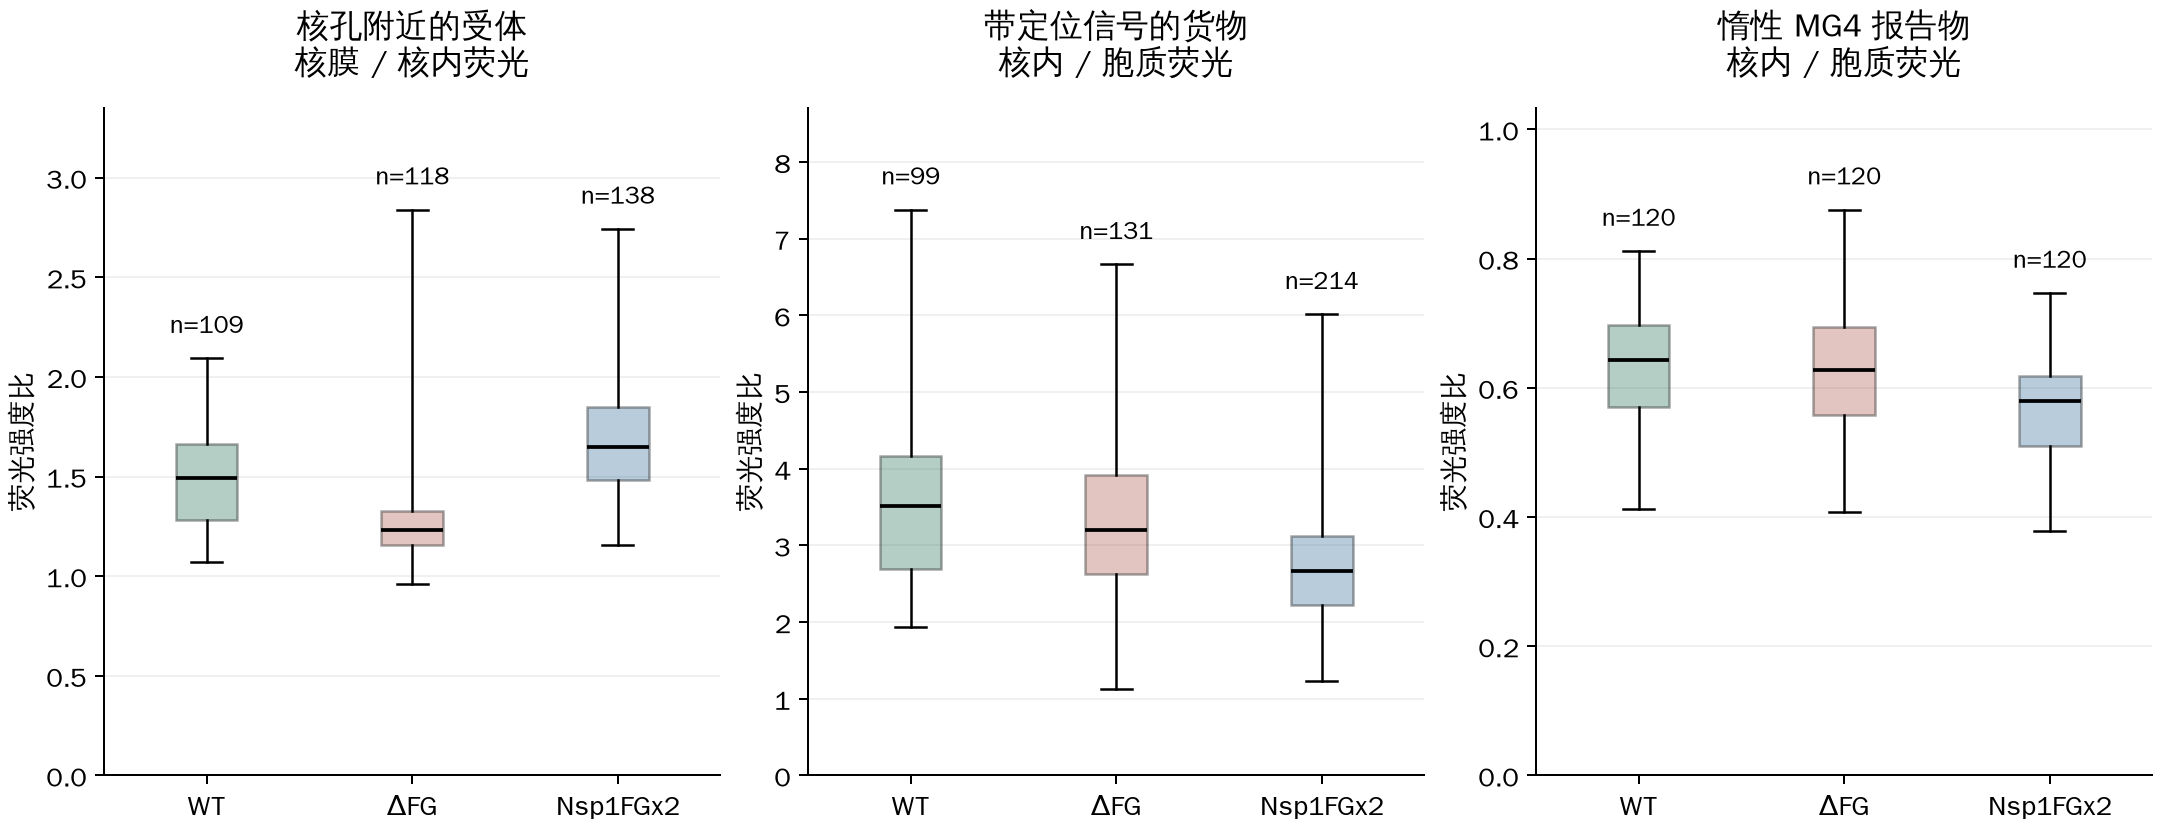
| 测量指标,中位数 | 正常WT | ΔFG | Nsp1FGx2 |
|---|---|---|---|
| Kap95核膜/核内荧光比 | 1.491 | 1.232 | 1.651 |
| NLS货物核内/胞质荧光比 | 3.514 | 3.203 | 2.671 |
| MG4核内/胞质荧光比 | 0.643 | 0.628 | 0.579 |
Nsp1FGx2的受体核膜/核内比更高,而NLS货物核质比约低24%。惰性MG4的核质比也更低。这里可以稳妥地说:更多受体聚集在核孔附近,没有自动变成更高的货物核内富集。 增加FG材料还可能让被动进入更困难。
不能把表中的24%写成“货物穿孔速度下降24%”。比例同时受到进入、出去、结合、释放与细胞内状态的影响;MG4比例也不是单孔通量计。不同报告物的荧光比不能当作已经校准到同一含义的通透系数互相相除。
数据表另有一处小缺口:三列原始数值比图注各少一个细胞条目;这里按可取得的数据重绘,相关中位数与作者汇总值一致。差异原因未确认,不补造数据;逐列位置和统计口径保留在研究记录与计算输出中。
直接看货物走路,能看到什么
高速原子力显微镜看到的是屏障高度随时间变化。它不能仅凭一片高度图就告诉我们哪一个货物成功穿过去。2025年的另一项研究用双颜色MINFLUX:先定位人细胞核孔骨架,再跟踪带荧光标记的importin α,观察进口复合物和受体回收的出口过程。4
研究使用的是未固定、但经过通透化处理的U2OS细胞,外加重组运输因子、货物和GTP。它保留核孔所在环境的一部分,同时允许控制反应成分;这与在完整活细胞中毫无干预地追踪所有运输不是一回事。
轨迹显示,在这套体系中:
- 进核和出核经过的区域重叠,主要位于偏离中央轴线的环状区域,并没有简单分成互不相交的单向车道。
- 分子在孔中有停顿,也有较大的位置变化;并非从一端沿直线匀速滑向另一端。
- 进入后又返回原侧的轨迹也存在。因此,看到“靠近核孔”或“进入一部分”,并不等于完成运输。
这些观察与“短暂接触、局部受限、接触更换后再继续扩散”的机制相容。但轨迹停顿本身还不能区分:是某个FG接触更牢、局部空间较窄,还是装卸反应尚未完成。实验还受到定位误差、光漂白和过快运动失去追踪的影响。论文纳入分析的225条靠近孔中部的轨迹,并不是225次完整成功运输,更不能用它们占全部被扫描轨迹的比例直接估计真实穿孔成功率。
那么,“快速”究竟快在哪里?比较对象主要是同类大分子缺少合适受体时的缓慢进入和交换。受体提供的是穿过这段几十纳米障碍区的机会;孔内的局部运动仍可比自由溶液中慢得多。许多分子同时使用动态可行路径,也能带来较大的总体运输量。穿孔优势不要求分子在孔内超过自己的自由扩散速度,更不要求每一次进入都成功。4 5
同样,原子力图的整帧间隔约150毫秒,单线扫描可以达到1.875毫秒;线高相关性的衰减描述的是材料的波动。MINFLUX的位置采样最快约0.5至0.6毫秒,测量的是标记分子的轨迹。材料波动时间、轨迹被记录的时长和完整运输的停留时间,必须分别看。 3 4
为什么更会结合,反而可能运得更少
先做一个小到可以核算的例子。它借用扩散加可逆结合的理论思路,但不是对真实核孔的完整模拟,也不是2007年原论文的逐图复现。6
把通道离散成5个位置。分子进入最左边后,在相邻位置间向左、向右随机跳动,两个方向速率都取1。到了端点,它可以以速率$k$离开。两端的离开速率相同,所以通道没有预设向右的偏好。
为了单独看占用的影响,整个模型通道一次只容纳一个分子。通道为空时,左侧分子以到达率$\lambda=0.1$进入,平均等待10个模型时间;右侧维持空的接收端。增强有效结合只体现为减小两端的离开速率,不改变内部跳动速率。所有时间和参数都为示意值,没有拟合核孔实验。
对一般的$M$个位置、内部跳动速率$r$,解各位置的到达概率和平均离开时间,可以得到:
前者是从左端进入后,最终从右端离开的概率;后者是在任意一端离开前的平均停留时间,不是只对成功穿过者计算的时间。
减小$k$时,分子不容易刚进入就从左边退出,有更多机会探索通道,因此成功概率上升。但它最后从任何一侧脱离都更难,平均占用时间也增长。单位时间成功穿过的数量于是为:
分母是“等来一个分子,再等它离开”的平均周期,分子是每周期成功的概率。
| 两端离开速率$k$ | 成功穿过概率 | 平均停留时间 | 成功通量$J$ |
|---|---|---|---|
| 1 | 0.167 | 2.5 | 0.01333 |
| 0.35 | 0.294 | 7.14 | 0.01716 |
| 0.1 | 0.417 | 25 | 0.01190 |
| 0.01 | 0.490 | 250 | 0.00189 |
结合从弱一些变到适中,成功概率的收益可以超过等待时间的损失;再往强结合方向走,成功概率快接近上限,停留时间却仍快速增加,通量就下降了。
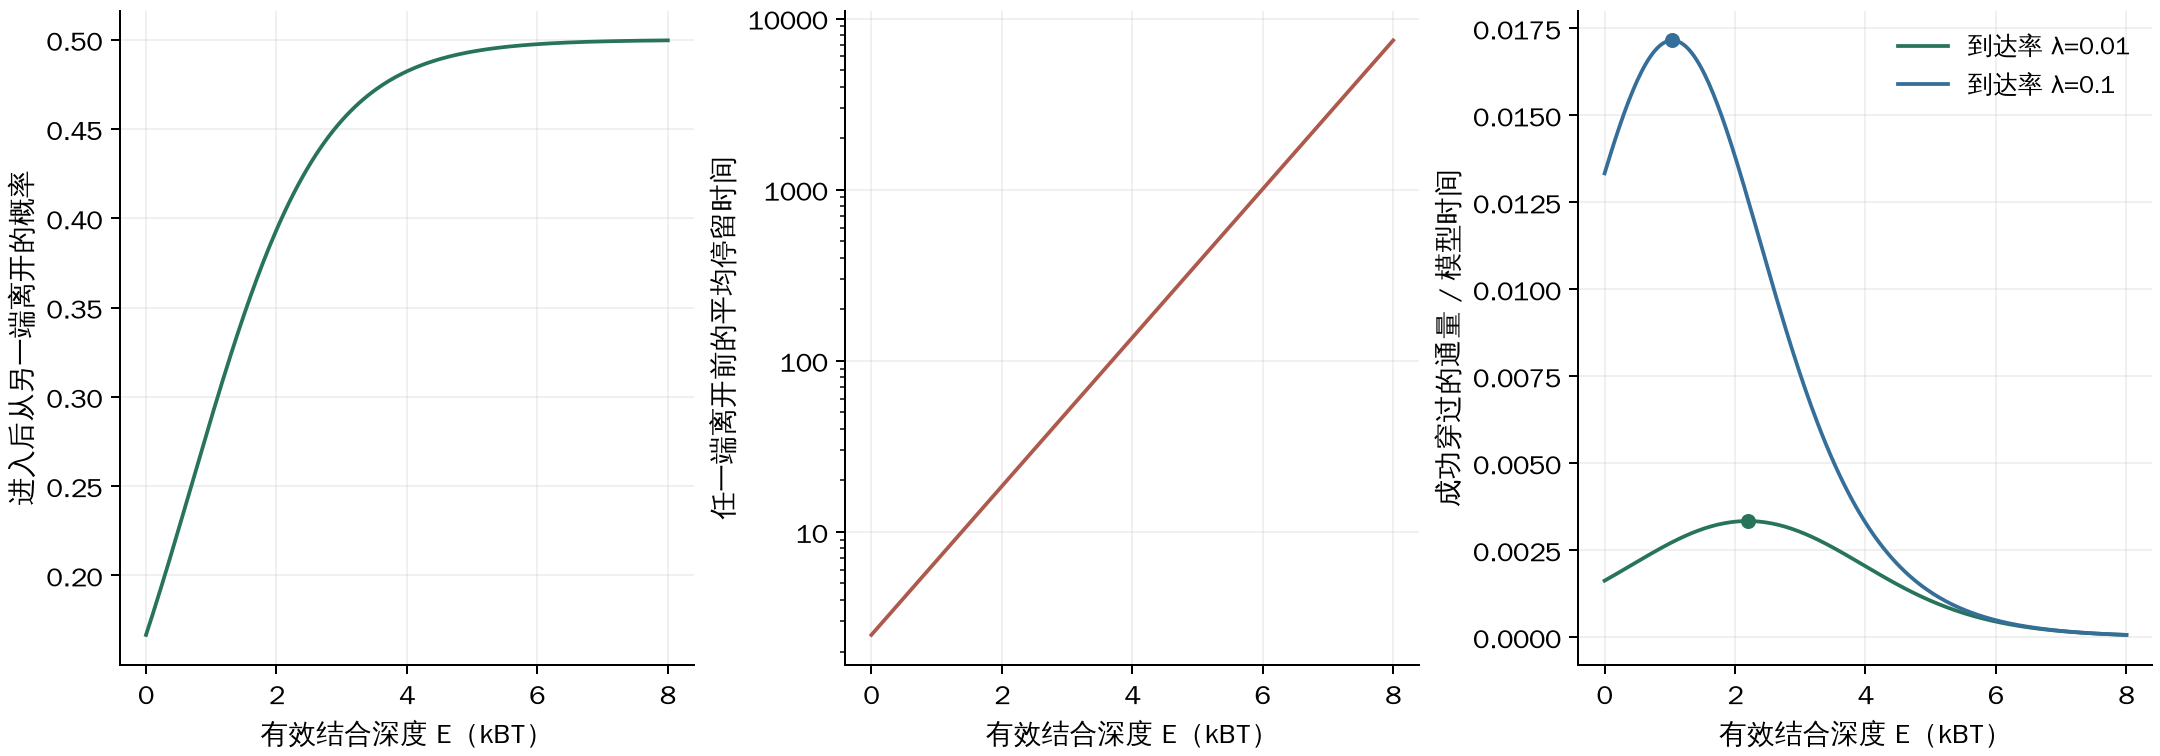
这个小模型解释的是一种可能的权衡,而不是“黏住的一律堵门”。它故意删掉了真实核孔中非常重要的多分子协作。
2025年的氨基酸分辨率粗粒化模拟提供了另一种可能:受体增多时,一些受体暂时停在较黏的FG区域,可能遮住强结合位点,使其他受体沿邻近界面移动。运动较慢和较快不必对应永远固定的两类分子,同一受体也可以交替处于两种状态。模拟中的运输伴随局部接触数减少和暂时空隙出现。5
因此,真实系统中“占用更多”可能既有拥挤代价,也有屏障重塑与减少过强接触的收益,要用干预和轨迹来判断谁更重要。该模拟每个氨基酸一个粒子、溶剂隐含处理,并不是全原子实验录像;模拟时间经过扩散校准缩放。它还通过把到达核侧的Kap重新放回胞质侧来模拟持续运输条件,方向性没有从一个封闭、无驱动的孔里自动产生。
本库计算用SciPy求解转移矩阵,并把180组参数的数值结果与上述解析式、包含空通道状态的稳态通量交叉核对。在两侧改为相同到达率后,净通量为零。代码保存在库内research/calculations/nuclear_pore_transport.py,另附荧光数据和计算记录。这些检验说明这个小模型算得自洽,不证明真实核孔只有这套机制。
来回都能走,为什么还能在核内积累
方向来自运输循环两端不同的化学条件。对典型的蛋白进口途径,可以按下面的过程理解:2
- 胞质侧的条件允许进口受体装载货物。
- 复合物与FG区域动态接触,在孔中扩散;中途可以前进,也可以后退。
- 核内较高的RanGTP参与改变受体的结合状态,使进口货物释放。
- 受体与Ran相关因子回收;胞质侧的GTP水解及后续循环维持核内外不同的装卸条件。
对出口受体,RanGTP的作用不同:它通常帮助在核内形成出口复合物,之后在胞质侧经相关反应释放货物。所以“RanGTP让东西进核”也过于简单。它改变的是具体受体在哪一侧装得上、在哪一侧卸得下。
这种两侧差异也有具体来源:核内与染色质相关的RCC1帮助Ran释放GDP、结合新的GTP;胞质侧的RanGAP及相关因子促进GTP水解,使Ran更多转为GDP结合态。不同位置的反应因子,加上核苷酸供应和分子的回收,持续维持两侧不同的Ran状态。把货物留在目标一侧,依赖的是这套循环的配合,而不是核孔识别了细胞“想要”的方向。2
1999年有一项很直观的实验:研究者在通透化细胞的胞质侧加入不能有效水解GTP的RanQ69L-GTP和出口受体CRM1,原本带出口信号的BSA货物反而能够进入核内;单独加入其中一个因子不能得到同样结果。2
这说明核孔没有一道不可逆的“出口专用门”。但在这套反向运输条件下,货物只是接近核内外平衡,没有在核内积累到高于外面的水平,而且还能再次输出。论文恰好把“能够反方向跨过去”和“持续逆浓度差积累”分开了。
再用一个四状态模型把差别算清楚。货物可能游离在胞质$C$、在胞质与受体结合$B_C$、在核内与受体结合$B_N$,或游离在核内$N$。模型有如下循环:
最后一条连接是被动泄漏;本例两区室体积相同。两个结合态之间双向穿孔速率相同。核侧与胞质侧装卸的差别,通过有效反应速率表达,受体与Ran相关物质被看作由外部维持的背景。
把绕循环一周的正向速率乘积除以反向乘积,再取自然对数,记为$A$。对于这里的速率设定,$A=0$表示没有循环驱动;$A\ne0$表示装卸背景维持了一个方向偏置。它不是凭空加的一支分子马达,而是把具体化学循环省略之后留下的驱动力参数。
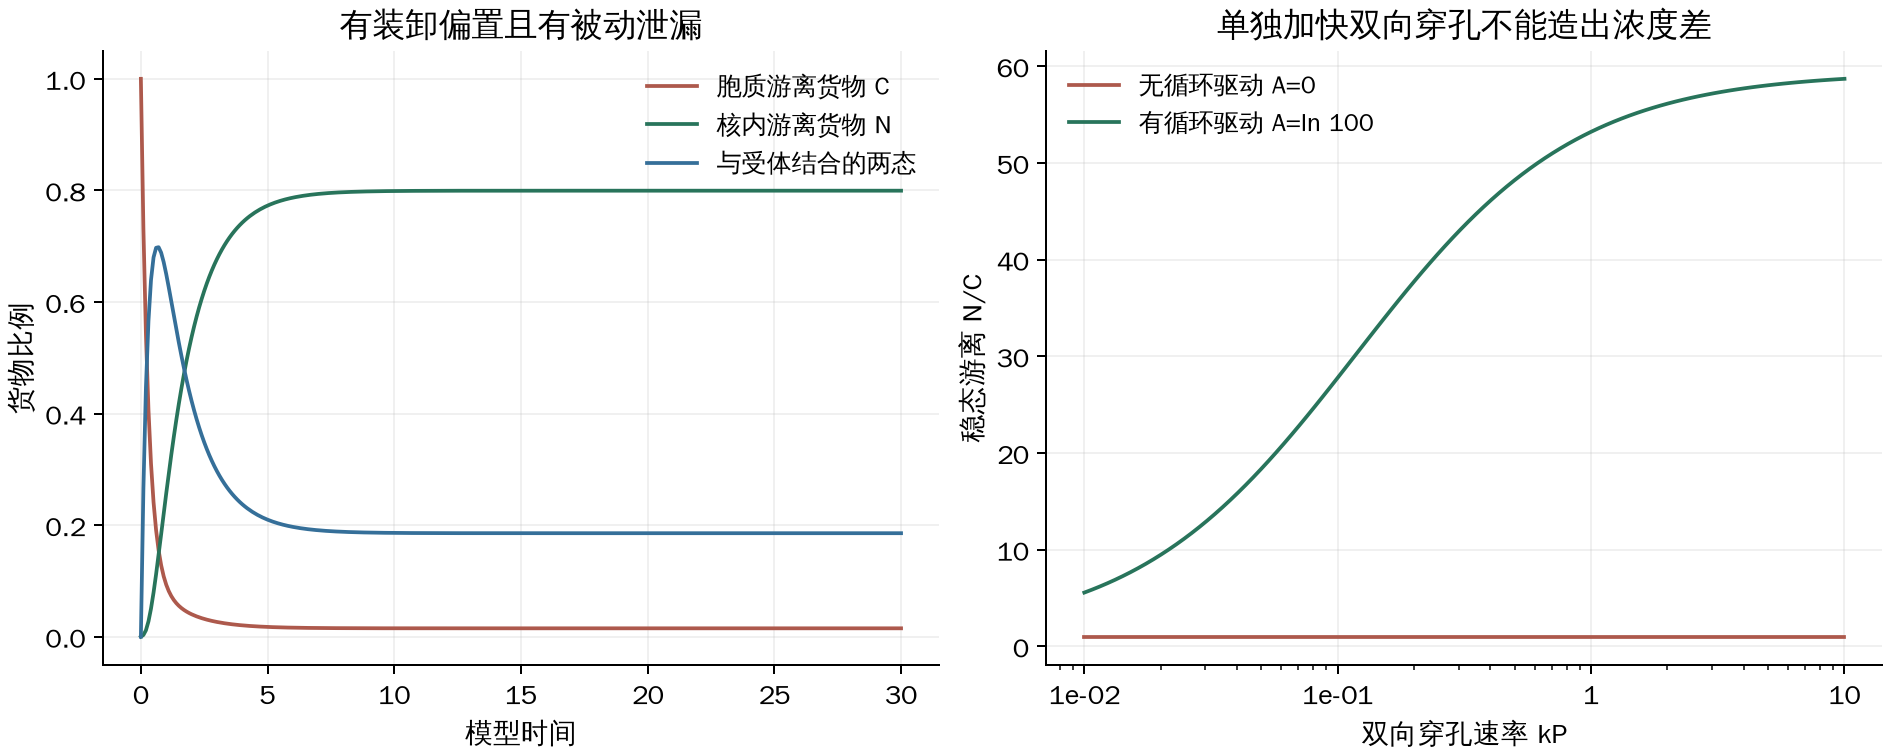
计算中,$A=0$时,哪怕把双向穿孔速率增加1000倍,稳态游离$N/C$仍为1,每对反应的正反流量也分别相等,这称为详细平衡。取$A=\ln100$、穿孔速率1、泄漏速率0.02时,稳态游离$N/C$约为53.2,同时有持续的循环流;把驱动方向反过来,富集方向也反过来。
这不是对GTP消耗量的定量预测。它没有显式模拟每个Ran分子、受体的有限库存或完整反应化学计量,只是展示:相同的双向通道,配上不同装卸条件,就可以产生不同稳态分配。 实际细胞里,货物被结合、隔离或加工,也会改变总量与游离浓度之间的关系。不能只见到一张核内荧光更亮的照片,就把所有亮度差都换算成泵送功。
水凝胶和仿生孔,各自回答哪一层
某些FG蛋白能在体外形成水凝胶,并让运输受体进入、排斥BSA等惰性蛋白。这是有意义的选择性证据,2025年的原子力研究自身也观察到了这一点。3
但该研究中,Nup100和Nup116水凝胶的表面形态、孔洞和运动方式,与分离原生核孔里的动态结构明显不同。无支架的三维组装体,可以重现“不同分子进入程度不同”,却未必重现锚定几何、局部路径、快速重排和细胞内装卸循环。
研究者还把32条Nsp1FG链固定在DNA折纸构成的约60纳米宽通道内,再加入Kap95,得到类似的动态中央结构。它提供的帮助是把有限孔几何、锚定FG链与受体放在一个可控制的体系中比较,而不是因此就重建了一个能完成全部核质运输功能的细胞器。
这些体系不需要互相排斥。它们可以分别用于研究分配、动态组织和几何作用。真正需要检验的是:一个模型究竟重现了哪个可观测量,又在哪些条件改变后失效。把核孔叫作凝聚体,或者叫作聚合物刷,都不能代替这一步。
2026年的新边界:孔有没有装好,也会改变运输
2026年8月发表的一项研究,把问题推进到细胞分裂之后的核孔装配。研究者急性降低Nup62,结合活细胞时间定位和电子断层成像,发现新生核孔没有正常扩张:在所比较的分裂后时点,膜孔颈部直径约55纳米,而对照约69纳米。Nup62的其他复合物伙伴和后续招募成分也受到影响。7
另一个干预是加入低剂量1,6-己二醇,扰动相关疏水相互作用。若在核孔扩张的时间窗内加入,孔不能达到正常宽度;在扩张完成以后加入,则不再产生相同的孔径效应。研究还检查了Nup62的招募,结果不支持把扩张缺陷简单归为Nup62完全没到位。
这些时间对照支持FG相关相互作用参与装配阶段的扩张。至于是否通过某个具体凝聚结构像楔子一样撑开膜孔,则还包含粗粒化模拟和力学解释;作者也没有把装配现场的凝聚态结构宣称为已经直接看清。
这与成熟核孔的选择性问题有关,却不能混成同一种实验。去掉一类蛋白以后,运输下降可能来自屏障相互作用变化,也可能来自孔径、组分和成熟程度一起变化。先问“研究的是哪个阶段、实际改变了什么”,才能把因果关系分开。
现在能解释到哪里
比较稳的认识是:核孔内的拥挤与动态材料会限制被动进入,合适的受体接触能改变进入代价;受体又参与屏障的组织。单个货物在孔内的运动可以有停顿和返回,选择性并不要求每条轨迹都是高速直达。核内外装卸与回收循环则把双向运动接成有方向的运输过程。1 2 3 4
仍然需要分条件研究的是:不同物种和生理状态下,FG链与受体在孔内怎样精确分布;各类货物使用哪些路径;受体占用何时增强筛选、何时导致拥挤;以及成熟核孔怎样在保持屏障的同时改变孔径和组成。酵母高速成像、人细胞单分子轨迹和分子模拟可以互相约束,但它们还不是对同一套活细胞条件的完整同步测量。
下一步最能增加理解的实验,也应分别针对具体环节:
| 改变的条件 | 同时需要测什么 | 能帮助区分什么 |
|---|---|---|
| 在尽量保留骨架和孔径时改变受体浓度 | 惰性通透性、受体占用、进入与成功退出轨迹 | 单纯拥挤与受体参与屏障重塑 |
| 改变FG相互作用但尽量保留链长和锚点 | 进入概率、停留分布、同浓度差通量 | 进入收益与过强滞留,不能只看核质比 |
| 改变Ran相关装卸条件 | 两侧游离与结合货物、循环流和泄漏 | 通道选择性与持续富集的驱动来源 |
| 同样干预分别施于装配期和成熟期 | 孔径、组分、孔数及运输 | 孔未成熟与既有屏障性质变化 |
这些不是要求每篇论文包办所有测量,而是说明不同结论分别需要什么证据。核孔的深刻之处,正在于结构、随机运动和化学循环分工协作:一个持续变化的界面,既能限制交换,又能有选择地促进交换;长期的方向,则由整个循环来维持。