过去留下的组织,会成为今天仍在起作用的环境
前一篇区分了损伤持续、细胞异常、局部反馈和基质清除缓慢。本篇进一步追问:如果过去留下的基质本身还在影响细胞,那么把某个短时信号压低,是否足够?
细胞外基质不是一堆被动堆积的胶原。它提供支撑、接触位置、受力通路,也会影响某些信号的储存和活化。纤维化改变了这些条件,细胞所接收到的环境因此不再是原来的环境。1
“记忆”在这里至少有两种含义:一种是细胞离开原环境后,仍保留过去形成的反应;另一种是过去已经改造了外部环境,新来的细胞继续受到它影响。两者可以相互维持,但不能靠一张硬度图把它们合并成同一个机制。
肺变硬,不能只用“胶原更多”来概括
材料抵抗变形的能力,与材料数量、组成、分子连接和排列都有关系。同样多的线,散放、编织和彼此交联,会形成不同的受力结构。
2018年的一项研究把人类IPF组织中的胶原量、交联和力学测量放在一起比较。研究在所取样本中发现,IPF组织更硬,成熟胶原交联增加;而按干重归一的胶原浓度没有显示同样的组间差别。它提示,结构和交联可以提供胶原浓度之外的信息。2
但“按干重归一的浓度没有明显差别”,并不表示整只病肺没有新增胶原,更不能解释为所有患者的胶原量都不重要。样本尺度、归一化分母和病变位置必须保留。
原研究还在细胞生成的三维基质中改变交联过程,观察到胶原含量读数未明显减少时,材料硬度仍可下降。这为交联参与力学改变提供了干预证据。不过干预伴随基质形成过程进行,并没有证明它直接剪断了一块既有成熟瘢痕中的全部交联。2
同样需要分开几种“硬”:
| 测量 | 更接近什么 |
|---|---|
| 探针在微小位置压入组织 | 该位置、该制备和分析条件下的局部力学响应 |
| 拉伸或压缩一块组织 | 给定方向、速度和边界条件下的整体材料响应 |
| 肺的压力—容量关系 | 组织结构、肺泡开放、表面张力等共同决定的器官响应 |
这些测量互相有关,却不能直接互换。去细胞组织的局部压入模量,尤其不能当成一个完整活肺的功能评分。
一个几何例子:相同材料比例,整体响应可以不同
设有两种线性弹性材料,模量分别为2和20个自选单位,各占一半。将两种材料顺次连接,让拉力依次通过它们,等效模量约为3.64;让两种材料平行承载、一起伸长,等效模量则为11。
一般地,若较硬材料占比为$f$:
在顺次承载的50%/50%例子中,整体拉长1%,较软部分会拉长约1.82%,较硬部分只拉长约0.18%。两部分的平均仍是1%。
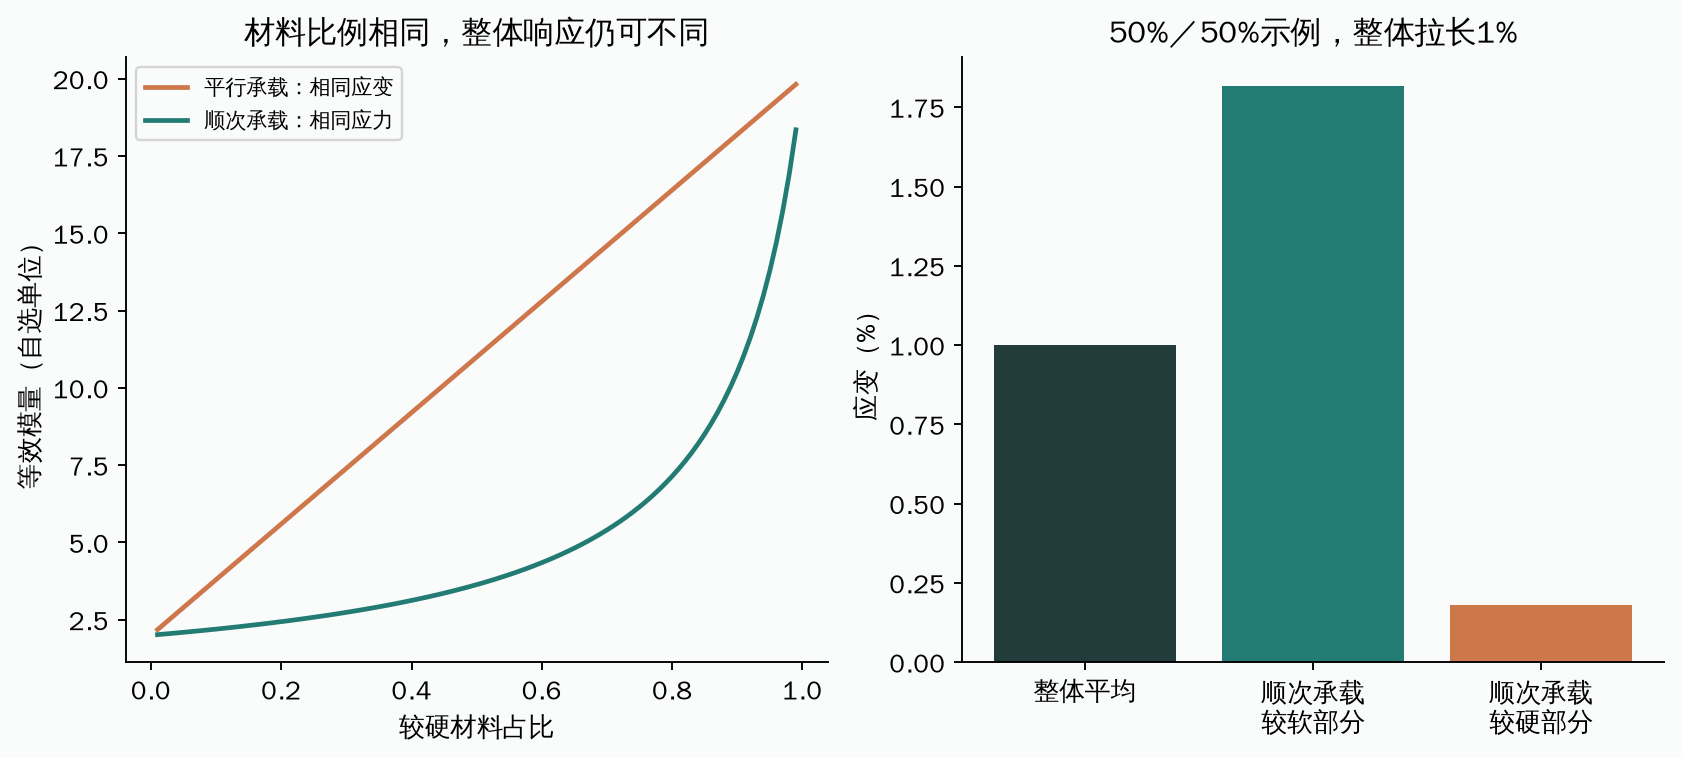
这个例子说明,知道硬材料占多少,还不够知道局部细胞承受多少变形。真实肺比它复杂得多,还存在方向性、非线性、黏弹性、表面张力和主动收缩。它不能直接证明病肺某处的应力一定被放大,只展示为什么空间结构与边界条件需要单独测量。
细胞怎样感受到环境改变
细胞通过与基质相连的黏附结构施加和感受力。环境越难被拉动,同样的细胞收缩尝试就可能产生不同的张力和骨架反应;这些变化又能影响核内调节与基质生产。部分潜在形式的TGF-β,其活化也与细胞—基质间的力学联系有关。1
机械敏感离子通道是另一类入口。2025年的Piezo2研究在原代人肺成纤维细胞中,通过药理和基因表达干预,观察到部分硬环境诱导的肌成纤维细胞表型减弱。6
这里同样没有一个统一的“恢复按钮”:某些标志改善,另一些变化较小;药理工具也不是只作用于一个通道。原研究的基因干预对照增加了支持,但没有证明整套病肺功能都由Piezo2决定。
因此,细胞的反应能力确实可以成为一个研究对象,不过“接收机械信息”“维持收缩表型”和“合成或清除基质”仍是不同环节。
2026年的反例:病变中增加的基质成分,不一定应该被减少
Versican是一种细胞外基质蛋白聚糖。2026年的研究发现,它在纤维化相关的人类和小鼠资料中增多;但在小鼠中减少其表达,损伤后的纤维化反而更严重,消退也更慢。5
所以,“病变时升高”既可能意味着参与致病,也可能包含补偿、保护或阶段依赖的作用。需要干预和对照来判断。
本库从该研究的来源表重新整理了695个局部力学测点。图中每条线表示一组去细胞肺组织测点的累计分布,曲线向右意味着相应读数更多地落在较硬区域。
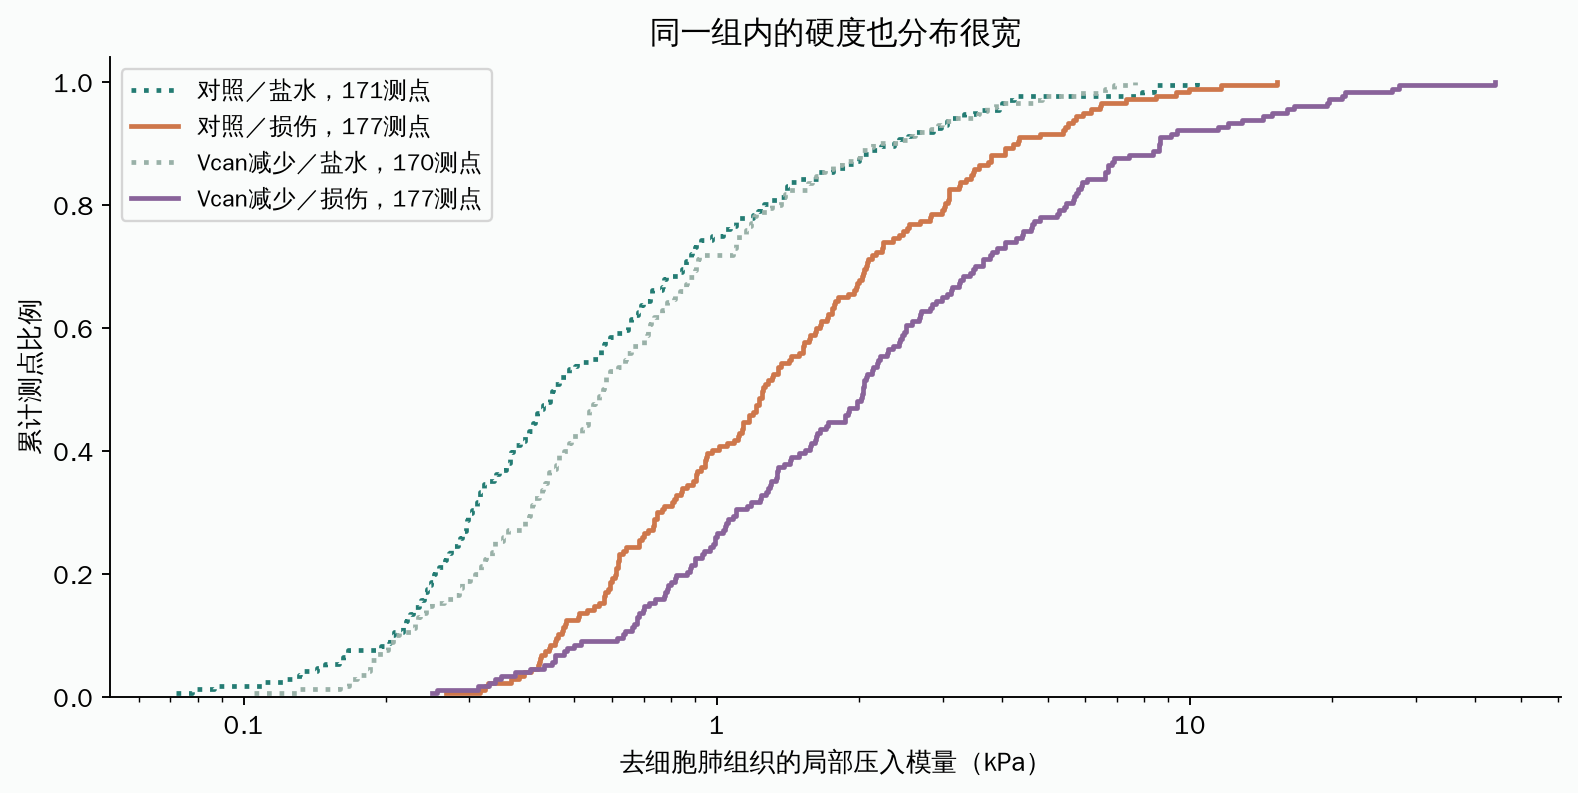
在损伤组中,正常基因型测点的中位数约1.25 kPa,Versican减少组约2.04 kPa。它们是汇集测点的中位数,不能称为“平均每只小鼠的整肺硬度”,更不能按比值推算患者肺功能损失。
原研究还使用成年后诱导改变的模型,减少发育差异对解释的影响。但全身遗传改变仍可能影响多个细胞群体。要更直接判断外部基质是否参与,还需要把细胞和它们留下的环境分开。
换掉细胞,只留下它们制造的环境,会发生什么
同一研究先让不同基因型的成纤维细胞生成基质,再去掉细胞,将留下的基质作为正常基因型成纤维细胞的培养环境。
结果是,接触不同来源基质的正常细胞出现不同表达和侵入相关表现。这支持过去形成的环境能够继续影响后来进入的细胞,效应并不只存在于原先那批基因改变的细胞内部。5
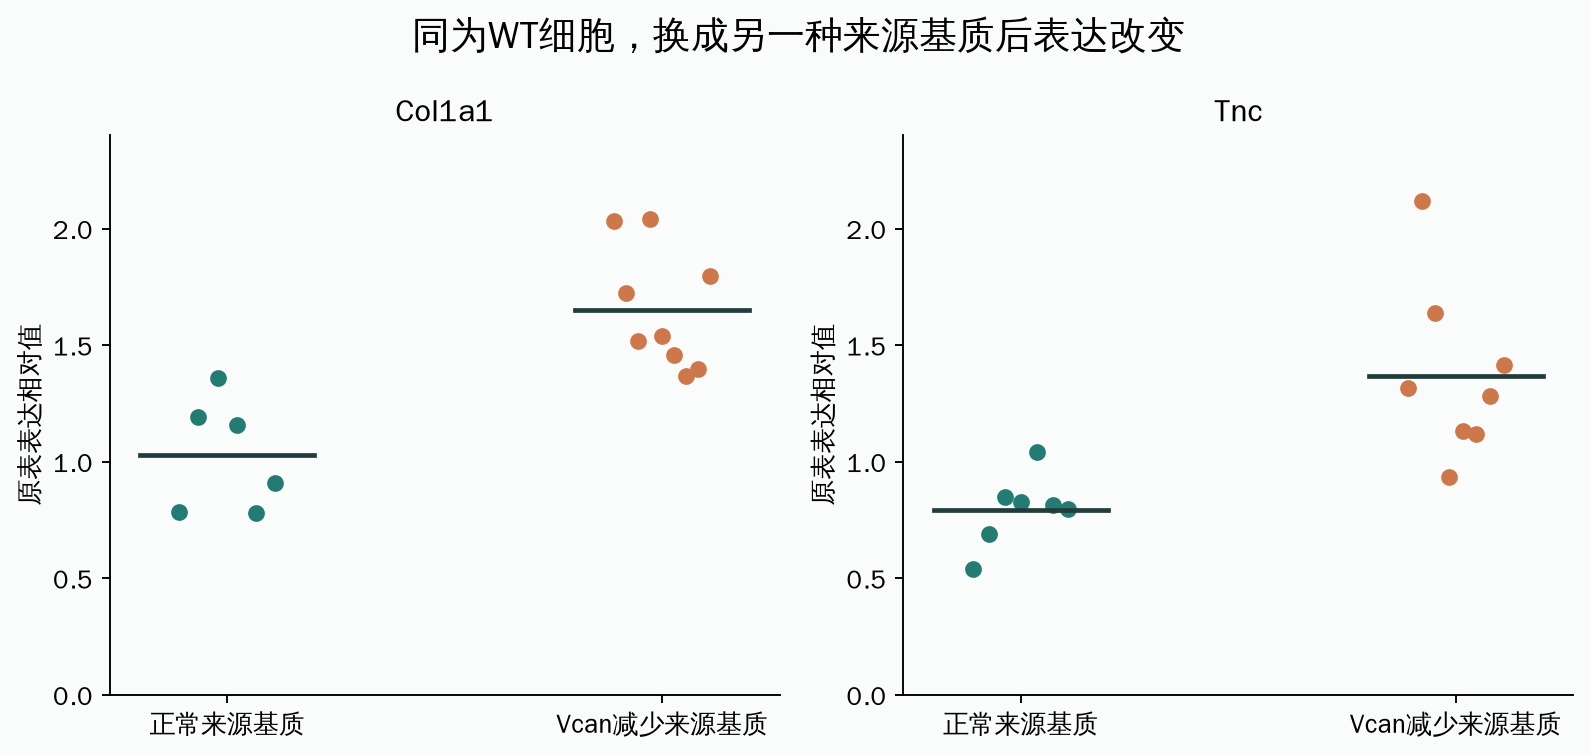
按公开数值重新计算,接触Versican减少来源基质后,Col1a1和Tnc的组均值分别约为另一组的1.60和1.72倍。
但这项转移没有只改变Versican一项。基质中的胶原、Tenascin-C、组织结构和其他组分也已经变化,因此它更直接支持重塑后的基质环境可以传递影响,不能仅凭此图把全部效应归给一种蛋白或一个硬度值。
这也是“环境记忆”的具体含义:无需假定新来的细胞保存了旧细胞的内部记录,过去的细胞活动已经把环境改成了另一种输入。
把细胞搬回软环境,为什么有时还会恢复原来的高活动
2012年的大鼠肺成纤维细胞研究,让细胞在较软或较硬的二维硅胶表面培养,再交换培养条件。硬环境经历之后的细胞,转入软环境后仍可在两周观察窗口内保持较高的部分促纤维化表现。3
一个值得注意的细节是,短期与较长期读出并不相同。交换环境后早期,部分αSMA应力纤维表现下降,随后又恢复。只在早期测一次,可能得出与稍后不同的判断。
这支持历史依赖,却还不能直接证明永久的细胞内记忆。原作者也讨论了几种可能:细胞继续在软底板上制造局部基质;细胞密度和细胞间接触改变受力条件;内部信号或表观调节保留历史。
因此,底板仍然软,不保证细胞实际接触到的局部环境始终没有改变。要把记忆明确定位在细胞内部,需要进一步排除细胞自己重建的环境和群体组成变化。
论文用了较强的永久性措辞,本篇只保留其观察窗口内的保持证据。短时间回不去、长时间回不去和原则上不可逆,是不同主张。
较新的研究又显示,一部分表型能够改变
2024年在线、2025年卷期发表的Novak等人研究,将小鼠肺成纤维细胞在二维培养表面与三维胶原环境之间切换。收缩表现和一部分表达状态更接近最近的培养环境,说明它们具有可塑性。4
但二维与三维切换,同时改变了材料、空间维度、接触方式及其他微环境条件。不能把它解释成“只降低硬度,就完整擦除了记忆”,也不能用它直接推翻2012年不同设计中的保持结果。
更重要的是,各项表型并不同步。收缩或αSMA相关读数降低时,一些胶原、细胞因子或基质更新相关基因并没有沿同一方向变化。群体中不同细胞亚类的比例也受到培养条件影响。
所以,部分功能变得可逆,不等于所有表达都复原;整体表达改变,也不一定全由同一批细胞逐个重置造成。细胞选择、增殖或丢失同样可能贡献结果。
这项研究还提示测量过程本身会改变对象:有些培养历史造成的牵引力差异,在细胞刚转入测量用凝胶时较明显,继续待在测量环境中后便减弱。读数不只是过去的痕迹,也包含细胞对当前测量环境的适应。4
细胞还可以改变胶原怎样装配
硬度变化不一定只来自细胞多生产了多少胶原。细胞分泌的酶和其他因子,也能改变胶原在外部怎样形成网络。
2025年的一项研究将肺泡上皮的YAP-TEAD相关活动,与其分泌LOX以及外部胶原装配联系起来。它同时比较细胞信号、分泌产物和材料读出,说明上皮对基质的影响可以超出直接生产纤维状胶原。7
其中一个实验把小鼠来源的肺灌洗液加入无细胞的胶原装配体系,比较原样与加入LOX家族抑制工具后的结果。本库重新整理了60个采样序号上的均值曲线,以及10只小鼠来源样本的配对最大读数。
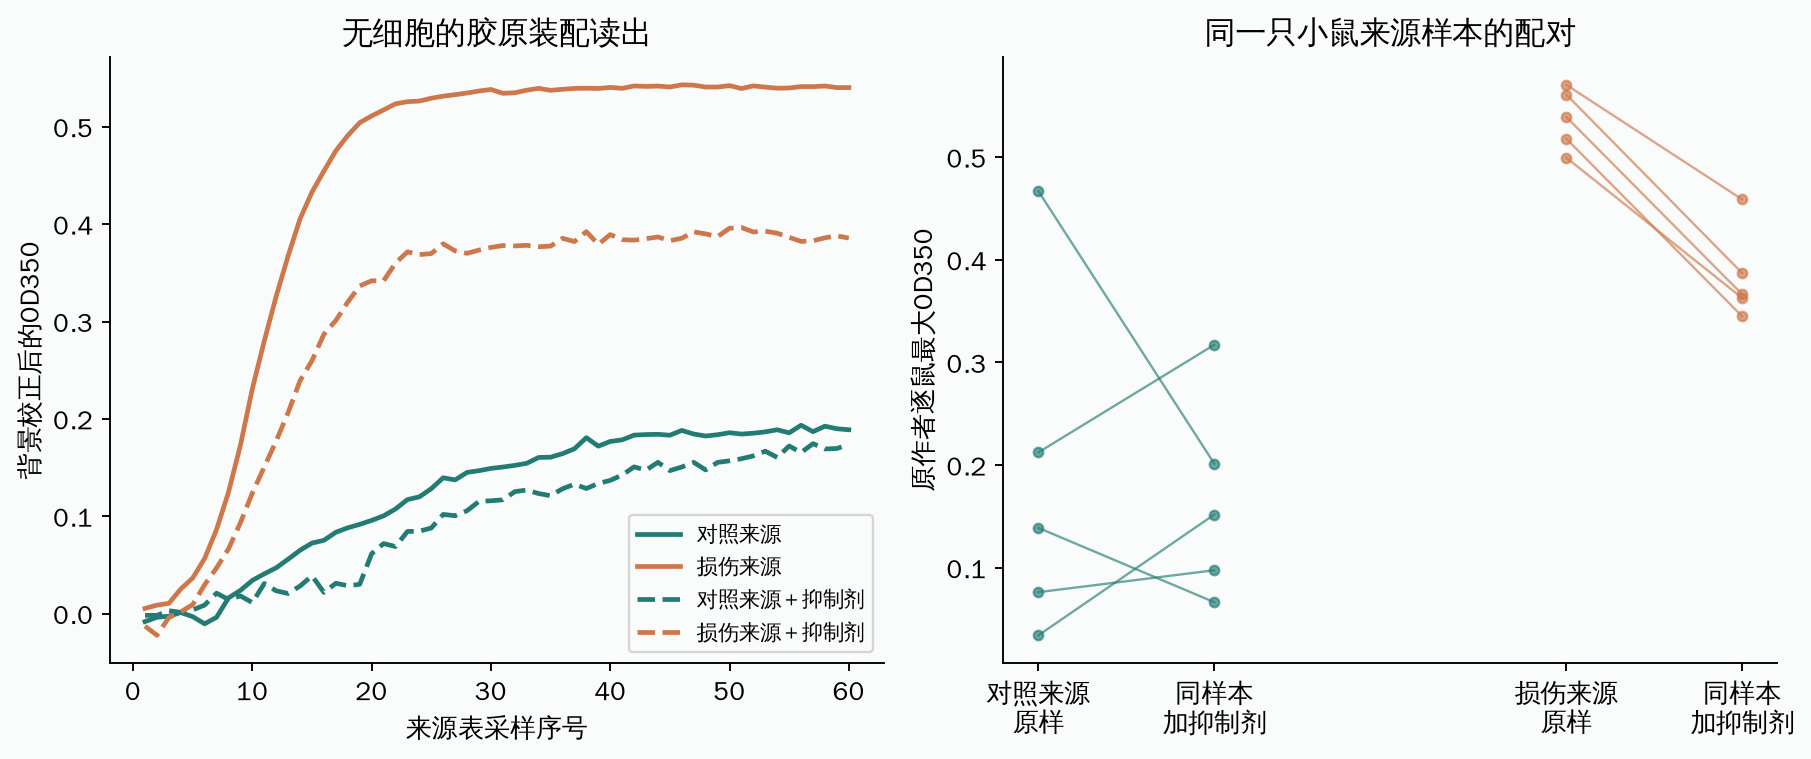
损伤来源组的五对最大读数均下降,平均由约0.538降至0.384;正常来源组的变化方向较不一致。
这里测的是光学浊度,并非杨氏模量。它反映装配过程造成的光学变化,需要与结构成像、交联相关分析及力学测量相互补充,不能直接说“胶原软化了多少”。抑制工具也作用于LOX家族,不能只凭这张图指定某一细胞类型或某一个家族成员承担全部作用。
让新材料形成得不同,与拆掉旧瘢痕不同
形成新的交联需要相应的酶促过程,抑制这些过程可以改变后来形成的材料。但减少新交联,不等于已经剪断过去存在的成熟交联;改变最终累积量,也不自动证明旧基质的净清除已经加快。
同样,蛋白降解能力增加并不保证形成正常肺泡。必须考虑哪些材料被去掉、哪些支撑和基底膜需要保留,以及上皮和血管能否在新的空间里重建功能。1
2025年的YAP-TEAD/LOX研究包含人肺切片证据,但不同部分回答的问题不同:来自正常供体、由外部条件诱导的早期反应,与来自终末期IPF组织的切片,不能混为同一种模型。后者只有两个供体的表达结果,尚未证明成熟患者瘢痕被整体清除或气体交换恢复。7
临床上也有明确的限制性证据:一项544人的随机试验研究针对LOXL2的simtuzumab,未改善IPF患者的无进展生存,按预设无效标准终止。8
这一结果限制了该具体药物和方案的疗效判断。它既不能被细胞实验中的漂亮结果抹去,也不能单独证明所有基质力学机制都不重要。药物有没有在合适位置和阶段改变目标过程,与该过程是否参与病变,是不同问题;本篇没有足够数据为这次失败指定唯一原因。
对“能否消退”的有条件回答
已有证据支持,过去形成的基质能够继续影响细胞;细胞的一部分历史相关表型也可以保持或改变。保持程度取决于观察指标、环境、时间和群体组成。
本篇的整合判断是,研究恢复应同时追踪三层:细胞的反应是否退出;环境是否停止持续诱导它们;组织是否真的重新建立正常结构。只在其中一层得到改善,不能自动代表另外两层已经完成。
目前尚未确定,真实IPF病灶中细胞内记忆与环境持续刺激分别占多少,哪些既有结构能够被安全更新,以及这种更新需要多久。这里也没有一个适用于所有病灶的“足够软”阈值。
下一篇转向炎症时序时,这个分界会继续有用:即使炎症信号已经改变,细胞面对的基质环境可能仍然持续存在;而需要退出的反应,也可能与下一阶段需要启动的修复功能交叠。
可回查:计算结果、AFM测点、基质转移表达值、胶原装配配对值、均值曲线和几何例子。本库未重做原始显微分割、AFM拟合、全部组学或临床试验。