约束与权衡15 分钟

脑内液体怎样运动,又在什么条件下真正带走物质?

脑内液体可随心搏、呼吸和慢血管运动发生位移,溶质则同时通过扩散、交换和多个出口迁移。运动变强、示踪物进入更多、局部浓度降低,都不能单独等同于净清除改善。本篇重算人体MRI与小鼠公开数据,并用守恒区室、扩散移除和实际MRI读出模型,解释这些量怎样连接;2026年静脉—淋巴研究进一步显示,出口、压力和组织运输可以不同步变化。

看到液体动了,还要知道什么东西去了哪里

脑内液体可以被心搏、呼吸和血管慢舒缩推动,溶质则同时通过扩散与流动迁移。要真正带走某种物质,还需要它通过出口离开我们关心的区域。

但“液体晃得更明显”“更多示踪物进入组织”“一个位置的荧光变弱”“颅内示踪物总量下降”,不是同一个观察。

如果把它们都叫作“清除”,不同实验很容易显得互相矛盾,也很容易被拼成一条比证据更完整的机制链。本篇把这条链拆开:驱动力怎样产生运动,运动怎样影响溶质交换,以及溶质经过哪个边界才算真正离开。

研究对象主要是脑脊液、血管周围空间和组织间液之间的运输。脑组织中的物质还可能通过局部分解或血管界面的转运减少;这些途径也不能被同一个“液体冲洗”概念全部代替。12

脑内有哪些路,什么在推动液体

脑脊液存在于脑室、脑表面的蛛网膜下腔,以及一些血管周围的空间。脑实质中,细胞之间还有复杂而狭窄的细胞外空间,组织间液与溶质在其中分布。脑膜淋巴、沿神经的通路和其他血管外或血管界面的出口,又把这些区域接向更远处。1

血管周围空间与细胞间隙的几何尺度、阻力和可通行分子不同。不能因为某段血管旁看到快速运输,就认定整个脑实质都被同样快的一股水流贯穿。 “类淋巴”框架提出了沿血管周围输入、组织交换与输出的联系,但具体入口、组织内对流贡献及主要出路仍有争论。2

液体的整体移动,需要压力差或移动边界提供驱动。心搏让血管和颅内血量产生周期变化,呼吸影响静脉压力与颅内外压力关系,较慢的血管舒缩也会改变血管旁空间。在短时间的体积约束下,一部分空间扩大,可能迫使其他液体发生补偿性位移。

这里要分清两种液体:血管腔内的血,与血管外周围的脑脊液。动脉收缩会减少局部血容量,同时可能扩大血管外的空间;它怎样改变外部液体通量,还取决于外边界、压力和连通关系,不能直接套一个血管腔内流阻公式就得到答案。

更慢的时间尺度上,脑脊液的生成和流出也提供持续的收支背景。水通道AQP4会影响水交换,但不能把大分子的路线直接画成穿过水通道;溶质仍须沿它能够通过的细胞外空间或跨界面途径追踪。12

溶质另外还有扩散。即使平均水流为零,只要存在浓度差,分子仍可以净迁移。一个常用的比较量是

$$ \mathrm{Pe}=\frac{UL}{D}, $$

其中 $U$ 是所讨论的流速尺度,$L$ 是相关浓度变化的长度尺度,$D$ 是该分子的有效扩散系数。它帮助比较对流与扩散,但不提供一个“全脑通用”的答案;不同空间、分子和时间尺度可以有不同机制。1

先写收支:浓度下降不等于已经排出

对指定区域,设目标物质总量为 $M$,可分布体积为 $V$,平均浓度为 $C=M/V$。最基本的收支是

$$ \frac{dM}{dt}=P-R+J_{\rm in}-J_{\rm out}, $$

其中 $P$ 是产生,$R$ 是降解或转化,$J_{\rm in}$、$J_{\rm out}$ 是跨边界进入和离开的量。若讨论注入的示踪物,通常不需要生物合成项,但仍要考虑测量是否受光漂白、标记稳定性和校准影响。

这个式子带来几个直接区别:

  • 一个局部区域变淡,可能是物质扩散到了邻区,尚未离开整个脑。
  • 浓度降低,也可能与分布体积增大有关,不一定对应同等比例的存量下降。
  • 从脑脊液向组织进入更多示踪物,测的是输入及分布,尚未单独确定内生物质的输出。
  • 即便测到存量减少,也还要区分离开了脑实质、离开颅内空间,还是发生了原地转化。

所以,“清除了多少”首先需要一个明确的边界和目标分子。

往复运动没有净水量,也可以有净溶质交换

本库建立了两个相连区室的守恒模型:一个代表局部组织,另一个代表周围液体。两者的体积周期性改变,液体在它们之间来回移动;每个完整周期,从组织区室流向液体区室的净水体积为零。12

但是,出去时和回来时,液体的溶质浓度可以不同。总的溶质通量取决于流量与浓度的乘积,不能只看平均流量。

在模型中,若周围液体还可以向外更新,并由不含示踪物的液体补入,往复交换就有机会不断把组织中的物质送到外部。若没有这个外排出口,局部浓度可以明显降低,但两区室合计的物质量不变。
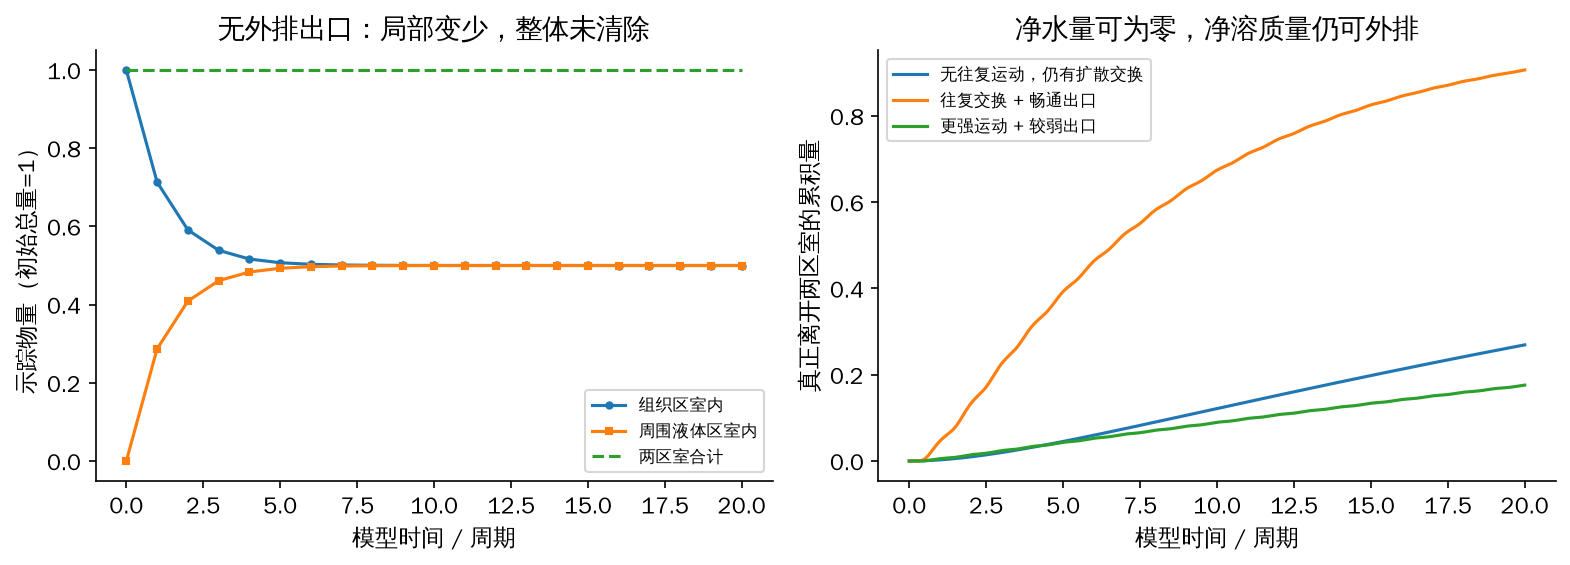
本库无量纲区室模型。左:没有外部出口时,示踪物从组织区室重新分布到周围液体,合计总量仍为1。右:同样的内部往复运动配合外部更新,可以产生净溶质外排;运动更强而出口同时更弱时,外排又可以较少。净水量为零专指两个内部区室间的每周期通量,外部仍有等量出水和补水。

在这里选定的20个模型周期内,没有往复运动、只靠较慢扩散交换时,约26.9%的示踪物离开两区室;加入往复运动且保留同样出口时,约90.7%离开。若同时把出口大幅减弱,即使运动幅度更大,也只外排约17.6%。

这些是说明机制的自选参数,不是人体清除率,也不用于选择刺激方式。模型假定每个区室内部可以充分混合;如果一团液体完全可逆地原路推回,既没有扩散混合,也没有外部更新,就不能据此得到相同的外排效果。

这也说明两个极端推论都过快:看不到平均净流,不等于没有溶质运输;看到明显往复运动,也不等于出口和净清除一定变好。

人体MRI测到了什么:运动方向的轴,不是净流向的箭头

Hirschler等2025年提出CSF-STREAM,用MRI尽量抑制血液和脑组织信号,突出脑脊液,并通过运动敏感编码测量信号变化。它能把范围下探到一些较小的血管周围空间。3

作者把结果称为 mobility,运动指标,而不直接叫净流量。它采用类似表观扩散系数的计算方式,单位是mm²/s;这个单位本身也不意味着测得了纯分子扩散。

该序列的一个关键步骤,是把流动造成的相位变化转成信号强度变化。按补充材料的简化单方向均匀流模型,信号比可写为

$$ \frac{S}{S_0}=\cos\left(\frac{\pi v}{v_{\rm enc}}\right), \qquad m=-\frac{1}{b}\ln\frac{S}{S_0}. $$

这里 $m$ 是该简化读出中的运动指标,$b$ 和 $v_{\rm enc}$ 描述编码条件。这个余弦关系意味着,正向和反向的同速运动可以给出一样的信号。4

本库按实际补充公式计算了几种流型。均匀向前、均匀向后、对半反向,以及适当速度的抛物形流动,都可以得到同一个示意运动读数:
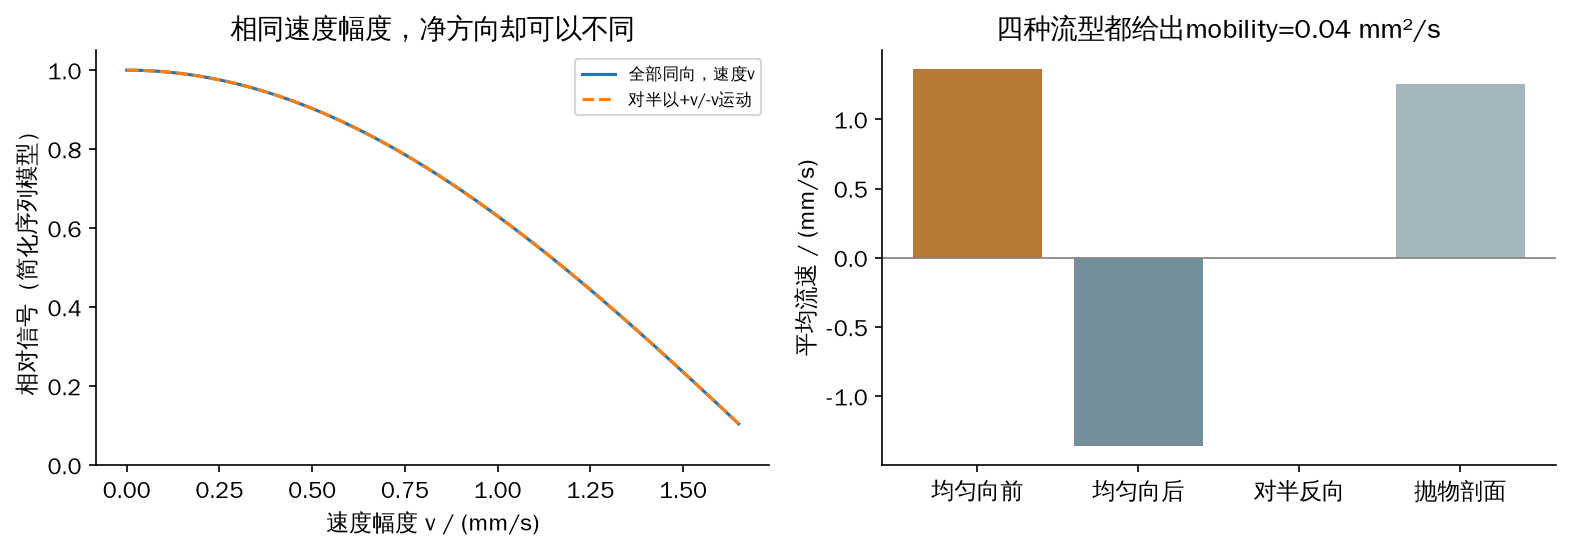
按CSF-STREAM补充材料的单方向简化读出模型计算。左:均匀同向运动与对半正反运动的信号曲线重合。右:几种不同平均速度的流型,都能产生同样的示意mobility值0.04 mm²/s。这里只比较所示的正信号分支和理想流型,不包含完整张量重建、部分体积效应或人体流速拟合。

所以,主方向图可以告诉我们运动主要沿哪条轴,不能单凭它判定是沿这条轴向外、向内,还是往复。原作者也明确说明,该序列不能区分净流与混合式往复运动。3

人体数据:不同位置的驱动力不同

本库重新汇总了公开的每位参与者数据。在11人的区域比较中,MCA周围蛛网膜下腔的平均运动指标约0.0406 mm²/s,基底节与穿支血管周围空间分别约0.0120、0.0145 mm²/s。5

更有用的是比较随心搏和呼吸变化的振幅:

区域 心搏相关振幅指标 呼吸相关振幅指标
MCA周围脑脊液空间 3.30% 1.21%
第四脑室 8.43% 2.45%
基底节血管周围空间 2.45% 2.36%
穿支血管周围空间 2.75% 2.58%

这些百分比是作者方法定义的运动指标振幅,不是每次心跳排走的液体比例。它还包含一个处理条件:与正弦模型拟合不好的体素,其振幅被压到近零。因此,它表达的是该分析方法下的节律性运动变化。35
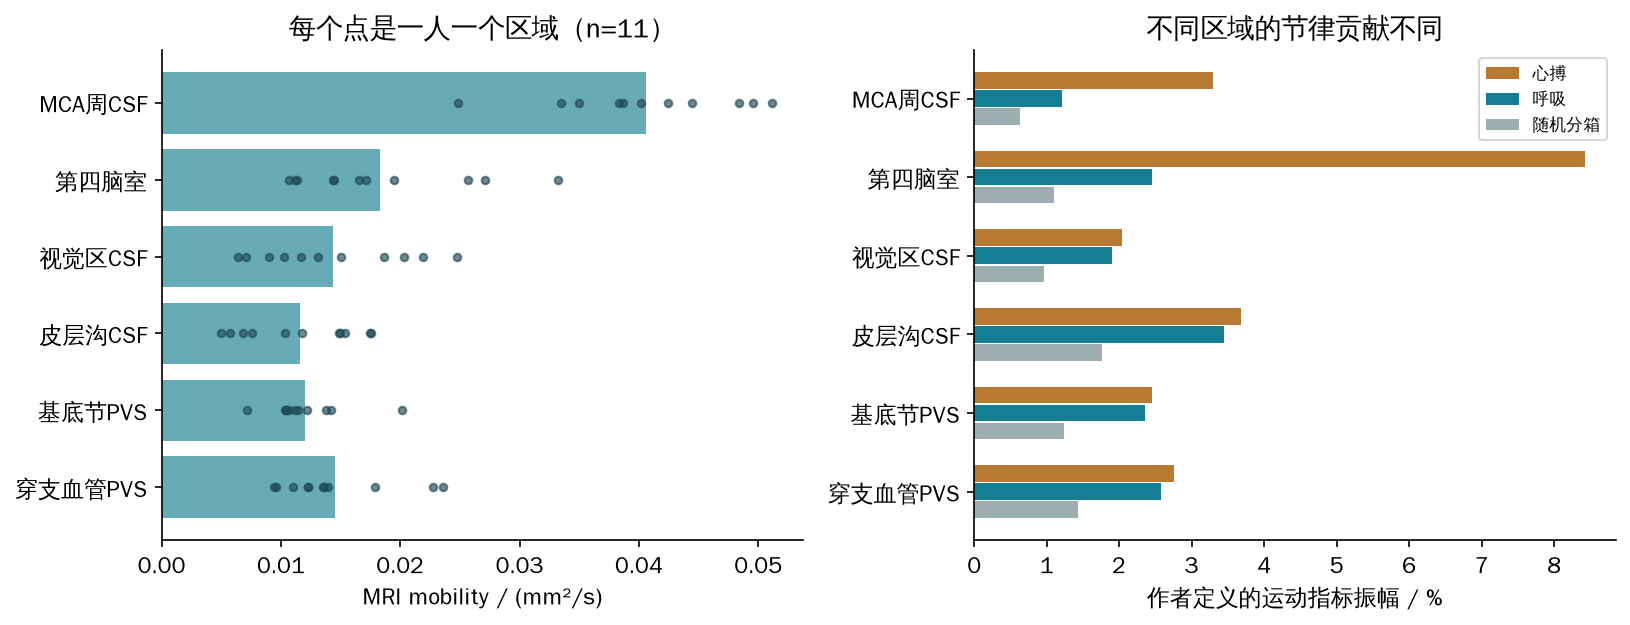
人体公开表重绘。左:每个人在各区域的运动指标;右:心搏、呼吸及随机分箱的区域平均振幅指标。大脑底部空间中,心搏的关联更明显;一些小血管周围空间里,两类节律的贡献更接近。随机分箱是处理流程的对照,不是另一种生理驱动力。

另一组9人的视觉刺激比较中,本库重算得到,功能定义的视觉区运动指标平均增加约1.19%,控制区约0.01%。原始配对Wilcoxon检验分别为 $p=0.0039$ 和 $p=0.8203$。这是对运动指标的实验变化,不是测得净清除提高1.19%;11人与9人两项分析还有6人重叠,不能加成20名独立参与者。

研究还比较了8名脑淀粉样血管病(CAA)患者与8名对照。MCA周围区域的平均运动指标在患者组高约21.8%,部分其他区域却没有同样差异。研究并未同时量出这些人的净清除,所以不能把指标更高称为清除改善,也不能只靠病名反推出当时清除率。5
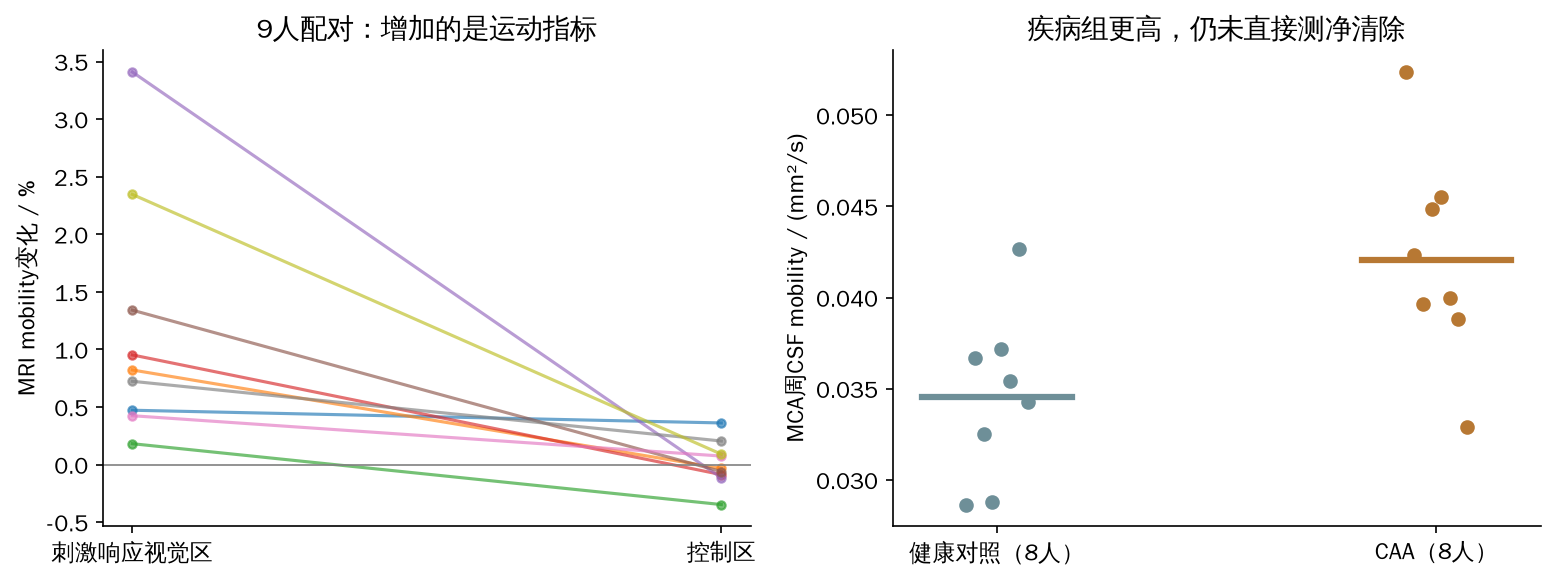
左:9人的视觉区和控制区变化,连线保持同一人的配对。右:CAA与对照是不同参与者组,横线为各组均值。两项比较都没有直接给出目标分子离开脑组织的速率。

小鼠慢血管运动研究:输入实验与存量实验是两条证据

Hauglund等2025年同步记录小鼠的去甲肾上腺素、血管和脑脊液示踪信号,发现NREM睡眠期间存在较慢的共同振荡。去甲肾上腺素升高、动脉收缩与局部脑脊液信号变化相互联系;对神经或血管环节的扰动,也支持这些环节之间存在实际作用。6

但该文两类实验必须分开:

直接扰动血管的实验,主要检验脑脊液示踪物的输入。 血管振荡改变后,邻近区域的示踪物进入增加,远处区域没有同样变化。这支持血管运动能改变局部输入和分布,不能单凭这一步就称脑内已有蛋白质排出更快。

另一组实验比较颅内示踪物存量。 15只小鼠在第一次扫描后经历5小时自然活动与睡眠,再扫描一次;比较第二次与第一次的颅内放射性计数,且原方法明确做了衰变校正。这个端点更接近跨颅内边界的净移除,但它仍是特定小分子示踪物,不能代表所有内生蛋白。

在这15只小鼠中,残留比例与微觉醒频率有关;总NREM时长等指标没有呈现同样关联。微觉醒在这里主要作为慢去甲肾上腺素波动的代理,研究也检查了没有微觉醒标志的神经峰。这并不支持通过频繁打断睡眠来改善清除。

文章中药物改变神经与血管振荡的结果,也主要包括脑脊液示踪物输入的变化。小鼠的这些机制观察,不能单独用于判断一个人的用药利弊。

较稳的进展是:神经活动、动脉运动和脑脊液示踪动态之间的链条,获得了更多直接扰动证据;从这条链到不同分子最终离开的速度,仍需按端点逐项连接。

另一项研究为什么得到相反的睡眠结果

Miao等2024年先研究局部荧光恢复,再研究示踪物从一个脑区扩散到另一位置后的浓度变化,并辅以组织切片的空间分布。7

这里有两个不同示踪实验:局部扩散使用4 kDa的FITC-dextran,清除推断使用约570 Da的AF488。前者未检出显著的状态间扩散差异,不等于证明所有分子、所有尺度的运输都完全不变;作者给出的检测能力也有限。

在清除分析中,作者先用扩散模型预测“不发生移除时应到达多少”,再用实际信号与参照的差异估计清除。用公开的8对作者模型结果,本库重算得到清醒条件的平均峰时清除比例为69.7%,睡眠条件为52.8%;配对差约−17.0个百分点,配对t检验 $p=0.0162$。8

这只是重新汇总原作者给出的模型推断量,不是独立从原始荧光重建了一次清除。
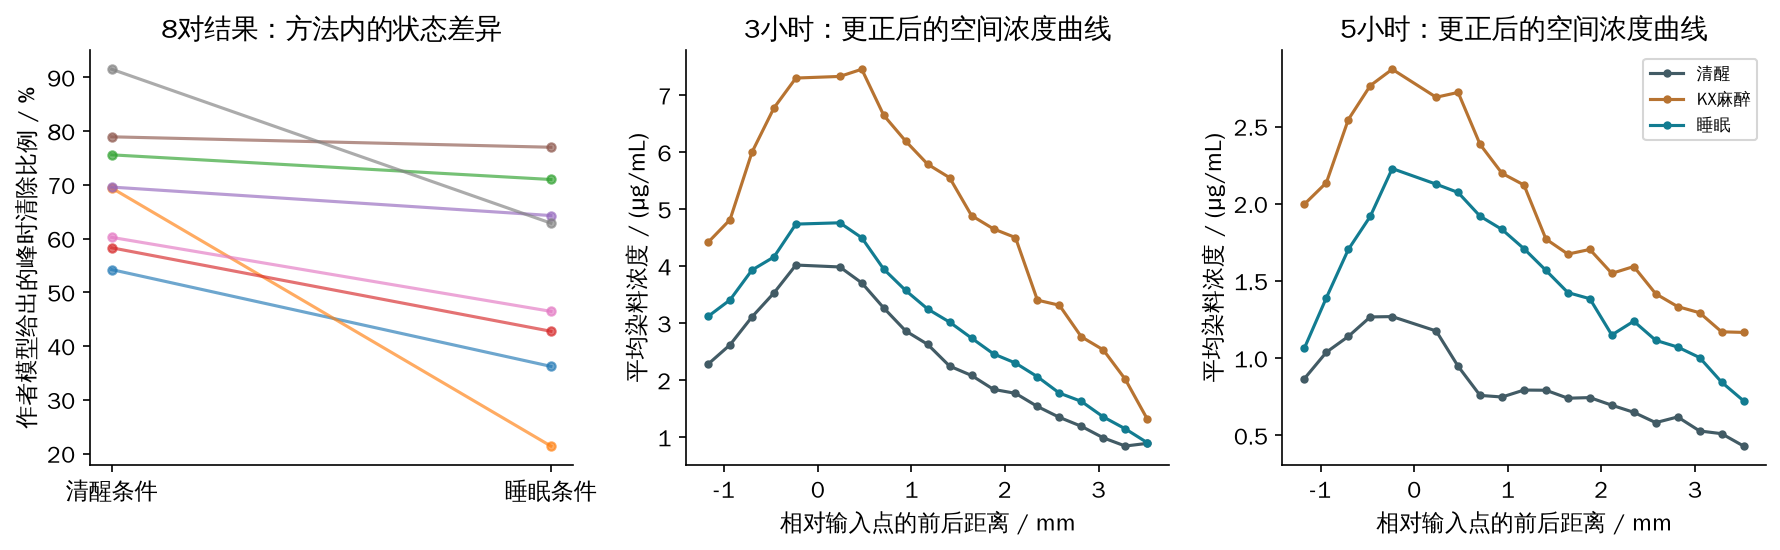
左:8对作者模型给出的峰时清除比例。右:使用更正后的源表重绘3小时和5小时的空间平均浓度,单位经原图核对为μg/mL。空间曲线保留原始均值,没有自行把曲线面积换算成全脑总量,也未用空间采样点冒充独立动物重新检验显著性。

2024年的更正针对图3b源表中的“Mean Wake 3h”一列;本篇使用目前提供的更正表。13

2025年的公开争论,主要围绕起始实际进入的示踪量、扩散与移除模型、示踪物的血管途径,以及麻醉、睡眠剥夺和恢复期怎样界定。批评方认为这些因素使原结论不可靠;原作者则提供了回应,包括早期示踪量对照、空间切片支持及实验时间窗的解释。910

不能只用“局部变淡可能是扩散”这个常识,就断言原作者完全没考虑扩散:它恰好是其模型的起点。但能拟合局部曲线,也不能免除对初始量、空间结构、状态和出口的核实。

衰减公式可以成立,仍不代表出口已经被找到

Miao等使用的一个经验形式,是把高斯扩散解乘上 $\tau/(t+\tau)$:

$$ C'(r,t)=C_{\rm diff}(r,t)\frac{\tau}{t+\tau}. $$

这可以对应一个数学上明确的扩散加有效移除模型:

$$ \frac{\partial C'}{\partial t} =D\nabla^2 C'-\frac{1}{t+\tau}C'. $$

也就是说,它不是纯扩散,但可以由一个随时间变化的均匀有效损失项产生。本库用径向有限体积计算另外核对了这一关系,空间网格加密后,数值解向解析解收敛。12
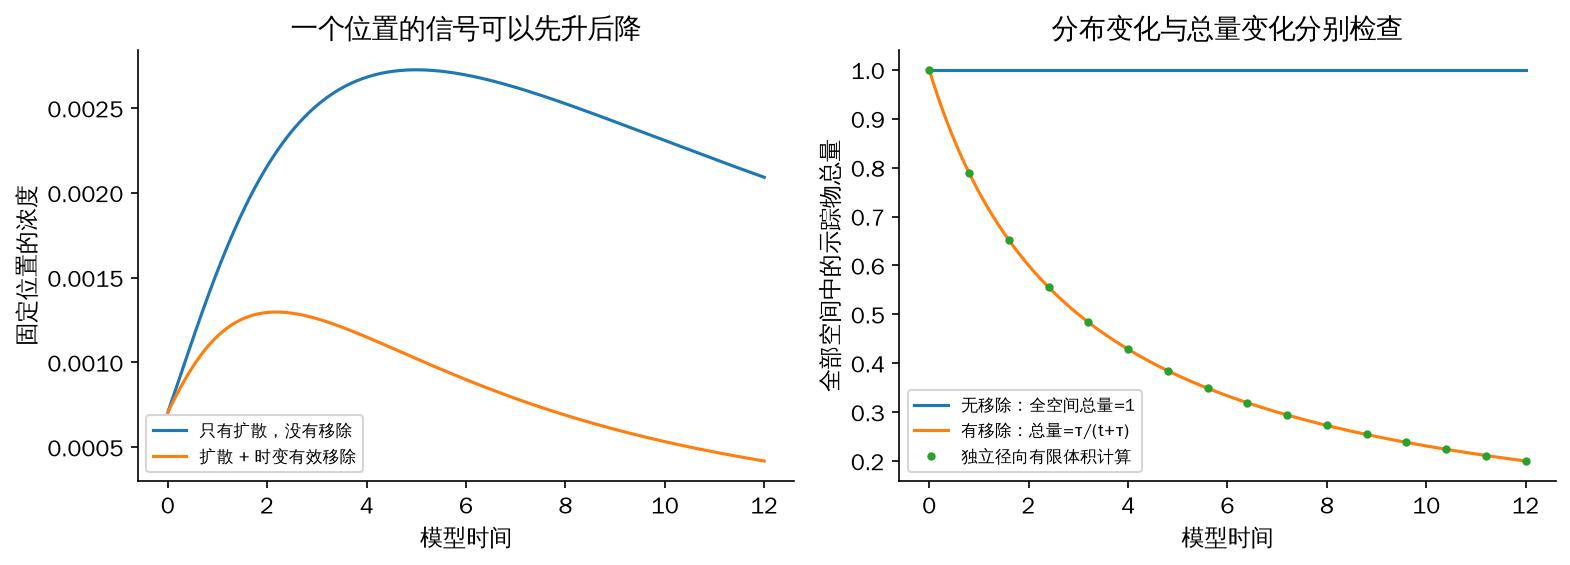
本库三维扩散与有效移除模型。左:固定位置的浓度可以先升后降,即使没有任何净移除;加入移除项还会改变峰值与峰时。右:全空间总量是否减少,是另一项可核对的量。模型参数为示意值,没有用于拟合真实脑组织。

这个计算说明,不能仅凭经验移除项的写法,就认定它违反基本运输规律。真正需要验证的是:均匀有效损失是否是合适近似、初始脑内量是否已校准,以及同一数据是否还兼容其他分布或出口机制。这个损失项本身没有告诉我们物质经过了脑脊液、血液还是其他途径。

还要特别注意,局部浓度曲线的峰时一般也可能受移除过程影响。只有在相应模型条件下,才能用它提取扩散参数,不能把峰时当作与清除无关的通用尺子。

2026年的出口研究:更快到达淋巴结,也未必意味着组织内交换更好

El Kamouh等2026年的研究,把问题继续延伸到脑静脉回流与脑膜淋巴通路。人体部分是颅内高压患者与对照的影像关联;小鼠部分则改变静脉回流,并追踪压力、脑体积、淋巴结构和示踪分布。11

一个值得保留的结果是:小鼠脑内压力可以较早恢复,而脑水肿的恢复更慢。与此同时,直接从脑脊液输入的示踪物,根据其在不同时间到达淋巴结的分布,被作者解释为外部引流加快;但部分阶段中,示踪物进入脑实质和血管周围空间反而减少。

因此,输入脑脊液的标记物更快到达外部,不等于脑实质中的原有溶质也更快被带出来。 液体可以改变分配路径,较快通过一条路,却较少与我们关心的组织交换。

这些动物结果支持出口组织与静脉、淋巴功能之间存在联系,却不把人体影像关联直接变成治疗因果结论,也没有确立所有物质唯一的出脑通路。

可以怎样理解整条机制

脑内运输需要同时看三层:驱动力和通路决定液体如何移动,浓度差与交换决定目标分子怎样迁移,出口和转化过程决定指定区域的存量能否减少。

较稳的证据是,心搏、呼吸和慢血管活动能在特定区域留下可测的液体运动模式,血管扰动也能改变局部示踪输入。更难的部分,是把这些变化与某个内生分子最终离开特定组织的速率一一对应,并确定不同状态下各出口的贡献。

所以,后续实验最需要接起来的,不只是“再看到一条更大的波”,而是同一条件下的实际起始量、局部交换、目标区域存量与外部去向。只要这些边界清楚,不同研究就可以互相补充;如果边界不清,同一个“清除”词就会承载几种不同答案。

来源与依据

  1. S1 流体力学综述

    Cerebrospinal Fluid Flow

    Douglas H. Kelley; John H. Thomas · 2023

    AnnualReviewFluidMechanics55,237–264;实际作者公开Review in Advance版2022-09-28 · 相关全文已核

    Anatomy/Methods/PVS与组织内模型;§7溶质运输、守恒方程、Péclet与dispersion

    用其建立通路与物理量地图,未把评论中的确定语气当成所有生理条件下的共识。PVS、组织间隙和全局网络分层。

  2. S2 批判性领域综述

    The glymphatic hypothesis: the theory and the evidence

    Stephen B. Hladky; Margery A. Barrand · 2022

    FluidsBarriersCNS19,9;PMC8815211;2022-02-03 · 相关全文已核

    概念/摘要、入口与出口、AQP4与组织内transport讨论

    比较经典扩散/优先通路与glymphatic流通模型;不继承父库“两边共同否定”判词,不由水通道作用直接定位大分子的路线。

  3. S3 原始人体MRI研究

    Region-specific drivers of CSF mobility measured with MRI in humans

    Lydiane Hirschler; Bobby A. Runderkamp; Andreas Decker; Thijs W. van Harten; Paul Scheyhing; Philipp Ehses; Léonie Petitclerc; Julia Layer; Eberhard Pracht; Bram F. Coolen; Wietske van der Zwaag; Tony Stöcker; Philipp Vollmuth; Daniel Paech; Alexander Effland; Marianne A. A. van Walderveen; Alexander Radbruch; Mark A. van Buchem; Gabor C. Petzold; Susanne J. van Veluw; Matthan W. A. Caan; Katerina Deike; Matthias J. P. van Osch · 2025

    NatureNeuroscience;正式电子日期2025-10-14;PMC12586159 · 相关全文已核

    Main/Results全部核心比较;Discussion方向不可读;Methods参与者、重建、ROI、正弦拟合与统计

    motion为信号衰减指标mm²/s,方向轴不区分正反。11人与9人分析有6人重叠,CAA8vs8独立组;低R²体素振幅压近零。BOLD定义视觉区不是直接测动脉壁位移,更不直接测清除。

  4. S4 原始读出模型与补充资料

    Hirschler et al. — Supplementary Information on CSF-STREAM motion encoding

    Lydiane Hirschler and coauthors · 2025

    正式MOESM1 · 相关全文已核

    完整短SI:gradient编码、uniform cos、parabolic sinc与slow/fast oscillation;补图1–3

    翻转脉冲把相位转成cos强度响应,不能套普通复信号幅度只随离散度变化的模型。单分量b13/venc5对应斜向b26/venc5/sqrt2,相互兼容。本文只算方向编码简化流型,不复现整套张量重建。

  5. S5 公开处理数据及分析代码

    Hirschler et al. — public participant-level tables and analysis code

    Lydiane Hirschler and coauthors · 2025

    各源表与代码原件保存;人群行匿名,不作个体诊断 · 相关全文已核

    SourceFig2(M7)、Fig6(M11)、Fig7(M12)、Fig8(M13);代码R0/R1/R2对应关键公式仅读

    区域N11重算,visualN9 mean1.186%/control.0101%;CAA SASmean+.21.82%,不把运动升高当清除改善。p注明未校正或ROI内3比较校正,不声称全部多重比较家族检验。公开代码sha a911d7425b2f7ae462bf89efeebb16d90291856f,未运行MRI重建。

  6. S6 原始小鼠生理/成像研究

    Norepinephrine-mediated slow vasomotion drives glymphatic clearance during sleep

    Natalie L Hauglund; Mie Andersen; Klaudia Tokarska; Tessa Radovanovic; Celia Kjaerby; Frederikke L Sørensen; Zuzanna Bojarowska; Verena Untiet; Sheyla B Ballestero; Mie G Kolmos; Pia Weikop; Hajime Hirase; Maiken Nedergaard · 2025

    Cell188,606–622.e17;实际PMC12340670 NIH作者稿XML,未称与出版PDF逐字一致 · 相关全文已核

    Results神经/血管/CSF关联、动脉扰动Fig4、Fig5颅内SPECT;Discussion与SPECT校正/分割方法

    因果扰动主测CSF tracer influx;另n15 SPECT是5h/初始的颅内计数比,已做衰变校正。microarousal为NE代理、关联不推人为打断睡眠收益。没有独立重算SPECT原始数据,不能把药物influx结果当人群净清除或治疗结论。

  7. S7 原始小鼠局部扩散/示踪研究

    Brain clearance is reduced during sleep and anesthesia

    Andawei Miao; Tianyuan Luo; Bryan Hsieh; Christopher J. Edge; Morgan Gridley; Ryan Tak Chun Wong; Timothy G. Constandinou; William Wisden; Nicholas P. Franks · 2024

    NatureNeuroscience27,1046–1050;2024-05-13;正式PDF和PMC11156584 XML · 相关全文已核

    正文、Fig1–3、Methods Eq2/5/6/8/9及校准/脑状态;正式Fig3轴单位亲核

    4kDa局部扩散实验与AF488约570Da清除实验分开;null非精确等价。清除百分比以高斯参照/经验移除估计,组织切片增加空间约束,不说作者未考虑扩散。原始输入量/出口/状态界定仍与后续评论比较。

  8. S8 公开模型结果与更正源表

    Miao et al. — public peak-clearance estimates and corrected spatial means

    Anda Miao and coauthors · 2024

    2026-09-13从原刊下载当前源表;采样均值与推断量分开 · 相关全文已核

    Figure2k8对模型清除比例;MOESM5 Figure3b空间均值,已更正MeanWake3h

    重算69.731/52.758%,配对差-16.973个百分点、t p.0162118。未重拟原荧光,不用空间均值当独立动物或全脑质量;Fig3b真实单位μg/mL按正式图确认,非μM。

  9. S9 原始方法评论

    A curious concept of CNS clearance

    Virginia Plá; Erik Kroesbergen; Saiyue Deng; Michael J. Giannetto; Lauren M. Hablitz; Evan Newbold; Antonio Ladrón-de-Guevara; Tina Esmail; Ryszard Stefan Gomolka; Yuki Mori; Steven A. Goldman; Douglas H. Kelley; John H. Thomas; Maiken Nedergaard · 2025

    NatureNeuroscience28,731–733;2025-03-11;PMC12340669 · 相关全文已核

    完整评论的输运模型、实际脑内初量、读数边界和生理状态质疑

    作为竞争解释和待核条件,不把质疑本身当作已证伪对方。有关纯扩散/损失项批评用本库数学例子限定,仍承认有效体损失未指明出口。

  10. S10 原作者方法回复

    Reply to: A curious concept of CNS clearance

    Nicholas P. Franks; William Wisden · 2025

    NatureNeuroscience28,734–736;2025-03-11;实际Imperial作者公开稿 · 相关全文已核

    全文核心争论:经验clearance形式、flow上限、早期量对照、状态时窗与统计

    早期10min差异p.72是作者补充报告,未独立复算原数据;回复并不免除参数与区室外推条件。仿体估计与方程6的角色按其说明分别记,不据文字风格裁胜负。

  11. S11 原始静脉/脑膜淋巴研究

    Cerebral venous blood flow regulates intracerebral pressure and brain clearance via meningeal lymphatic vessels

    Marie-Renee El Kamouh; Myriam Spajer; Ruchith Singhabahu; et al. · 2026

    NatureNeuroscience29,2190–2203;2026-07-22;普通浏览器取得OA全文,曾遇DOM多article选择错误已从保存HTML恢复正文 · 相关全文已核

    Results压力/脑体积不同步、CSF引流至淋巴结、组织输入与MLV扰动;Discussion替代流路及人体关联

    公开全文相关段已读,未重做手术/影像或细胞组学。CSF示踪物更早到外部与组织内输入减少并存,不将其称脑实质已有废物清除更快。人体部分观察性且临床背景不同;不提治疗方案。

  12. S12 本库可复算代码

    T76 — transport balances, actual MRI readout, diffusion/removal, and public-data recomputation

    Codex · 2026

    2026-09-13本库计算;非独立科学审阅 · 相关全文已核

    chamber/exchange_models、radial_pde、mri_readout_model、human_data/mouse_data

    区室守恒/周期内净水量、FV扩散与时变损失、实际SI cos/sinc模型以及公开表重算。初版通用MRI幅度模型已替换;数值例子无量纲,不拟合人体、不优化干预。

    本地原件
  13. S13 原始更正

    Author Correction: Brain clearance is reduced during sleep and anesthesia

    Anda Miao and coauthors · 2024

    NatureNeuroscience27,1425;2024-06-14;PMC11239483 · 相关全文已核

    更正全文:SourceDataFig3b MeanWake3h一列错误并上传新表

    仅按实际更正范围描述,不声称整个研究已撤销或所有问题因更正解决。

最后更新 2026-09-13

来源