一起变化,还需要进一步解释
心跳、呼吸与脑活动经常一起变化。起身、运动、观看情绪性画面或逐渐入睡时,这些过程会同时受到影响。研究这种联系,需要把身体内实际发生的过程,与仪器和算法呈现的关系接起来。
三个问题尤其值得区分:心血管状态怎样通过神经反馈到中枢;呼吸和其他状态怎样同时影响多个系统;以及心脏产生的电场或机械活动,怎样混入脑电记录。
它们可以在同一段数据里共存。下面先看有明确生理环节的联系,再看联合记录怎样帮助区分其来源。
心脏与中枢之间,确实有来回传递的信息
心脏有自身的起搏系统,中枢通过交感和副交感输出调节心率、传导与收缩等过程。这些输出经过神经节和心脏局部神经网络到达相应组织,并非大脑每次直接发出一个“跳动命令”。1
另一方向也有具体通路。主动脉和颈动脉窦的压力感受器感受血管壁牵张,传入信号经过迷走或舌咽等路径到达脑干。脑干再调整交感与副交感输出,帮助心率、血管张力和血压作出补偿。心脏自身的机械、化学状态也可以通过感觉神经回传。1
这意味着,“迷走神经活动”不是一个方向单一、内容统一的数。神经束中包含不同的传入和传出成分,报告的状态和调节的对象也不同。心率下降、传入感觉增强与某个皮层电位变大,不能直接当作同一个事件。
压力感受具有分子层面的实验依据。2018年的小鼠研究显示,在相关感觉神经中同时移除Piezo1和Piezo2后,压力变化引起的神经响应和反射性心率调节严重受损;单独移除其中之一并未产生同样结果。针对相应感觉通路的激活又能引发心血管反应,提供了输入—反射链条的证据。2
这些发现比两条曲线同步更接近机制,因为它们改变了候选传感环节并观察后果。其结论仍限于所检验的感觉通路和实验条件,不直接说明某个人当时的情绪内容。
2026年的进展:心动周期还可以携带血量信息
动脉压力不是循环系统唯一需要感受的量。2026年的一项研究发现,小鼠部分迷走感觉神经的活动随心动周期变化,也对心脏充盈和循环血量变化敏感。3
研究者同时记录神经活动、心电,以及部分动物的心腔压力和容积。相关神经响应可以出现在心房和心室收缩的不同阶段。针对相关感觉通路移除Piezo2后,这些心搏同步响应消失或明显受损,同时体位变化后的血压补偿变差。与动脉压力感受的Piezo1/Piezo2冗余关系相比,这条通路对Piezo2的依赖有所不同。2 3
本库从原始公开表重算并重绘了其中三组体位变化数据。对照组的平均血压恢复比例约为85.0%,相应Piezo2缺失组约46.0%,双缺失组约32.5%。
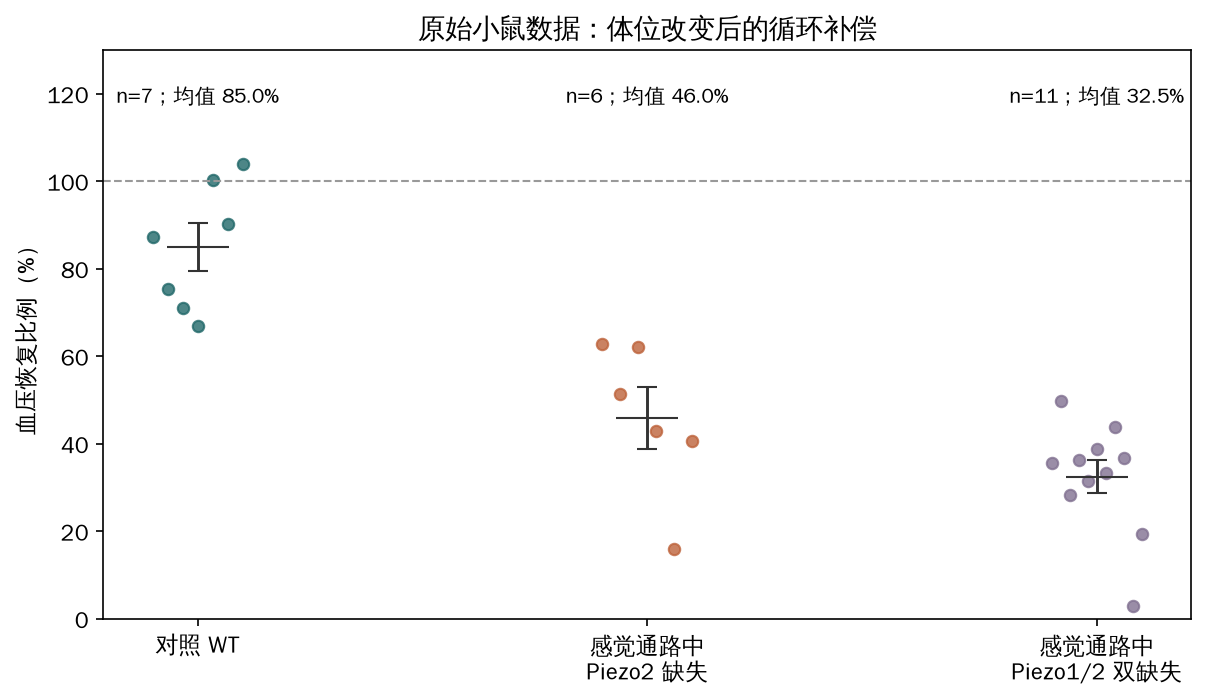
来自原文图1f的三个组,分别为7、6、11只小鼠;每个点是一只动物至少三次试验的平均结果,黑线为组均值与标准误。100%表示按作者定义回到原压力水平,超过100%表示超调。全表九组数据保存在复算记录中。
这些实验主要在麻醉小鼠中完成;数值不是人体起立时应达到的恢复标准。它提供的具体认识是:同一次心搏中,机械状态可以被不同感觉通路读取,再参与循环调节。某种感觉神经与心搏同步,未必只是在报告“心率是多少”。
该研究并未同时证明这些信号怎样形成每一种人类心搏诱发脑电。传入神经的机制与皮层记录的解释,仍需逐层连接。
呼吸怎样成为心脑之间的一条共同线索
呼吸会影响胸腔压力、回流、血压和心搏间隔,也与中枢的呼吸控制及唤醒状态相连。前面的HRV研究已经说明,呼吸相关调制会进入某些心搏变异指标。8
它还能通过感觉通路影响神经活动。2016年的人体颅内记录研究在7名患者的部分嗅觉和边缘系统脑区观察到呼吸相关活动,其中3人完成鼻呼吸与口呼吸比较。改变呼吸路径后,某些呼吸相关振荡调制减弱;两种路径使用同一种腹部呼吸带作比较,减少了测量方式不同造成的混淆。4
这里也有明确边界:只有1名路径比较参与者同时具有梨状皮层记录,其他脑区和不同频率的效果并不完全一致。结果支持鼻部空气流动参与部分神经调制,并未排除中枢呼吸驱动或其他生理变化,也不是针对所有脑区的统一结论。
跨系统联系不需要所有节律变成同一个频率。例如,较慢的呼吸相位可以调制较快神经活动的强弱,同时改变心搏间隔。若只记录心与脑,漏掉了这一共同变化,就可能把它误归给直接心脑作用。
一个明确的反例:没有直接作用,也能出现“心预测脑”
设一个模型有三个变量:共同状态$C$、心相关变量$H$和脑相关变量$B$。共同状态先影响$H$,稍后影响$B$;两者之间没有直接作用:
三个噪声在构造中彼此独立。这里的变量和时间步都是自选数学对象,不是直接模拟EEG、HRV或真实呼吸秒数。
本库生成19000个保留时间点,用四阶滞后模型比较预测误差。如果看不到$C$,加入$H$的历史可以让预测$B$的残差均方降低约55.86%,显示很强的方向性预测关系。把共同输入$C$的历史也放入模型后,这一额外改进只剩约0.02%,接近有限样本拟合带来的微小变化。
再建立第二个模型,额外加入真实的$H\to B$和$B\to H$作用。此时,在纳入共同输入后,两个方向仍分别带来约8.43%和6.50%的预测误差降低。
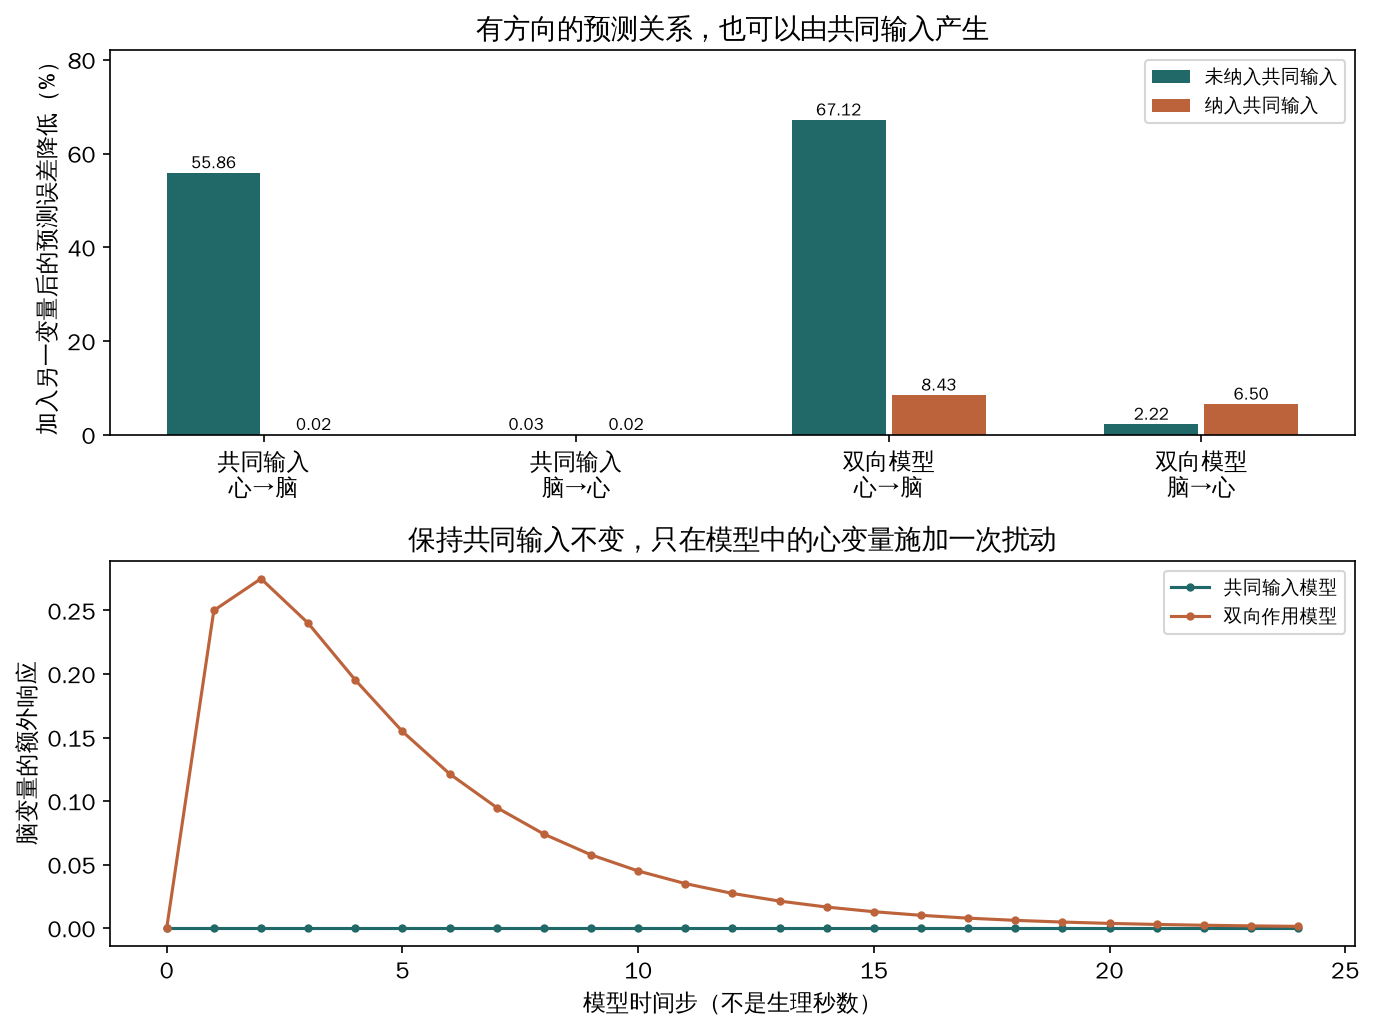
上图为样本内嵌套线性回归,不是临床预测成绩,也未作显著性检验。下图在已知模型中只给心变量一次额外扰动,共同输入和噪声保持不变:没有直接作用时脑变量没有额外响应,有反馈时则出现响应。
这个例子说明,有方向的预测关系可以成为机制线索,但需要说明共同输入、变量选择和模型假设。它也展示了条件控制与干预的意义:不是笼统问“相关有没有用”,而是比较哪些机制能产生观察,哪些改变条件后的结果能把它们区分开。
这套简单回归不是后面情绪论文使用的算法,不能作为对那项研究数值结果的复现;它检验的是方向性解释面临的一般问题。
在真实系统中,呼吸还可能位于一条作用链的中间。把它纳入条件模型后,估计的问题可能从包含呼吸通路的总关系,变成排除这条中介通路后的直接关系。因此,控制哪些量需要服从具体问题,不能机械地把所有相关变量都回归掉。
心搏锁定的脑电平均,究竟包含什么
另一条研究路线,是把EEG按心电R峰对齐,再对很多次心搏取平均:
这里的$t_k$是心搏标记,$\tau$是相对于它的时间。这类分析属于心搏诱发电位或心搏诱发响应研究,常简称HEP或HER。希望研究的对象,是神经系统对身体内部信号的处理;实际平均里却可能同时包含其他成分。7
心脏电场可以传播到头皮,脉搏造成的组织或电极运动也可能产生变化。若它们同样按心动周期出现,平均不会把它们当成随机噪声消掉。外部任务事件若与心搏时点并非完全无关,也可能进入这一平均。
2026年的方法综述总结了132项HER研究,指出采集、参考、滤波、独立成分处理、时间窗和对照选择存在很大差异。本文使用它了解方法问题,没有采用“处理过就一定无伪迹”的假设。7
心电没变,也不保证脑电里的心脏贡献没变
本库构造了一个很直接的示例:模型中不存在神经性的心搏诱发响应,只有与心搏无关的神经噪声,加上一段心搏锁定的伪迹。两个条件的心电完全相同,但伪迹进入脑电通道的贡献大小不同。
平均500个模拟片段后,两个条件都出现清楚的心搏锁定波形,还出现条件差异:
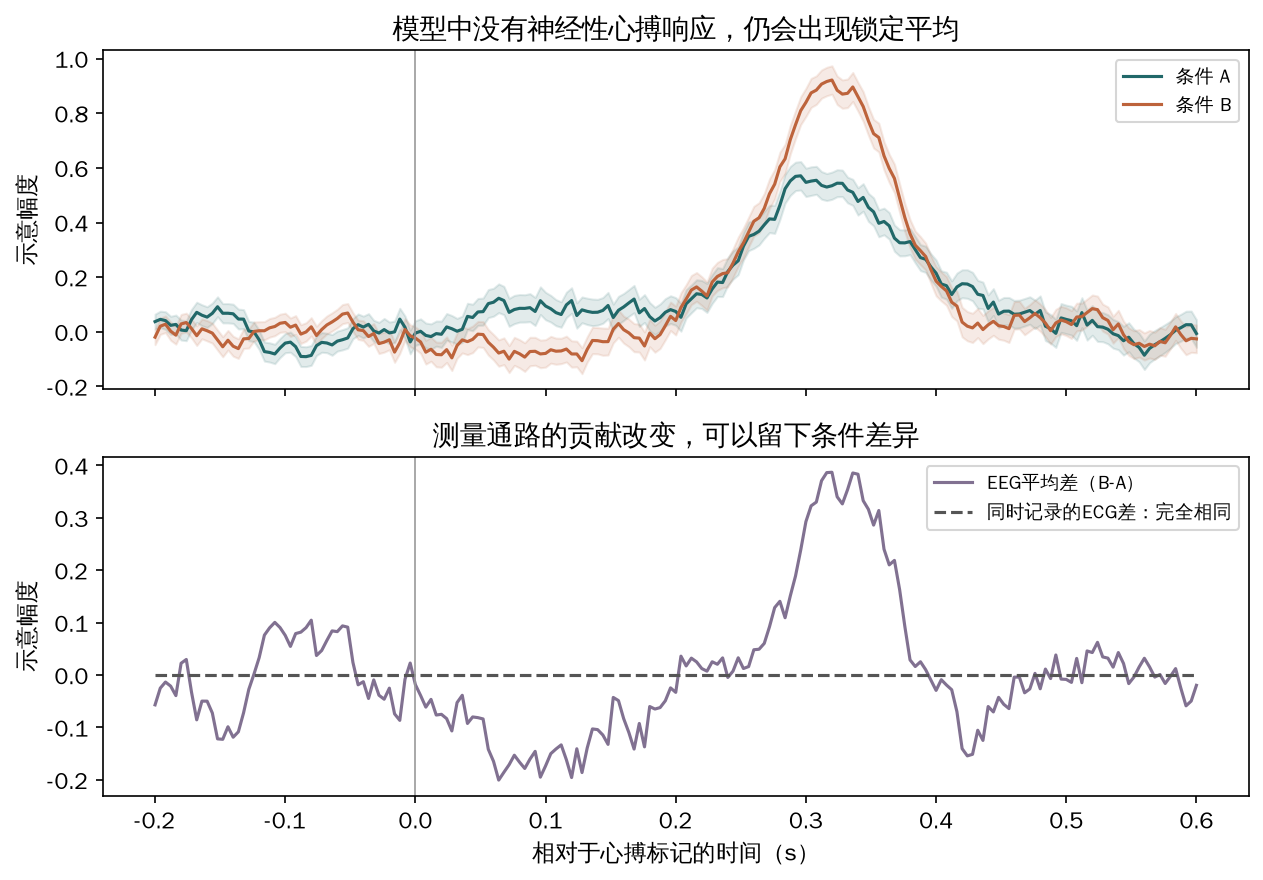
纯数学示例,伪迹形状和增益均为自选,不是任何受试者或真实论文的拟合。阴影为模拟片段均值的标准误。它说明一种可能的测量解释,不判定某项实际HEP结果就来自这种伪迹。
因此,比较ECG、控制心率、剔除与心电相似的成分、改变参考、核对运动和呼吸,分别约束不同的替代解释。把心搏标记打乱,可以检查结果是否依赖心搏时点;但真正的神经响应和心脏伪迹都可能依赖该时点,单独通过这一项也不能确定信号来源。
这些限制没有消除HER的研究价值。它们说明为什么需要结合来源、时间和任务的多个对照,而不是给一条平均曲线直接贴上某种心理状态标签。
人体感知实验里,心搏相关变化有多具体
Al等2020年让37名参与者判断较弱的手指刺激是否出现,以及出现在两个手指中的哪一个;同时记录EEG和ECG。实验还包含实际上不刺激的试次,以区分真正检出和误报。5
作者按ECG为每个心动周期定义收缩窗口,再从周期末尾取等长的舒张窗口。二分类比较中,舒张窗口的平均检出率为52.41%,收缩窗口为49.53%,相差2.88个百分点,27名参与者显示同一方向。这个结果对应接近感知阈值的指定任务,不能扩大成所有日常感觉都受同样幅度影响。
刺激在心动周期中的位置是分析分组依据,并未通过独立改变心脏来操纵整个生理反馈链。两窗口的定位正确率也没有显著差异;论文另外用R峰后固定时间段分析定位,属于不同的比较,不能混成一个更强的统一结论。5
检出变少,可能是感觉区分改变,也可能是判断变了
同一研究还分析刺激前的HEP幅度。作者将心动周期位置的结果主要联系到检测敏感度,将HEP幅度与检出之间的关系主要联系到判断标准。理解这一区别,需要同时看有刺激和没刺激时怎样回答。
在一个简化的信号检测模型中,两类内部证据分布的间距决定敏感度$d'$,选择“有刺激”所要求的标准决定判断偏向。对应常用统计量:
$\Phi^{-1}$是标准正态分布的分位函数;原实验对极端误报率另作了修正。本库用非极端概率实际计算了一个等方差高斯示例:标准更保守时,命中和误报一起减少;敏感度降低而标准保持时,命中减少、误报却增加。
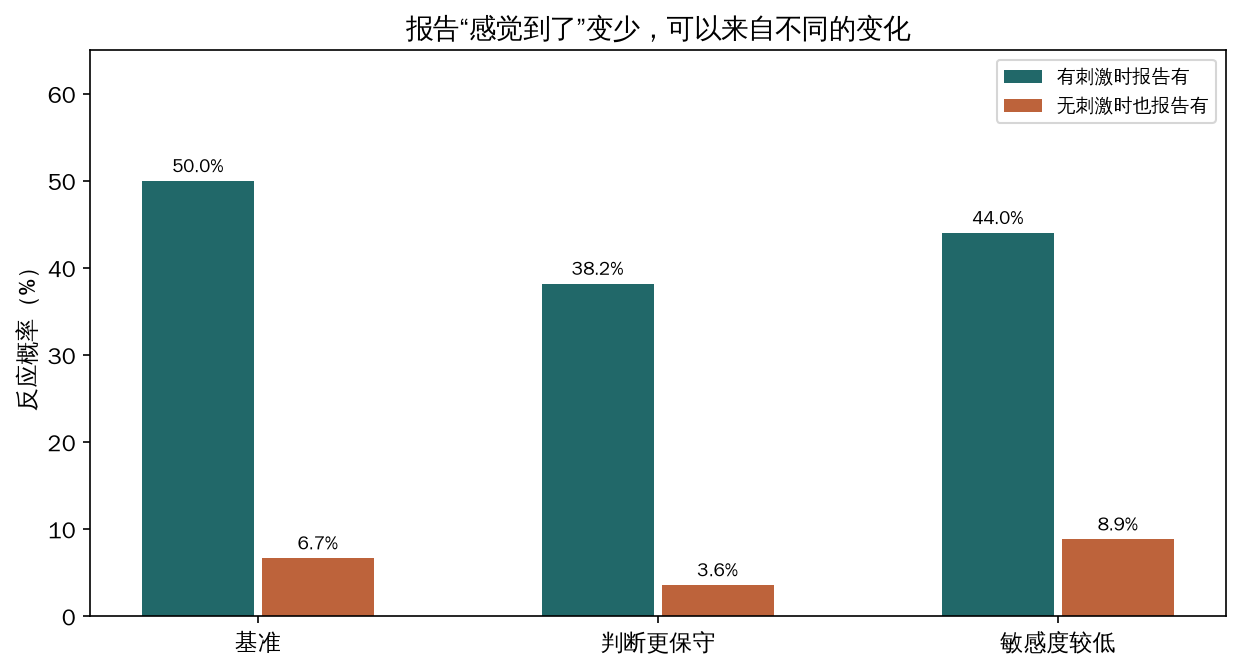
示例参数不来自该实验,也没有从跨人平均命中率反算并冒充其个体平均$d'$。
所以,“更少说感觉到了”尚未唯一说明哪一段感知过程改变了。原研究用行为、电位和信号检测分析相互约束,还做了心电与伪迹处理对照;但HEP相关分组使用同一数据中的结果相关区域,不能当作完全独立的新验证。作者提出的预测加工或内外注意分配解释,也仍超出了这些读数本身直接测量的内容。5
情绪视频研究中的“方向”,怎样读才合适
2022年一项研究分析两个情绪视频数据库,使用生成模型估计脑电功率与心搏变化之间两个方向的功能性耦合。研究报告某些上行耦合与视频诱发的主观唤醒程度有关,并提出身体活动参与情绪过程的时间解释。6
这项工作提供了联合动态描述,但其“方向”来自模型估计。输入是EEG频谱和心搏间隔等读数,没有直接记录相应传入、传出神经。LF和HF心搏变异也不是两条纯净的神经流量计;呼吸、工作点和其他调节仍可能影响它们。8
时间尺度同样需要保留。论文每1秒输出一次结果,但每次估计使用15秒窗口;公开实现还把估计标在窗口中心并做平滑。这样的1秒步长不等于获得了独立的1秒生理分辨率,更不能直接等同于R峰之后数百毫秒的HEP分析。
原研究进行了伪迹处理与添加噪声的稳定性检查,但并未同时把呼吸等其他外周变量纳入这套分析。共同视频输入、唤醒、呼吸变化、未被EEG覆盖的中枢活动及不同指标的处理延迟,仍是需要比较的解释。添加随机噪声的检验也不等于检验了这些共同原因。6
因此,这些结果可以支持特定数据和模型下的功能性联系;要把它进一步解释为“哪一条生理通路首先产生某种情绪”,还需要更有区分力的观测与干预。前面真实的感觉反射机制说明身体信息能够反馈到中枢,但它们并没有替这项情绪研究完成全部因果识别。
把三种联系放进同一套研究里
现在可以把问题组织得更清楚。
第一层是实际通路:哪些机械或化学状态被什么感觉系统读取,中枢通过哪些输出改变心血管和呼吸过程。神经记录与针对候选通路的改变,能够直接约束这一层。
第二层是联合动态:呼吸、心搏和神经活动各用什么指标描述,变化的时间尺度是什么,是否有共同输入以及反馈。同步和方向性统计有助于寻找模式,模型需要明确哪些变量已测、哪些仍隐含。
第三层是测量与解释:心脏场、运动、参考和信号处理留下了多少共同变化;行为或主观报告提供的参照是什么。一个对齐平均、频谱峰或耦合系数,不能独自承担全部层次的解释。
本文的整合判断是,心跳、呼吸与脑活动的联系具有真实而多样的机制基础。深入研究的重点,是逐步辨认某段数据里哪些机制在起作用,以及改变条件后会出现什么可检查的差异。这样既能保留联合测量的价值,也能避免把一种信号的成功解释成整个身心过程都已还原。
计算结果、原始小鼠恢复数据重算和方向性模型结果可回查。本文没有重跑原人类脑电分析、SDG算法或动物实验,也不把模型中的扰动转成个人医疗或呼吸训练方案。