历史与路径依赖12 分钟

到达顺序为什么会改变群落的长期结局?

同样的物种库、同样的环境,只是把接种顺序调换,群落可以走向完全不同的结局——先到者耗光资源挡住后来者(生态位预占),或者把环境改造成适合自己同盟的样子(生态位改造)。但“顺序有影响”不等于“历史被永久记住”:历史造成的长期差异可能来自真正的替代稳态,也可能只是收敛很慢的暂态,直接操纵实验中两种情形都被证实过、还有相当比例无法定论——只有跨世代的观测与扰动实验才能区分。判断历史效应会不会持续,要问三件事:机制是预占还是改造、结局是暂态还是稳态、观测的是分类组成还是功能。

同一锅菌种,不同的群落

把同一组微生物物种按不同顺序接种到完全相同的环境里,最后的群落会一样吗?直觉说一样——环境决定谁能活,谁强谁留下,先来的只是先占便宜,迟早被更强的竞争者取代。生态学的组装实验反复推翻这个直觉:顺序不仅改变早期组成,有时多年后群落仍然带着当初的印记。2

这个现象叫优先效应(priority effects)。它是被直接操纵出来的:在同一个物种库、同一批环境条件下,只改变各物种到达的顺序和时间间隔,测量结局差异。3 4 最戏剧性的一例是把历史和演化缠在一起:Fukami 等在自适应辐射实验中发现,祖先型细菌在结构化环境里会迅速辐射出多个生态位专化型,但如果先把某个专化型接种进去(或紧随祖先之后),祖先的多样化就被压制;同一个专化型晚到则几乎压不住——到达顺序控制的不是谁活下来,而是多样性还会不会产生。1

本文追问三件事:优先效应的机制有哪几类、各自管什么;历史造成的差异什么时候是永久的、什么时候只是收敛得慢;哪些条件决定历史被锁定还是被洗掉。框架性证据来自 Fukami 2015 年综述全文 2,实验与理论文献按摘要级引用(已逐条核验书目);文中动力学图是本库自建的最小模型示意计算,只核定性结构。

机制两类:预占资源,或改造环境

Fukami 把优先效应的机制整理成两类,这个二分是理解全领域的骨架。2

生态位预占(niche preemption):先到者把资源(营养、空间、光照)用掉,后来者能长到的丰度因此被压低。预占总是抑制性的,强的时候先到者直接让后来者无法定植。它建立在竞争排除原理之上,所以要求两个物种资源利用高度重叠——预占发生在同一生态位内部,改变的是同功能群里由谁来占位子。关键推论:预占主要改变群落的结构(哪个种在场),不大改变功能层的构成(功能群的角色还在)。2

生态位改造(niche modification):先到者改变环境里有哪些生态位可用——产酸、固氮、改变物理结构——从而改变后来者里谁能进来。改造可抑制也可促进,发生在跨生态位之间,等同于生态系统工程与生态位构建。经典例子是火烧:产 litter 的植物让斑块易燃,给耐火物种(包括自己)造生态位,同时抹掉不耐火物种的;不耐火物种先到则保持斑块湿润,让火的生态位根本不出现。改造同时改变群落的结构与功能。2

两类机制有一个有用的判别角度:预占解释“同一个位子上坐的是谁”,改造解释“有哪些位子可坐”。作者自己也提醒,功能群怎么划分会影响一个机制被归入哪一类——二分是分析工具,不是本体论。2

真正的分界:暂态差异,还是永久分流

“顺序改变了结局”这句话里最容易被偷换的概念是“结局”。Fukami 把优先效应的长期后果分成三类,并要求严格区分:2

  1. 替代稳态:不同历史导向不同的稳定组成,各自抗入侵、抗小扰动,只有大扰动才能推动群落跨域。
  2. 替代暂态:群落还没到达稳态,组成因移民历史而不同——但这是在相同环境、相同物种库、经过多次定植尝试、多代动态之后仍然存在的差异,不是“刚接种几天还没长定”的平凡情形。
  3. 组成循环:群落在若干组成态之间循环(如非传递的石头剪刀布相互作用),任何时刻的组成取决于历史路径。

优先效应本身可以是单代内的事件;而这三种后果都是多代、多次定植之后的长期属性。一个群落可以有明显的优先效应(顺序影响早期组成)却毫无历史偶然性(最终收敛到同一稳态)。2

为什么要如此较真?看实证审查的数字就知道:35 项直接操纵实验里,13 项直接证实了替代稳态,8 项支持其不存在,剩下 14 项无法得出决定性结论——多数是因为观测时间太短,无法排除只是收敛很慢的暂态。6 也就是说,"长期存在差异"和"替代稳态"之间不能直接画等号。Fukami 与 Nakajima 给出的判别问法是:扰动之后群落是否回到原组成?观测时长是否远超世代时间?8 这直接回答题目后半问:历史效应什么时候被洗掉?当差异只是暂态的时候。 竞争相似性恰恰是这个陷阱的主谋——势均力敌的竞争者对顺序敏感(中性漂移),但相似性本身只产生替代暂态;要把暂态锁成稳态,需要额外的稳定化过程,比如 Allee 效应(小种群增长率下降——新移民天然处于这个劣势区)、局部适应或改造反馈。2 5

最小模型:顺序何时留下长期结局

把上面的框架落到最简数学对象上:两个竞争物种的 Lotka-Volterra 方程,$dN_1/dt = r_1 N_1\left(1 - \frac{N_1 + \alpha_{12} N_2}{K_1}\right)$,物种 2 对称。$\alpha_{12}$ 是物种 2 对物种 1 的竞争强度。先接种一个物种、间隔 $\tau$ 后再接种另一个,看长期结局。本库实现的这个示意模型复现了框架的三层结构:
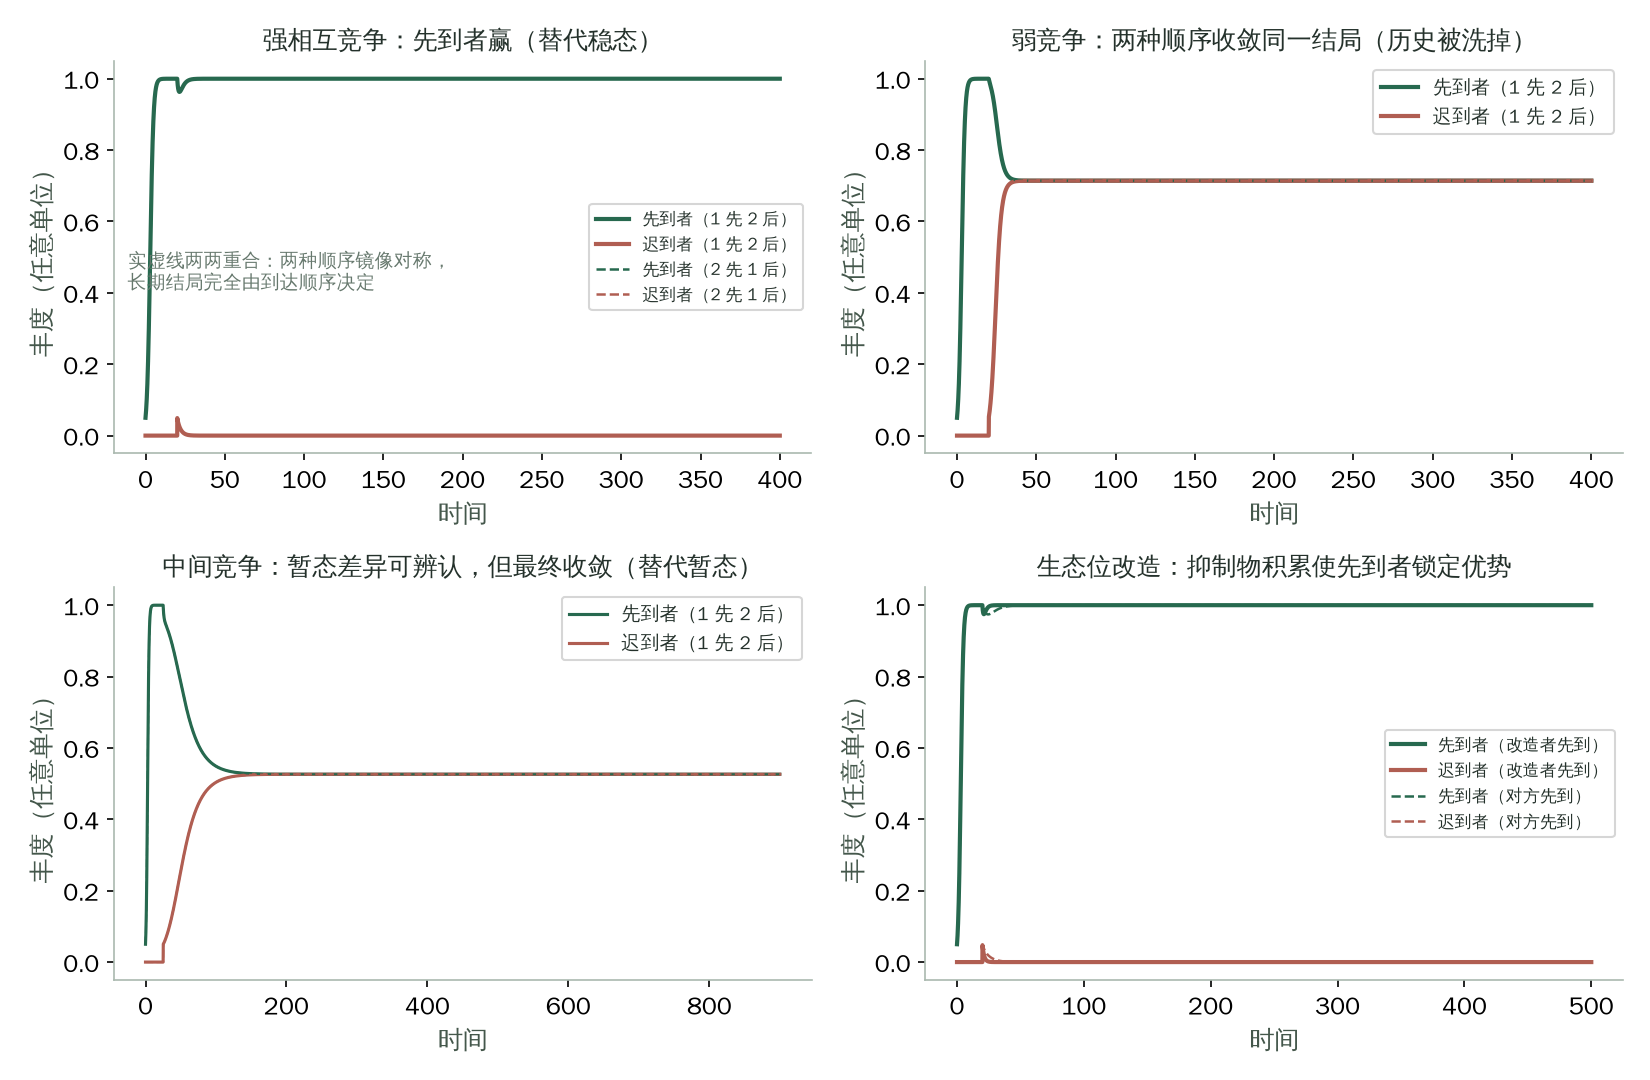
本库复算的四类情形。左上:强相互竞争()下先到者完全排除迟到者;两种顺序的轨迹镜像对称(实虚线两两重合),长期结局完全由顺序决定。右上:弱竞争(0.16)下先到者短暂冲高后回落至共存点,两种顺序收敛到完全相同的结局。左下:中间竞争(0.81)下两种顺序在百余个时间单位内组成明显不同,但最终仍收敛——替代暂态。右下:生态位改造变体——先到者积累抑制物(对环境适合度的乘性压制加毒性项),改造者先到则迟到者无法入侵,对方先到则改造者被竞争排除;改造把顺序无关的竞争系统变成了先到者赢。
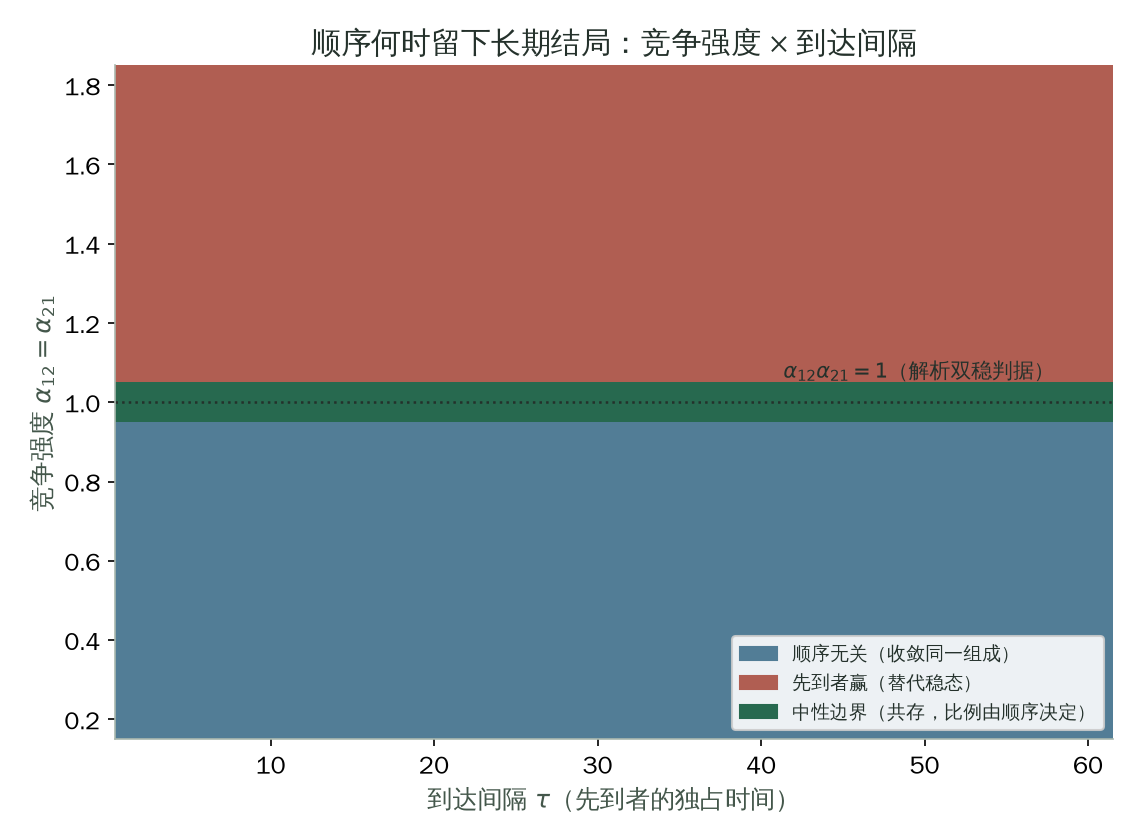
结局相图(本库复算,17 个竞争强度 × 20 个到达间隔 = 340 个参数组合的数值演示)。横轴是到达间隔 ,纵轴是对称竞争强度 。分区边界由 Lotka-Volterra 双稳态的解析判据  给出,网格只是它的数值演示: 时先到者赢(红色区,160 格); 时两种顺序收敛到同一组成(蓝色区,160 格);恰好  是中性边界(绿色带,20 格)——解析上 ,两物种共存、总丰度趋于 ,但比例完整保留接种历史,数值终态与解析预测(先到者份额由 logistic 增长给出)吻合到小数点后七位以上。这个确定性模型里  不改变结局分类,只改变暂态长度和中性边界上的比例;真实系统中到达间隔还会通过暂态持续时间和随机漂移下翻转的概率起作用。
结局相图(本库复算,17 个竞争强度 × 20 个到达间隔 = 340 个参数组合的数值演示)。横轴是到达间隔 ,纵轴是对称竞争强度 。分区边界由 Lotka-Volterra 双稳态的解析判据 给出,网格只是它的数值演示: 时先到者赢(红色区,160 格); 时两种顺序收敛到同一组成(蓝色区,160 格);恰好 是中性边界(绿色带,20 格)——解析上 ,两物种共存、总丰度趋于 ,但比例完整保留接种历史,数值终态与解析预测(先到者份额由 logistic 增长给出)吻合到小数点后七位以上。这个确定性模型里 不改变结局分类,只改变暂态长度和中性边界上的比例;真实系统中到达间隔还会通过暂态持续时间和随机漂移下翻转的概率起作用。

三个数字值得记下。强竞争场景中,顺序接种先到者终态丰度约 1.0、迟到者约 0,而同时接种同一对物种反而停在(0.40, 0.40)附近——那是不稳定鞍点,任何微小不对称都会让它倒向一边;顺序接种的作用就是把系统推过鞍点的分界线。弱竞争场景两种顺序都收敛到(0.71, 0.71),差异只存在于前几十个时间单位。中间竞争场景里差异维持百余个时间单位(实测约 110–140,取决于阈值)后仍收敛——这就是“看起来像多稳态的长暂态”在受控模型里的样子,也正是实验判定需要跨多个世代的原因。6 8 相图还给出介于“洗掉”与“锁死”之间的第三种模式:恰好坐在判据边界($\alpha_{12}\alpha_{21}=1$)上时,任何顺序下两个物种都存活,但份额完全由到达先后决定——历史既没有被洗掉,也没有锁死成员资格,只写进了比例。

改造变体显示的则是机制层的差异:纯粹的预占要靠强相互竞争才有双稳态,而改造反馈(抑制物积累)能在竞争不对称的系统里制造出先到者赢的双稳态——这对应 Fukami 所说的“稳定化过程”:改造、Allee 效应、局部适应都能把暂态的顺序敏感锁成永久分流。2 2024 年的实验工作独立证实了这条路:合作性生长(生长率随密度上升的正反馈,即 Allee 效应的一种)足以让微生物群落产生真正的多稳态。15

什么时候历史被洗掉

把框架、判据和模型合在一起,历史效应的持续需要两组条件同时满足,缺一个就被洗掉:2

局部动态要快。先到者必须在后来者到达之前把生态位预占或改造到位。如果局部种群增长相对移民速率太慢,每个生态位会被先后到达的多个物种短暂共享,最终由竞争排除慢慢收敛到与顺序无关的组成。斑块小、生产力高、环境稳定、捕食压力低等因素被认为促进强优先效应——但 Fukami 明言这些具体因子多数还是假说级或只有少量实证。2

物种库要对。库里得含有能产生优先效应的物种组合:预占要求资源利用高度重叠且竞争力相近(压倒性竞争优势下顺序无关——最强的总是赢),改造要求物种有环境工程能力。优先效应的强度有可预测性:花蜜酵母配对接种实验显示,两物种的系统发育距离越远,优先效应越弱——亲缘近意味着资源利用相似,预占才有抓手。9

近年的工作给这个框架补了两个重要面向。其一,语境与机制可以系于一个可测因子:花蜜群落里 pH 就是那个支配性因子——早到的细菌(Acinetobacter nectaris)产酸降低花蜜 pH,强烈抑制后到的酵母,解释了野外花朵中细菌与酵母互斥的占优格局;这本身就是生态位改造的直接实例,而酵母在持续暴露下还能快速演化出抗性 13。肠道群落组装中,同一物种库的可重复性(含定植顺序效应的大小)取决于宿主的饮食与生理语境 11。其二,结局要分层定义:合成群落在多碳源中组装,分类组成因历史而发散,代谢功能却收敛到少数“功能吸引子” 12——历史在分类层持续、在功能层被洗掉,这与木腐真菌群落中“接种顺序决定多年尺度分解功能”形成有信息量的对照 7:功能是否记住历史,取决于功能与组成之间的映射是多对一还是接近一对一。新生儿肠道菌群研究则展示了自然系统里的高风险版本:先定植的双歧杆菌塑造后续组装轨迹并带来长期病原体定殖抗性,而先锋群落态本身受母亲年龄、产次等临床与宿主因子影响 14。优先效应已不只是生态学概念,而是跨尺度跨学科的统一框架 10 16。

缺口

  • 暂态与稳态的实证区分仍然稀缺。2005 年审查的 35 项直接操纵实验中,13 项证实替代稳态、8 项支持其不存在、14 项无法定论(多因时长不足)6——未决不等于证伪,也不等于证实为暂态;“多代 + 扰动回归”的双重判据至今主要在微生物等快速体系中被完整执行,长世代体系里很难做全。8
  • 促进条件的量化预测不足。斑块大小、生产力、环境变率等因子各自促进优先效应的假说多在个案水平,没有一个把它们统一到“局部动态相对移民速率的比值”上的定量理论被系统检验过。2
  • 功能层的记忆何时成立不清楚。功能吸引子(功能忘掉历史)12 与木腐真菌(功能记住历史)7 并存,什么决定功能-组成映射的简并度,没有一般性答案。
  • 演化与生态的交织刚开头。Fukami 2007 显示顺序能控制多样化本身 1,但“移民史→进化分歧→反过来改变生态互作”的闭环只在少数体系被追踪。
  • 自然群落的可操纵验证有限。多数干净证据来自微宇宙与合成群落;自然群落的到达顺序难以重构,推断依赖时间序列或古记录,混淆因素多。2

小结

到达顺序改变群落长期结局的机制有两类:预占(先耗资源,总是抑制,管内部分配)与改造(先改环境,可抑可促,管生态位的有无)。但顺序敏感不等于历史永久:竞争相似性带来的顺序敏感默认只产生替代暂态,会随时间被洗掉;锁定历史需要稳定化过程——强相互竞争、Allee 效应、局部适应或改造反馈。判据是看扰动后是否回归、观测是否跨越足够世代。往条件侧说,局部动态足够快、物种库含有合适的预占者或改造者,历史才会留下;往观测侧说,还要先声明你测的是分类组成还是功能——两者对历史的记性可以相反。2 6 8 12

来源与依据

  1. S1 原始操纵实验

    Immigration history controls diversification in experimental adaptive radiation

    Fukami, Beaumont, Zhang & Rainey · 2007

    Nature 446(7134), 436–439;付费墙,摘要经 Europe PMC 核对 · 摘要已核

    摘要:接种顺序控制 P. fluorescens 自适应辐射的多样化程度;早到专化型抑制祖先多样化,晚到几乎不抑制;机制归因于中性竞争与间接促进的历史敏感结局

    题池入口文献。全文未取得,不引用其具体数字;实验细节以 s2 综述的转述为准。

  2. S2 作者综述

    Historical Contingency in Community Assembly: Integrating Niches, Species Pools, and Priority Effects

    Fukami · 2015

    Annual Review of EES 46, 1–23;作者主页 preprint 全文 · 相关全文已核

    全文:机制两类(§3)、后果三类(§2.2)、条件两组(§4)、概念史(§2.3)

    题池入口文献,本篇的框架性承重来源。

  3. S3 原始操纵实验

    Community-assembly mechanics and the structure of an experimental species ensemble

    Drake · 1991

    American Naturalist 137, 1–26 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    水生微宇宙入侵序列实验:不同到达顺序收敛到不同终末群落,'组装力学'概念源头。(摘要级引用,正文未读。)

  4. S4 原始操纵实验

    Food web architecture and population dynamics in laboratory microcosms of protists

    Lawler & Morin · 1993

    American Naturalist 141, 675–686 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    原生动物微宇宙中引入顺序与食物网结构共同决定种群动态与共存。(摘要级引用,正文未读。)

  5. S5 概念框架

    Community assembly: when should history matter?

    Chase · 2003

    Oecologia 136, 489–498 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    稳定均衡下优先效应多由预占介导且可被侵蚀;不稳定均衡/多吸引子下历史决定走向。暂态 vs 真多稳态二分的直接理论来源。(摘要级引用,正文未读。)

  6. S6 方法学审查

    Direct experimental evidence for alternative stable states: a review

    Schröder, Persson & De Roos · 2005

    Oikos 110, 3–19;作者公开全文 PDF · 相关全文已核

    摘要:35 项直接操纵实验中 13 项直接证实替代稳态、8 项支持其不存在、14 项无法得出决定性结论(多因观测时间太短)

    区分真多稳态与长期暂态的方法学标准(四类决定性实验设计:不连续响应、扰动后不恢复、初始条件致发散、随机发散)。注意 14 项未决既非多数也非'证实为暂态'——Codex 审阅更正了本库先前'多数达不到判据'的误述。

  7. S7 原始操纵实验

    Assembly history dictates ecosystem functioning: evidence from wood decomposer communities

    Fukami, Dickie, Wilkie et al. · 2010

    Ecology Letters 13, 675–684 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    木腐担子菌群落接种顺序决定多年尺度的分解功能(呼吸速率、酶活)。(摘要级引用,正文未读。)

  8. S8 概念与判据

    Community assembly: alternative stable states or alternative transient states?

    Fukami & Nakajima · 2011

    Ecology Letters 14, 973–984 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    群落发散可源于替代暂态而非替代稳态;给出区分判据(扰动后是否回归、时间尺度)。(摘要级引用,正文未读。)

  9. S9 原始实验

    Phylogenetic relatedness predicts priority effects in nectar yeast communities

    Peay, Belisle & Fukami · 2012

    Proc. R. Soc. B 279, 749–758 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    花蜜酵母配对接种中优先效应强度随到对间系统发育距离增大而减弱。(摘要级引用,正文未读。)

  10. S10 综述

    Priority effects in microbiome assembly

    Debray, Herbert, Jaffe, Crits-Christoph, Power & Koskella · 2022

    Nature Reviews Microbiology 20, 109–121 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    微生物组优先效应机制框架(预占 vs 改造、抑制 vs 促进)的最新权威整理。(摘要级引用,正文未读。)

  11. S11 原始实验与模型

    Stochastic microbiome assembly depends on context

    Jones, Carlson, Sivak & Ludington · 2022

    PNAS 119, e2115877119 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    肠道群落组装的随机性(含定植顺序效应)依赖宿主饮食/生理语境——语境决定历史遗留强弱。(摘要级引用,正文未读。)

  12. S12 原始实验

    Functional attractors in microbial community assembly

    Estrela, Vila, Lu et al. · 2022

    Cell Systems 13, 29–42.e7 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    多碳源合成群落:分类组成发散但代谢功能收敛到功能吸引子——历史效应在分类层持续、在功能层被洗掉。(摘要级引用,正文未读。)

  13. S13 原始实验

    Wide-ranging consequences of priority effects governed by an overarching factor

    Chappell, Dhami, Bitter et al. · 2022

    eLife 11, e79647 · 摘要已核

    摘要全文(经 Europe PMC 复核):支配性因子是花蜜 pH——早到细菌 A. nectaris 降 pH 强烈抑制酵母 M. reukaufii,解释野外互斥占优格局;酵母可持续暴露下演化出抗性;低 pH 还减少蜂鸟取食

    优先效应的机制可系于一个可测的环境因子(pH),是生态位改造的直接实例。(摘要级引用,正文未读。Codex 审阅更正:本库先前误写为'干旱',原摘要中并无干旱。)

  14. S14 原始实验

    Primary succession of Bifidobacteria drives pathogen resistance in neonatal microbiota assembly

    Shao, Garcia-Mauriño, Clare et al. · 2024

    Nature Microbiology 9, 2570–2582 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    新生儿肠道先定植的双歧杆菌塑造后续组装并赋予病原体定殖抗性。(摘要级引用,正文未读。)

  15. S15 原始实验与模型

    Cooperative growth in microbial communities is a driver of multistability

    Lopes, Amor & Gore · 2024

    Nature Communications 15, 4709 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    合作性生长(Allee 效应)在微生物群落中产生真多稳态——预占框架之外的稳定化机制。(摘要级引用,正文未读。)

  16. S16 综述

    Priority effects transcend scales and disciplines in biology

    Stroud, Delory, Barnes et al. · 2024

    Trends in Ecology & Evolution 39, 677–688 · 摘要已核

    题录与摘要(经 Crossref/PubMed/doi.org 在线核验)

    跨尺度跨学科统一优先效应术语与框架的最新综合。(摘要级引用,正文未读。)

最后更新 2026-09-07

来源