婴儿出生时已经带着一部分从母体获得的抗体。此后这些抗体逐渐减少,孩子自己的防御也在发育,同时开始面对家庭、托幼和季节变化带来的暴露。这些过程在同一段时间里发生,但没有一只共同的钟。
所以,真正值得问的是:孩子出生时获得了什么,这些保护怎样消退,自己能怎样应答,能否在容易发生严重疾病的时期获得额外保护?“保护空窗”如果只是指某段更容易生病的时期,可以是有用的提醒;若被理解成母源抗体突然清零、婴儿自身免疫随后才启动,就会误解实际过程。
RSV提供了一个能够把机制与临床证据接起来的实例:既有母婴配对测量,也有孕期免疫、直接给予婴儿抗体,以及后续自然应答和第二季疾病的研究。本篇围绕这些环节展开。
出生时的抗体从哪里来
母体血液中的IgG可以经过胎盘细胞的摄取、受体结合与转运,进入胎儿循环。新生儿Fc受体(FcRn)参与这条运输路径。转移在孕期后段更为重要,因此分娩时的胎盘状态、母体抗体水平以及已经经过的转移时间,都可能影响出生时获得的抗体。1
这里主要转移的是现成的IgG分子。把它称为被动保护,是因为婴儿不必先自己产生这些抗体就能使用它们;这不等于继承母亲完整的免疫记忆,也不等于婴儿自己此前没有免疫细胞。
乳汁是另一条路径。乳汁中的抗体可能作用于接触到的黏膜,但不能把乳汁抗体水平直接换算成婴儿血液或鼻腔中的水平。胎盘转移、母乳接触和婴儿自身产生的抗体,位置与来源不同,测量时需要分别处理。1
一份2025年发布、在本次检索中仍以预印本形式取得的中国母婴队列,分析了695对母婴的相关资料。母体分娩时与新生儿出生时的RSV pre-F IgG滴度明显相关,新生儿与母体的几何平均滴度比约为1.44;早产亚组的比值较低。不过早产儿只有27名,且研究有意纳入了这些早产儿及具有较晚随访资料的参与者,并非对所有出生人口的等概率完整随访。2
这个1.44有一个容易误读的地方:它不是“母亲把144%的抗体转给了孩子”。它是同一种检测中两份血样滴度的比值,并不是母体全部抗体分子的转出比例。两个人的血容量也不同,不能把浓度或滴度之比当成总量守恒账。
转移比还不能单独代表婴儿保护。母体原本抗体较高时,即使转移比不高,孩子出生时仍可能获得相当多抗体;反过来,母体读数本来就低,较高的比值也不保证孩子达到某个保护水平。判断至少要同时看母体水平、婴儿水平和测量对应的临床结局。
抗体下降是一条连续过程,低谷也不等于风险最高点
出生后,胎盘这条持续供应路线结束,已经获得的抗体会被清除和分解。婴儿的生长也会影响浓度。与此同时,孩子可以在暴露后产生自己的应答;一项血清测量可能逐渐从以母源成分为主,变成包含更多自身产生的成分。
中国队列预印本用出生后前六个月的资料估计,母源RSV pre-F IgG的半衰期约为34天;另一项临床试验血清分析根据不同年龄婴儿的基线测量,估计母源中和抗体半衰期约为36—38天。2 7 两者都不是给每个婴儿设定了相同的倒计时:检测、样本、感染经历以及模型假设不同,个体也会偏离平均趋势。
尤其不能把抗体曲线的最低点当成“整个免疫最弱的年龄”。上述中国队列模型中的pre-F IgG低谷约在10个月,但它没有主动监测每个人的感染与临床疾病,因此不能据此判定10个月就是严重RSV疾病风险最高的时候。2 更小的婴儿即便仍有母源抗体,也可能因气道、肺部和免疫发育等条件而易受疾病影响。
一个简单计算可以说明,抗体的“起点”与“衰减速度”是两件事。暂时只看外来抗体,设出生或获得抗体时的浓度为 $A_0$,半衰期为 $h$:
这不是完整的婴儿免疫模型,只描述一个没有继续补充的抗体分量。本库取35天与70天作示意半衰期,另比较起点提高4倍的情况。
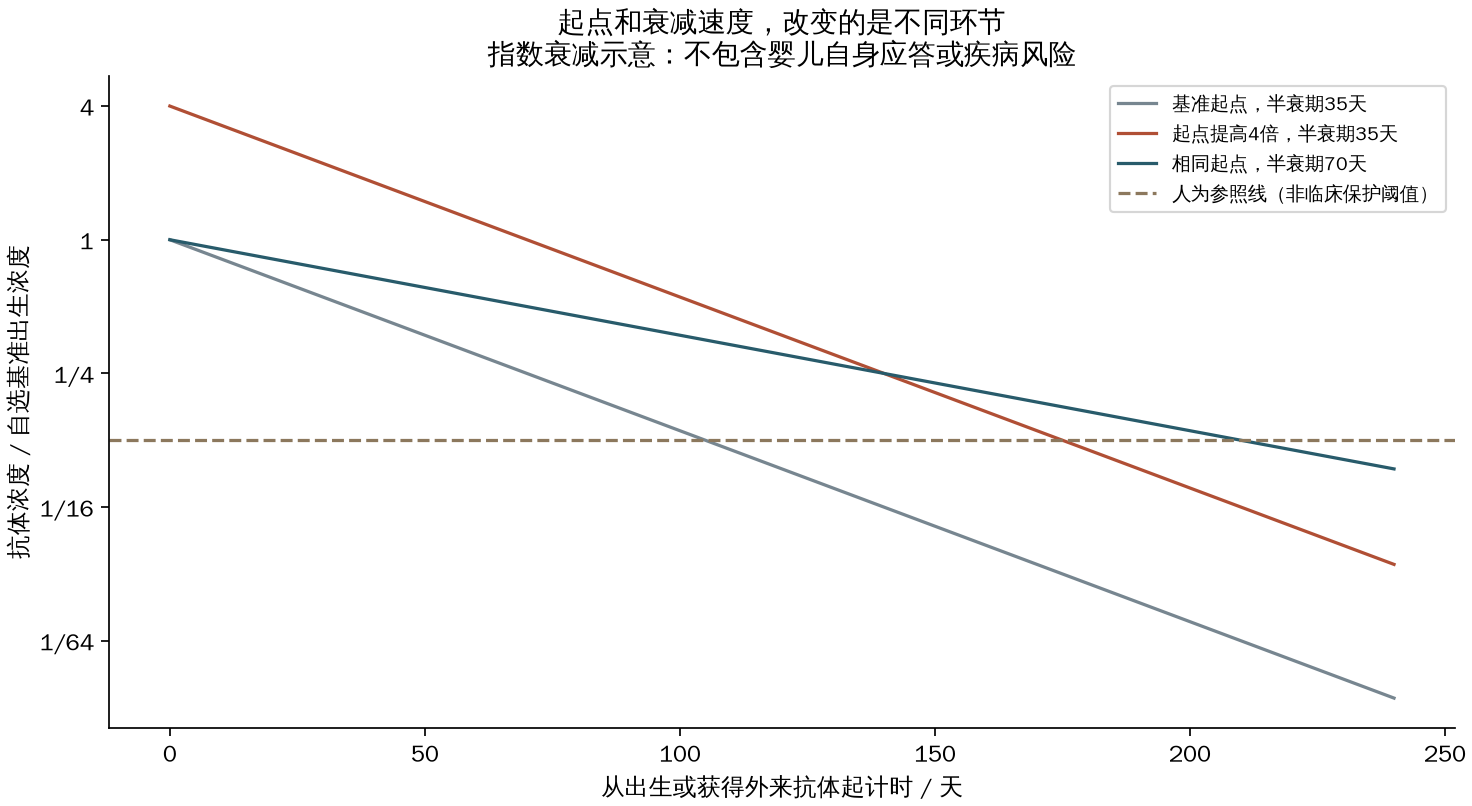
如果只问何时降到某个人为选择的参照水平 $A_{\rm ref}$,在起点高于参照线时:
本例的参照线取基准起点的八分之一。半衰期35天时,基准曲线在105天到达它;起点提高4倍后,变成175天。增加的是两个半衰期,也就是70天,持续时间并没有因此变成4倍。若保持原起点、把半衰期改为70天,则为210天。
这些日数是示意模型的数值,不是实际保护能维持多久。真正的疾病保护未必存在一条统一的血清阈值,还要看抗体是否在合适位置、能做什么、婴儿面对何种暴露,以及我们要预防的是感染还是严重疾病。
出生日期与流行季节因此很重要。两名婴儿即便有相同的衰减曲线,一个在生命最初几周就遇到当地流行季,另一个几个月后才遇到,面对的条件也不同。具体的预防安排需要当地的流行节律和适用规范,不能只拿“出生后第几个月”作判断。
孕期免疫和婴儿抗体,改变了不同环节
孕期RSV免疫先让母体产生更多针对目标抗原的抗体,再依靠胎盘转移,使婴儿出生时获得被动保护。直接给婴儿单克隆抗体则提供现成抗体,绕过母体产生与胎盘转移这两步。这种直接被动免疫并不等同于给婴儿接种抗原、建立针对RSV的主动免疫。
| 路线 | 主要改变什么 | 仍然需要满足什么条件 |
|---|---|---|
| 孕期免疫 | 母体的特异性应答,以及随后转移给婴儿的抗体基础 | 母体应答、胎盘转移与分娩之间有足够时间,产品适用于相应孕期人群 |
| 婴儿直接获得抗体 | 婴儿当下的外来抗体水平及其后续维持 | 抗体在相关暴露期仍能发挥作用,产品与婴儿人群及结局相匹配 |
MATISSE试验的2025年最终分析提供了一个具体例子:母体接种后较短时间内出生的婴儿,中和抗体提升幅度低于间隔较长者;母婴转移比在小于14天及14—29天的亚组也较低。3 母体读数升高以后,转移并不是瞬间完成的。
不过,接种到分娩的间隔本身并未随机分配,组间还可能存在孕周和其他差异。因此这些资料支持“需要给应答与转移留时间”,不能证明第14天存在一个生物学开关。
试验的研究范围与实际使用范围也须区分。MATISSE研究了24—36孕周的接种,而本次核对的美国CDC指导使用32—36孕周并考虑当地季节。这是特定地区、特定产品的适用安排,不能将论文的全部研究范围直接变成个人接种方案。3 9
临床试验到底证明了多少保护
抗体读数升高是机制证据。判断婴儿是否少生病,还要看实际疾病结局。
MATISSE是母体随机分配RSVpreF疫苗或安慰剂的试验。2025年最终分析继续支持婴儿早期临床获益:对出生后累计90天内的严重、需要就医的RSV下呼吸道疾病,报告的相对风险降低为82.4%,95%区间57.5%—93.9%;累计到180天为70.0%,95%区间50.6%—82.5%。3
这不是说82.4%的婴儿获得了一个可直接识别的“完全保护状态”,也不表示所有感染减少82.4%。它比较的是试验两组在指定窗口内发生指定疾病的风险。
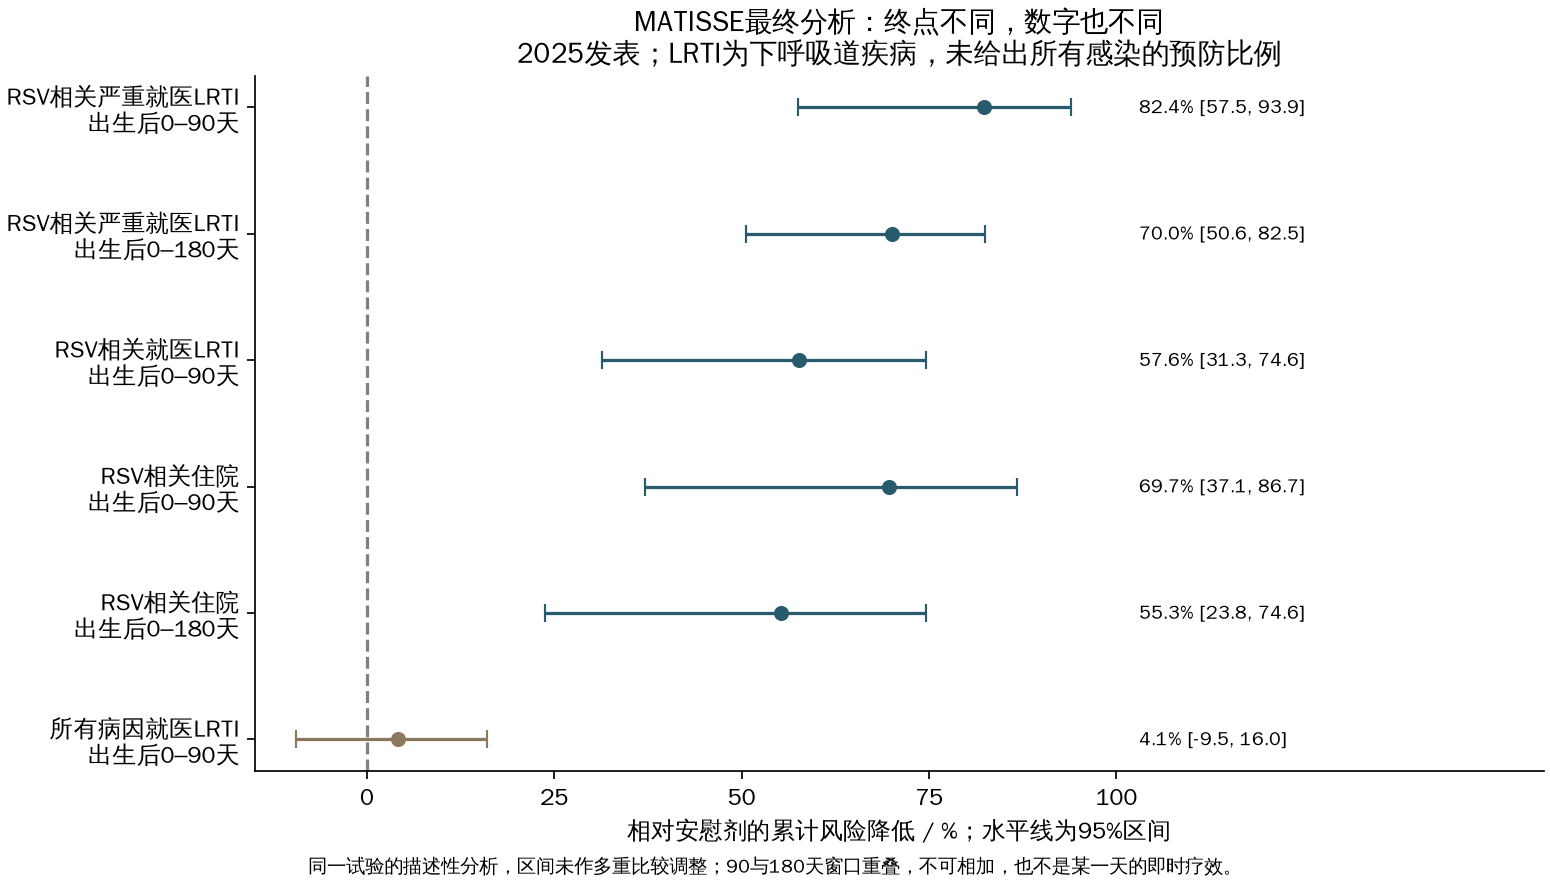
同一研究对RSV相关住院、严重RSV疾病,以及所有病因造成的下呼吸道疾病,给出的是不同数字。针对所有病因的就医下呼吸道疾病,90天估计及其区间没有显示明确降低;这并不推翻它对所测RSV严重疾病的作用。
图中90天和180天都是从出生起累计的窗口,彼此重叠。180天的70%不是第180天当天的即时保护率,更不能把两个数相加。最终分析的95%区间属于描述性分析,未作多重比较调整;原先主要分析使用更严格的区间与预设成功标准,不能用后来的较窄区间改写原来的检验规则。3
这些结果把母体免疫、抗体转移和婴儿疾病减少联系起来,但仍没有给每个孩子找到一个通用的血清保护线。出生时的高滴度、随后仍可检测到抗体,以及减少临床疾病,各自承担不同证据。
早产等安全结局,必须逐产品和人群核对
能够减少RSV疾病,并不自动回答全部妊娠和新生儿结局。与“母体疫苗”有关的研究也不是同一种产品反复做了几次。下面随机试验的两项百分比,依次为研究疫苗组与安慰剂组。
| 研究 | 早产结果 | 应如何理解 |
|---|---|---|
| MATISSE所用的双价RSVpreF,最终安全分析 | 5.7%与4.7%;风险比1.20,95%区间0.98—1.46 | 总体未达到明确差异的统计证据,但区间并未排除具有一定幅度的增加;部分亚组仍有不均衡 |
| 另一候选RSVPreF3-Mat的随机试验 | 6.8%与4.9%;风险比1.37,95%区间1.08—1.74 | 出现早产增多的信号,试验提前停止入组;不能移植成其他制剂的同一效应 |
| 法国2024年实际应用资料,2026年卷期发表 | 加权发生率比0.97,95%区间0.89—1.06 | 在其匹配人群和应用窗口内未见总体早产增加;观察性研究仍有残余混杂和小亚组限制 |
前两行分别来自不同产品的研究,第三行是实际医疗资料,不能把它们简单排列成产品安全榜。4 5 6
法国研究还处理了一个容易漏掉的比较问题:能在较晚孕周接种的人,首先必须持续妊娠到那一天。如果把她们在接种前的时间也算作“已接种”,就可能让接种组看起来人为更安全。研究按同一天、相近孕周进行顺序匹配,未接种者后来接种时再改变其随访状态,以减少这种时间偏差。6
这种设计使比较更可信,但没有让观察性资料变成随机试验。其实际接种时间主要处于孕期后段,对更早孕周、罕见结局或某些高风险人群,仍不能作同样精度的判断。MATISSE效力和安全后续分析也来自同一试验,不应计为两次独立试验重复。
提供被动保护之后,婴儿还能形成自己的应答吗
这是保护衔接的另一个关键问题:外来抗体减轻了早期疾病,是否也阻止了婴儿产生自己的免疫?回答需要同时看自身应答和后续疾病,不能只看一次总抗体测量。
2023年的Wilkins等研究利用婴儿nirsevimab试验中的血清资料。一个难点是,给药后测到的中和能力同时可能包含研究抗体、母源抗体和婴儿自己的抗体,不能直接说“中和读数很高,所以都是孩子自己产生的”。7
作者因此观察其他抗原读数,特别是nirsevimab本身不直接对应的post-F抗体变化。由于母源抗体本来会下降,判断自身应答时也不能机械要求相对初始高基线增加4倍:一个孩子出现了新应答,总读数仍可能低于原来的母源高值。研究用已确认感染者的资料,为这种下降背景建立了统计判定方式。
结果支持接受nirsevimab的婴儿仍能出现自身抗体应答。但这一发现有几项具体限制:只有部分婴儿有可用的配对血清;“发生血清反应”的界限依赖统计模型,并非所有隐性感染都由独立病毒学检查确认;研究抗体“测不到”也可能只是低于检测限,残余抗体仍可能贡献部分中和信号。7
因此,在这些试验样本中,被动预防没有把自然应答完全阻断;不能据此说所有免疫成分、强度和长期记忆都已经证明与对照完全相同。该研究Fig. 6a的一处样本量在2024年更正,本文已按更正版本核对。
更直接的后续证据来自MELODY第二季随访。两组在第二季前都没有再次获得研究抗体,仍按相同疾病定义观察。按方案定义的RSV相关就医下呼吸道疾病,nirsevimab与安慰剂组第一季分别为24/2009与54/1003;第二季分别为19/1944与10/967。第二季分母是继续接受相应随访的人,不能当成最初全部随机分组人数。8
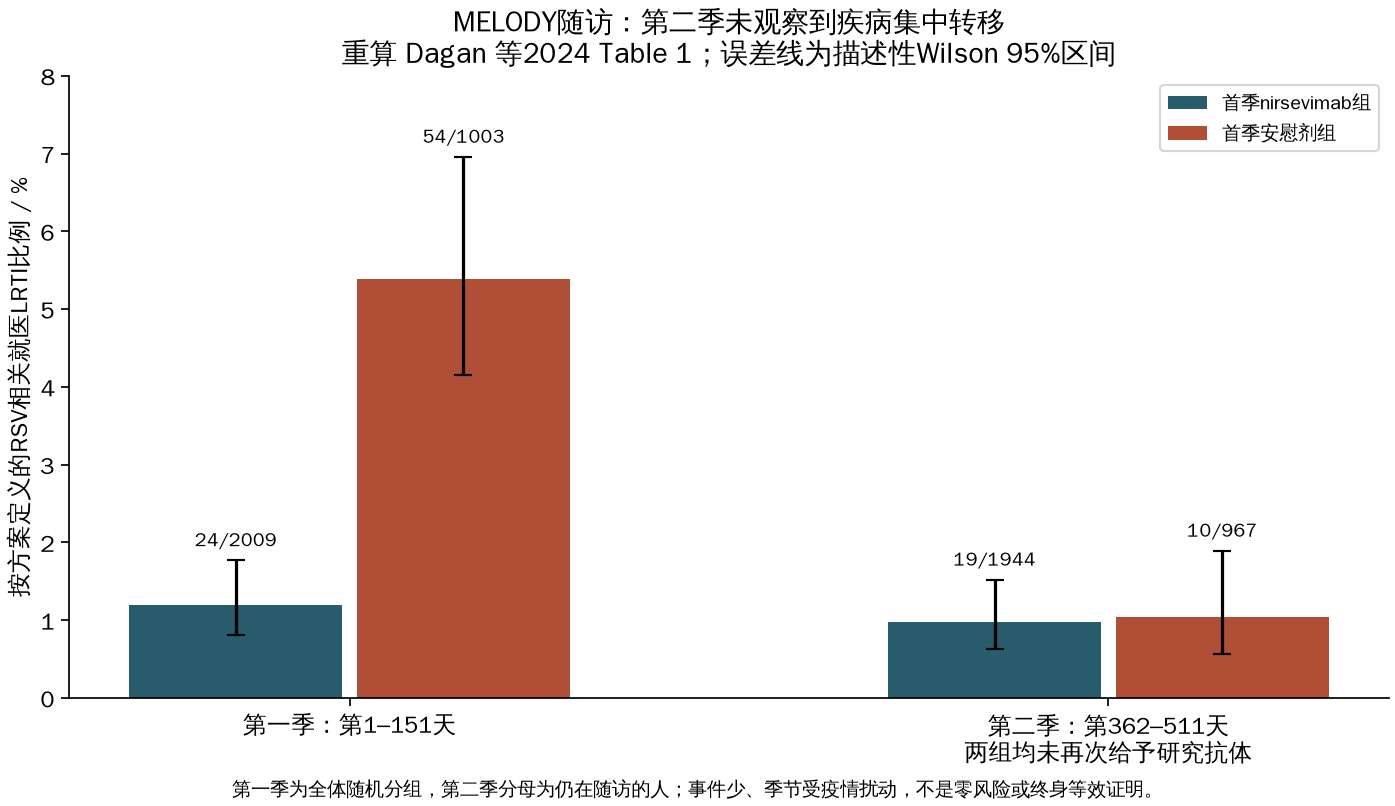
图按原表重新计算,区间是描述性二项区间。第一季疾病明显减少,第二季两组记录的比例接近,没有观察到明确的疾病负担集中转移。但第二季按此定义只有29个事件;本库粗算的风险比约0.95,近似95%区间约0.44—2.02,并不是证明两组终身等效的检验。疫情期间异常的RSV活动、随访流失及之后的年份,也限制了外推。8
血清分析与第二季随访回答不同问题:前者支持“仍能应答”,后者检查“后来是否更多生病”。它们都包含MELODY人群,不能计成完全独立的两次随机试验。
保护怎样接续,仍由几条过程共同决定
对本篇的问题,较稳的机制是:胎盘转移提供出生时的一部分保护基础;外来抗体随后衰减;婴儿的自身防御、发育与暴露经历继续改变。孕期免疫和婴儿直接抗体能够在不同环节增加早期保护,随机试验已经把这些路线与相应临床疾病减少连接起来。
还不能统一回答的是,每个孩子何时跨过某条保护线、母源与自身抗体各贡献多少,以及所有后续年龄和稀少结局是否完全不受影响。血清低谷、检测阴性和没有免疫保护不能互换;没有出现一项临床疾病,也不代表从未接触或感染。
母源抗体的自然下降在疫情前就存在。若要判断疫情防控是否改变了某个出生队列的母体抗体基础,仍需要同口径的母婴配对和临床资料,不能用出生后的正常衰减本身作证。系列前三篇关于保护测量、传播机制和中国历史归因的边界,在这里仍然适用。
理解这种衔接的价值,在于把可改变的环节找准:给足应答与转移的时间,在相关暴露期保有有效保护,并实际检查临床收益和后续结局。它不需要预设婴儿会经历一个所有防御同时消失的真空期。
计算与资料范围
代码位于 research/calculations/maternal_rsv_protection.py;可下载结果与参数、衰减示意轨迹、MATISSE报告值和MELODY两季重算。衰减参数为自选例子,MATISSE区间按论文报告值绘制,MELODY比例与粗区间实际执行计算;没有重新拟合个体资料,也没有推导个人接种或抗体剂量。
中国母婴队列在本篇按预印本使用;部分试验补充材料未取得,另一候选疫苗的早产数字只采用已核原始试验摘要。原件、版本、更正、实际读取范围与剩余限制均在来源记录中登记。这里比较机制和证据,不提供涵盖全部国家、产品与临床情形的使用指南。