如果某个研究说,孩子的一项抗体读数比疫情前低了,我们很容易把它听成:“这些孩子的免疫力变差了。”接着又把它与后来儿科就诊增多接起来,形成一条看似完整的解释。
这条解释有可能包含真实机制,但中间隔着几道问题:测的是哪一种抗体,它在什么位置,能否阻止病毒进入细胞,测量是在感染前还是感染后,最后观察的是感染、发病还是住院?同一个“抗体下降”,沿着不同路径往下走,可以得到很不一样的结论。
呼吸道合胞病毒(RSV)很适合把这些问题讲清楚。它能够反复感染人,但感染后的结局并不总是相同;研究者既能测血液和鼻腔中的抗体,也有成人受控感染、儿童随访以及直接给予抗体的随机试验。本篇把这些证据接起来,研究一项免疫读数如何成为有用的保护信息,以及这条连接在哪里仍然有限。1
先把“保护”分成几个实际结局
RSV接触到呼吸道,并不保证建立感染;建立感染,不一定造成明显症状;有了症状,也不一定发展成需要就医的下呼吸道疾病。不同研究可能停在这条过程的不同位置。
这意味着,“保护得好”至少有三种具体意思:较少出现可检出的感染;感染后病毒复制更少、清除更快;较少发生有临床负担的疾病。评估抗体时,必须先知道研究在回答哪一种。
比如,一项试验只在婴儿出现需要就医的呼吸道疾病时采样,发现给予抗体后这种疾病减少了。这个结果可以证明该干预降低了所测疾病风险,却不能直接给出无症状感染是否减少。相反,一个每周主动采样的社区研究能够多发现一些轻微或无症状感染,但如果严重病例很少,就不适合估计抗体对住院的保护阈值。这不是哪种研究天然更高级,而是它们观察的结局不同。6 7
对RSV而言,必须把两件事同时保留:反复感染不等于过去的免疫经历毫无作用;没有发展成重病,也不等于病毒没有进入过呼吸道。
一项抗体读数,至少带着靶点、位置和功能三个条件
抗体可以识别病毒的某个结构,但“能结合”与“能在实验中阻止病毒感染细胞”不是同一个测量。
RSV表面的F蛋白参与病毒与细胞膜的融合。它有融合前和融合后的不同形状,常写作pre-F与post-F。一部分抗体识别两种形状共享的部位,另一部分主要识别其中一种形状。若只把所有“抗F抗体”加成一个数,就可能把功能不同的抗体混在一起。
2015年Ngwuta等做过一个很直观的实验:先用不同形状的F蛋白从同一份血清中吸走相应抗体,再测剩余血清阻止RSV感染培养细胞的能力。在121份可作中和分析的样本中,用pre-F吸附后,中和滴度的几何均值由511降至9;用post-F吸附后则由511降至362。它说明,在这组样本及实验体系中,能识别融合前结构的抗体承担了大部分中和活性。2
这个实验比“抗体高的人似乎更健康”多走了一步:研究者实际移除了某一部分抗体,再观察功能变化。但它仍然是在血清和培养细胞中做的,不能把实验滴度直接当成人体鼻腔保护的门槛;样本年龄从7岁到93岁,也没有直接覆盖婴幼儿。
| 常见测量 | 实际回答什么 | 仍需另行核对什么 |
|---|---|---|
| 血清结合抗体,例如抗pre-F IgG | 血清中有多少抗体能够结合指定抗原 | 其中多少有中和或其他效应,能否到达相关组织 |
| 中和滴度 | 血清或分泌物稀释到什么程度,仍能抑制指定病毒和细胞体系中的感染 | 体内的浓度、病毒株、黏膜环境和疾病结局 |
| 鼻腔抗体,例如抗pre-F IgA | 采样时呼吸道局部有多少相应抗体 | 采样稀释、抗体功能、维持时间与实际暴露 |
| 记忆B细胞或T细胞 | 某种细胞群是否存在,能否在相应检测中应答 | 它们位于哪里、响应是否及时,以及是否改变临床结局 |
这里的IgG、IgA是抗体类别,不是“强免疫”和“弱免疫”的两档。IgG在血液中很丰富;IgA在呼吸道等黏膜表面有特殊作用。两处并不是完全隔绝,但也不是同一个浓度均匀的水池。鼻腔有局部的分泌、转运和清除过程,血清检测只能提供其中一部分信息。1
同样需要留意实验单位。一个研究的“任意单位每毫升”(AU/mL),另一个研究的稀释倍数,再另一个研究的仪器信号,并不能只换个小数点就排在一条通用刻度上。只有靶抗原、校准品、检测平台、样本处理和功能终点能够对齐,才谈得上跨研究比较。
抗体下降与记忆消失,中间隔着生产过程
一次感染后,抗体增加需要细胞生产。短期内,一部分B细胞分化为大量分泌抗体的细胞;随后急性反应收缩。一些抗体来源可能继续维持,一些记忆细胞则保留再次应答的能力。正在流动的抗体、持续生产抗体的细胞和等待再次动员的记忆细胞,是不同对象。
用一个最简单的收支关系,可以看出为什么不能把它们等同:
这里的$A$是某个位置的抗体量,$P(t)$是进入该位置的生产或补充,$\delta A$是清除。即使还有记忆细胞,只要当下补充减少,抗体也可能下降;反过来,测到较多抗体,也不必然说明长期记忆特别强。这只是帮助理解的收支式,不是本篇拟合出来的RSV细胞模型。
Habibi等在2015年的成人受控感染研究中,观察到抗体分泌细胞的急性反应在接种病毒后约第10天达到高点,到第28天已难以在其外周血检测中找到;感染者的血清和鼻腔抗体短期上升,一部分返回随访者在6至12个月后又接近各自的感染前水平。与此同时,RSV特异性的IgG记忆B细胞可以增加。抗体读数回落与某类记忆形成,能够同时发生。3
不过,这项研究也没有证明RSV留下了一套完整而持久的黏膜记忆。研究者在17名满足检测条件的感染者中,没有检测到相应的外周血IgA记忆B细胞增加;换用另一种体外刺激方法仍未解决。与自然流感感染后的样本比较,这提示RSV相关IgA记忆值得进一步研究。
这里需要守住观察范围:外周血没有检出,不等于所有呼吸道组织中都没有;体外刺激和采样时点也限制了结论。流感比较组只有7份可分析样本,且来自住院患者,不能当作与轻症RSV挑战完全匹配的实验。把这一结果解释为“RSV必然清空黏膜记忆”,会比实际证据多走好几步。
长期观察也提示,抗体不同功能未必同步变化。加拿大一项追踪育龄女性医护与学校工作人员的研究,在RSV流行恢复后的两个季节看到中和活性和抗体依赖的细胞吞噬功能逐渐恢复,而结合抗体和亲合强度的变化并不完全相同。但作者明确说,这项研究没有建立这些指标对儿童临床结局的保护关系;成年人的两年变化不能直接变成儿童或其他地区的“恢复时间表”。9
把接触机会固定后,鼻腔与血液的区别仍然存在
自然环境中,抗体较多的人可能接触病毒的机会也不同。成人受控感染研究可以缩小这方面的差别。
Habibi等给61名健康成人通过鼻内接种相同剂量的RSV。34人满足研究定义的感染标准:接种后第2至10天内,在鼻腔样本中反复检出病毒;其中23人出现符合定义的感冒症状。这样可以把“接种的病毒残留了一点”与后来持续检出的感染尽量分开。3
感染前的鼻腔RSV特异性IgA与随后未感染相关。其滴度每增加一倍,保持未感染的优势比约为1.9,95%置信区间1.2至3.4。优势比不是概率倍数:纯粹作换算示例,若起始未感染概率为50%,优势比1.9对应约65.5%,并不是100%。这里50%是示意起点,不是研究给每个人预测的风险。血清中和滴度的相应优势比为1.6,区间0.9至2.9,没有达到该研究的统计显著标准;这个宽区间也不支持把血清抗体的作用判成零。
同一研究团队的另一项成人挑战分析,还取得了部分志愿者的下呼吸道样本。49人中24人接受支气管镜相关取样,后来感染者中,感染前气道内RSV特异性CD8记忆T细胞比例较高,与较低的累计症状和病毒负荷相关;外周血中的相应测量没有表现出同样的关系。4
这些成人研究支持一种有用的过程解释:位于入口附近的现成抗体,可能更早影响病毒能否建立感染;感染建立之后,局部细胞应答还可能影响病毒控制与症状。它们并没有通过在人身上选择性移除某类T细胞来证明因果,也不是婴儿重症的直接实验。两篇来自同一团队和同类挑战研究,本文未核清受试者是否重叠,因此不把它们计成两次独立复现。
更准确的理解因此是:保护有空间位置,也有发生先后。一次抽血很难替代整个过程。
儿童疫情前后的数据,到底测到了什么
2025年Dokal等利用欧洲医院研究中保存的儿童样本,比较防控措施实施前后,对化脓性链球菌及多种呼吸道病毒的抗体反应。下面只看其中RSV这一部分。5
研究使用的是不同时间抽取的儿童样本,而不是把同一批孩子从疫情前连续追踪到疫情后。病毒抗体分析主要取自两时期重叠的诊断类别,包括无发热对照、疑似病毒感染和轻微疾病;还排除了当次检出RSV的部分样本,以减少正在感染对抗体读数的直接影响。补充材料比摘要更清楚地说明了这些选择。
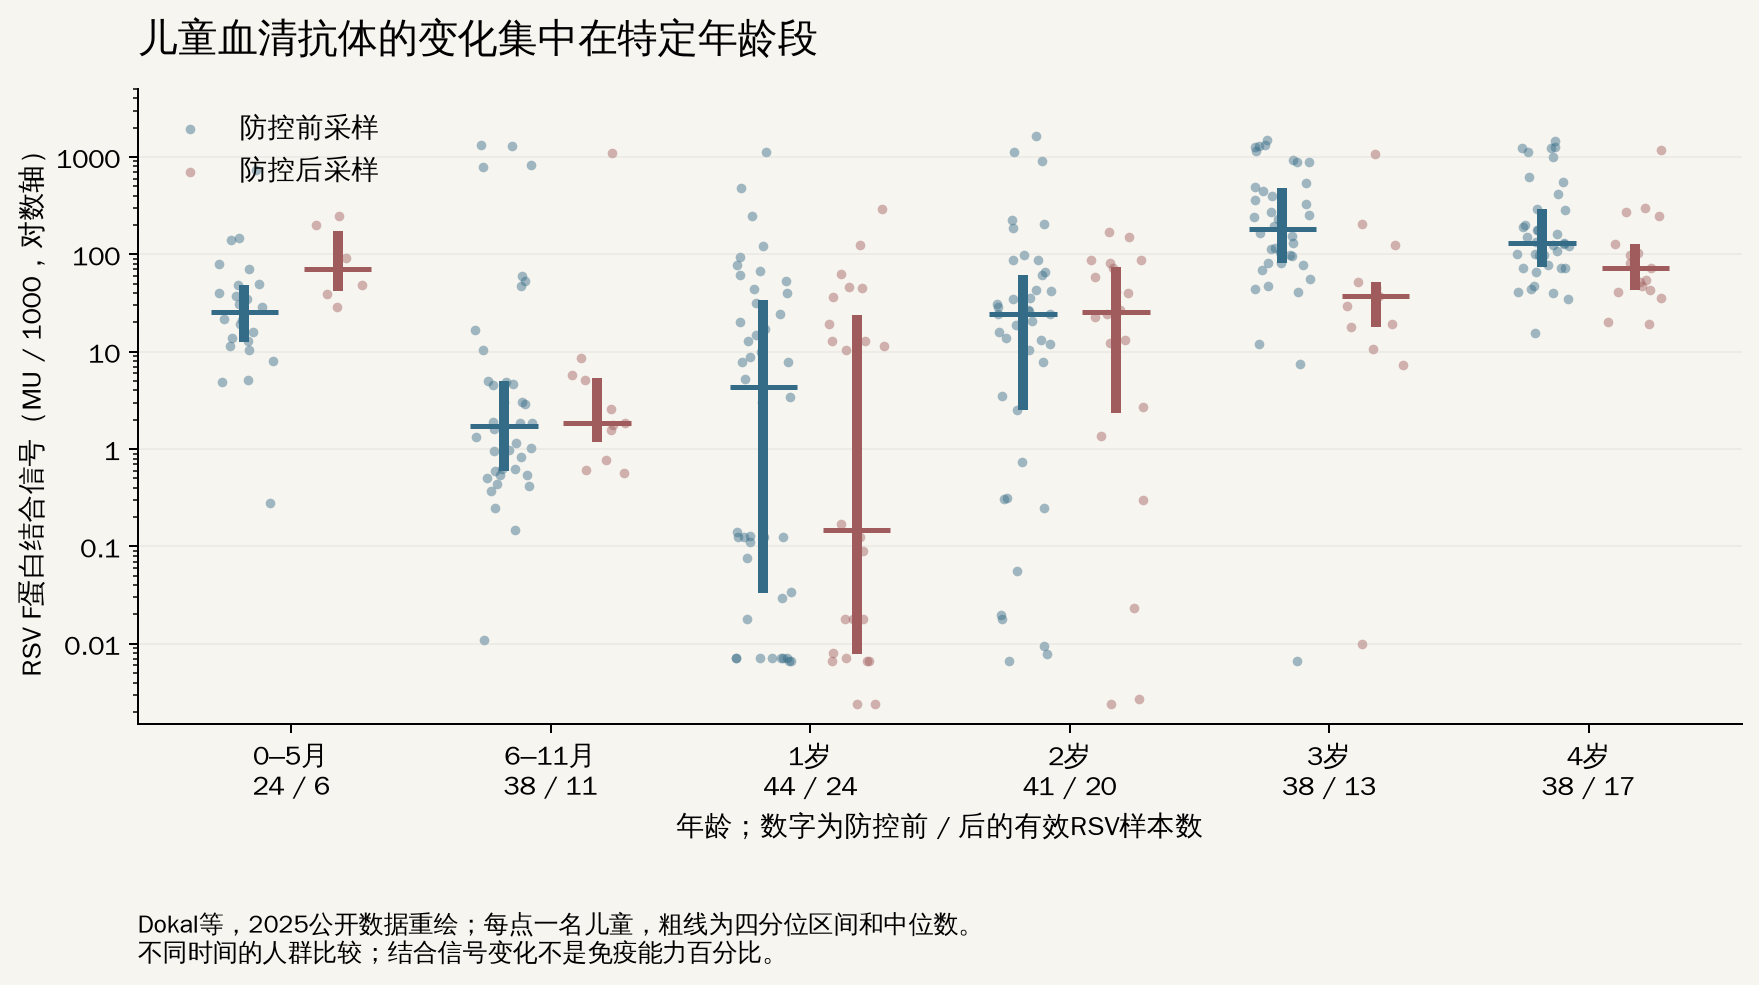
图1:本库从Dokal等公开的补充数据重绘314份有效RSV读数。每一点是一名儿童,纵轴使用对数刻度,线段显示四分位区间和中位数。原始研究与公开数据为CC BY;本图重新绘制,不是原图截图。
三至四岁合并组中,防控前76名儿童的中位数为141.8,防控后30名为49.6,单位均为原研究的MU/1000。本库从公开数值复算得到141.782和49.604;合并组的未调整秩和检验也与论文所报的显著差异相符。
后一个中位数约为前一个的35%,**这个35%是结合信号中位数之比,不是“还剩35%的免疫力”,更不是“感染概率增加65%”。**要得到后两种说法,还需要建立读数与感染或疾病结局的对应关系。
图中也能看到,变化没有在所有年龄段朝同一方向发生。最小婴儿组样本很少,其读数甚至呈相反方向;一岁组的分布很宽,二岁组中位数相近。补充材料的调整模型中,RSV相关差异主要在三岁组获得统计支持,四岁组的额外交互项并不显著。不能把合并组的结果扩成每一个年龄的确定效应。
这组数据让“某些孩子较少经历RSV,导致特定抗体形成或维持不同”的解释有了可观察的依据。但它没有同时测鼻腔保护和细胞记忆,也没有用这些孩子感染前的抗体去预测他们随后住院的风险。家庭活动、样本构成及其他随时间变化的因素也未完全消除。因此,它支持特定年龄人群中的特定抗体差异,对完整因果链仍需其他研究补足。
2026年的社区研究,把两个位置放在同一批人身上比较
Hodgson等2026年8月发表的研究来自冈比亚的家庭队列:342人、52户家庭,随访12个月,每周采集呼吸道样本;血清与鼻腔分泌物主要在入组、约半年及一年时采集。它比仅在生病就医时才检测,更有机会观察轻微或无症状感染。6
研究记录了76人中的81次PCR确认感染。作者又在假定PCR漏检一定比例的条件下,使用多个抗体指标的上升识别可能漏检的感染者;基准情景增加18人,合计94人。这里的“76人”与“81次”不能混为同一个分母,“补计18人”也不是又发现了18份PCR阳性样本。
研究以模型把较稀疏的抗体测量接成随时间变化的轨迹,再估计暴露时点的抗体和感染之间的关系。它还用同户其他感染者的数量作为暴露强度的代理,允许存在少量家庭以外的感染机会。这样做能够利用更多信息,但结果也依赖这些假设。
在作者公开的图3数据中,针对pre-F的鼻腔IgA模型AUC约为0.721,血清IgG约为0.657,同时使用两种指标约为0.723。AUC描述模型区分感染与未感染状态的能力,0.5附近意味着接近随机排序;0.72不能读成“有72%的人获得保护”。两种指标合用在该份公开输出上的AUC增量约0.002,也不能写成已经证实很大的临床增益。
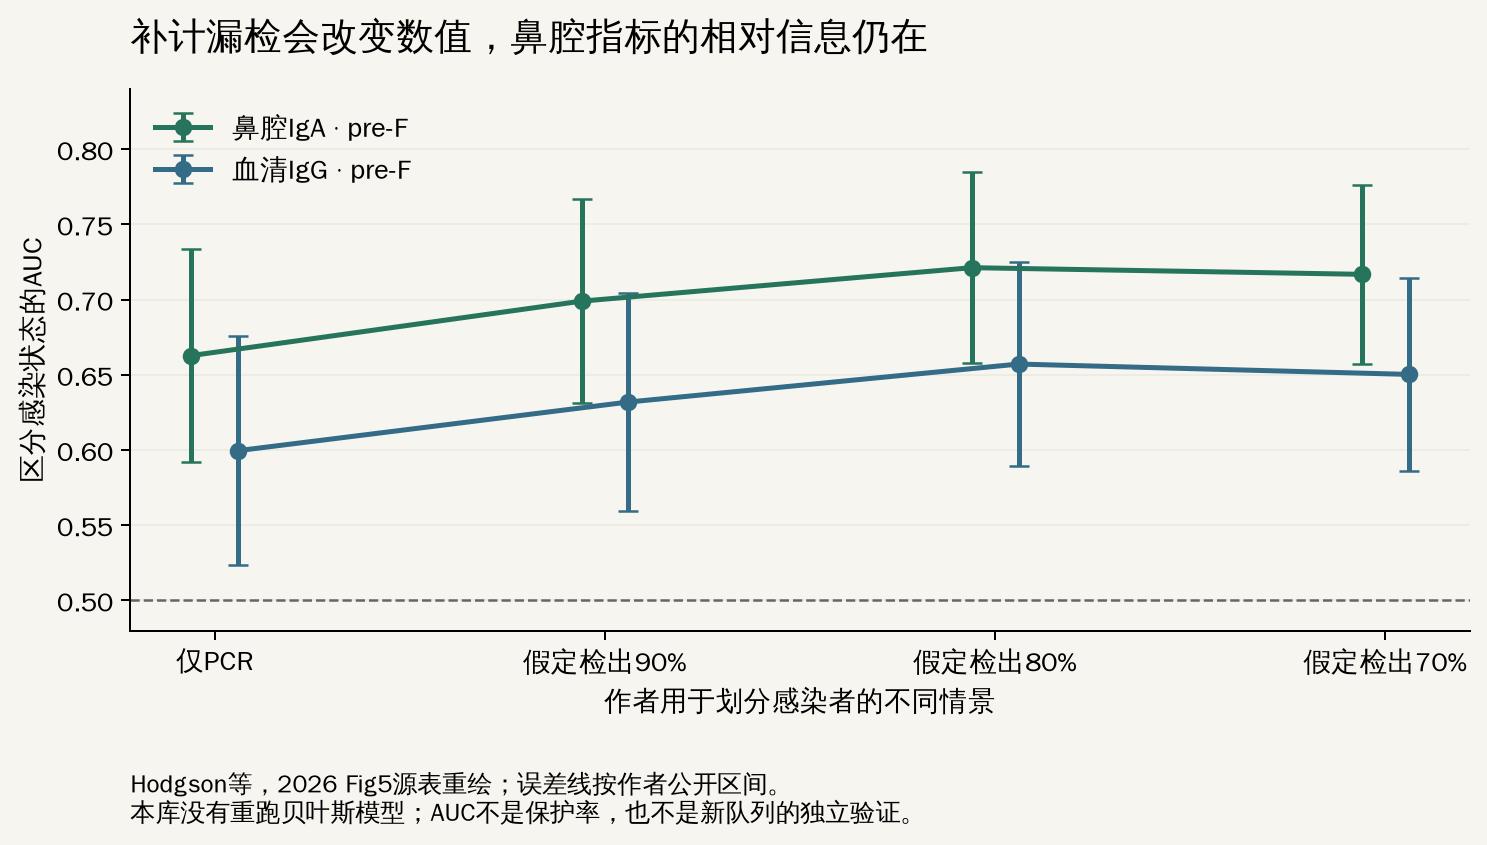
图2:本库按原研究Fig5公开模型结果重绘,没有重跑贝叶斯拟合。仅使用PCR确认感染时,鼻腔pre-F IgA与血清pre-F IgG模型的AUC分别约0.663和0.600;加入血清学推断后数值改变。误差线来自作者公开表。两种指标的差异并不表示其中一个可以独自可靠诊断个人保护。
这一比较的价值,在于它不只依赖一个漏检设定。只用PCR结果,鼻腔pre-F IgA仍比对应血清IgG提供更多区分信息;改变漏检和家庭暴露假设,也保留了这条相对关系。但它不表示pre-F在所有统计排序里都独占第一:例如PCR-only情景中,鼻腔post-F模型的留一预测指标略好,pre-F模型的AUC略好,综合排序接近。本文因此把较稳的结果表述为“鼻腔抗体提供了血清读数之外的信息”。
还要注意,作者的留一法是研究模型内部的检验,感染时点抗体仍通过前后测量重建,部分感染标签又来自抗体变化。PCR-only敏感性分析减轻了对补计感染标签的依赖,但不能替代在另一批人中事先测量、固定预测规则后再随访的外部验证。
为了直观看两个位置是否真的能互相替代,本库另取公开表中的首次访视读数,按原表年龄字段重新作图:
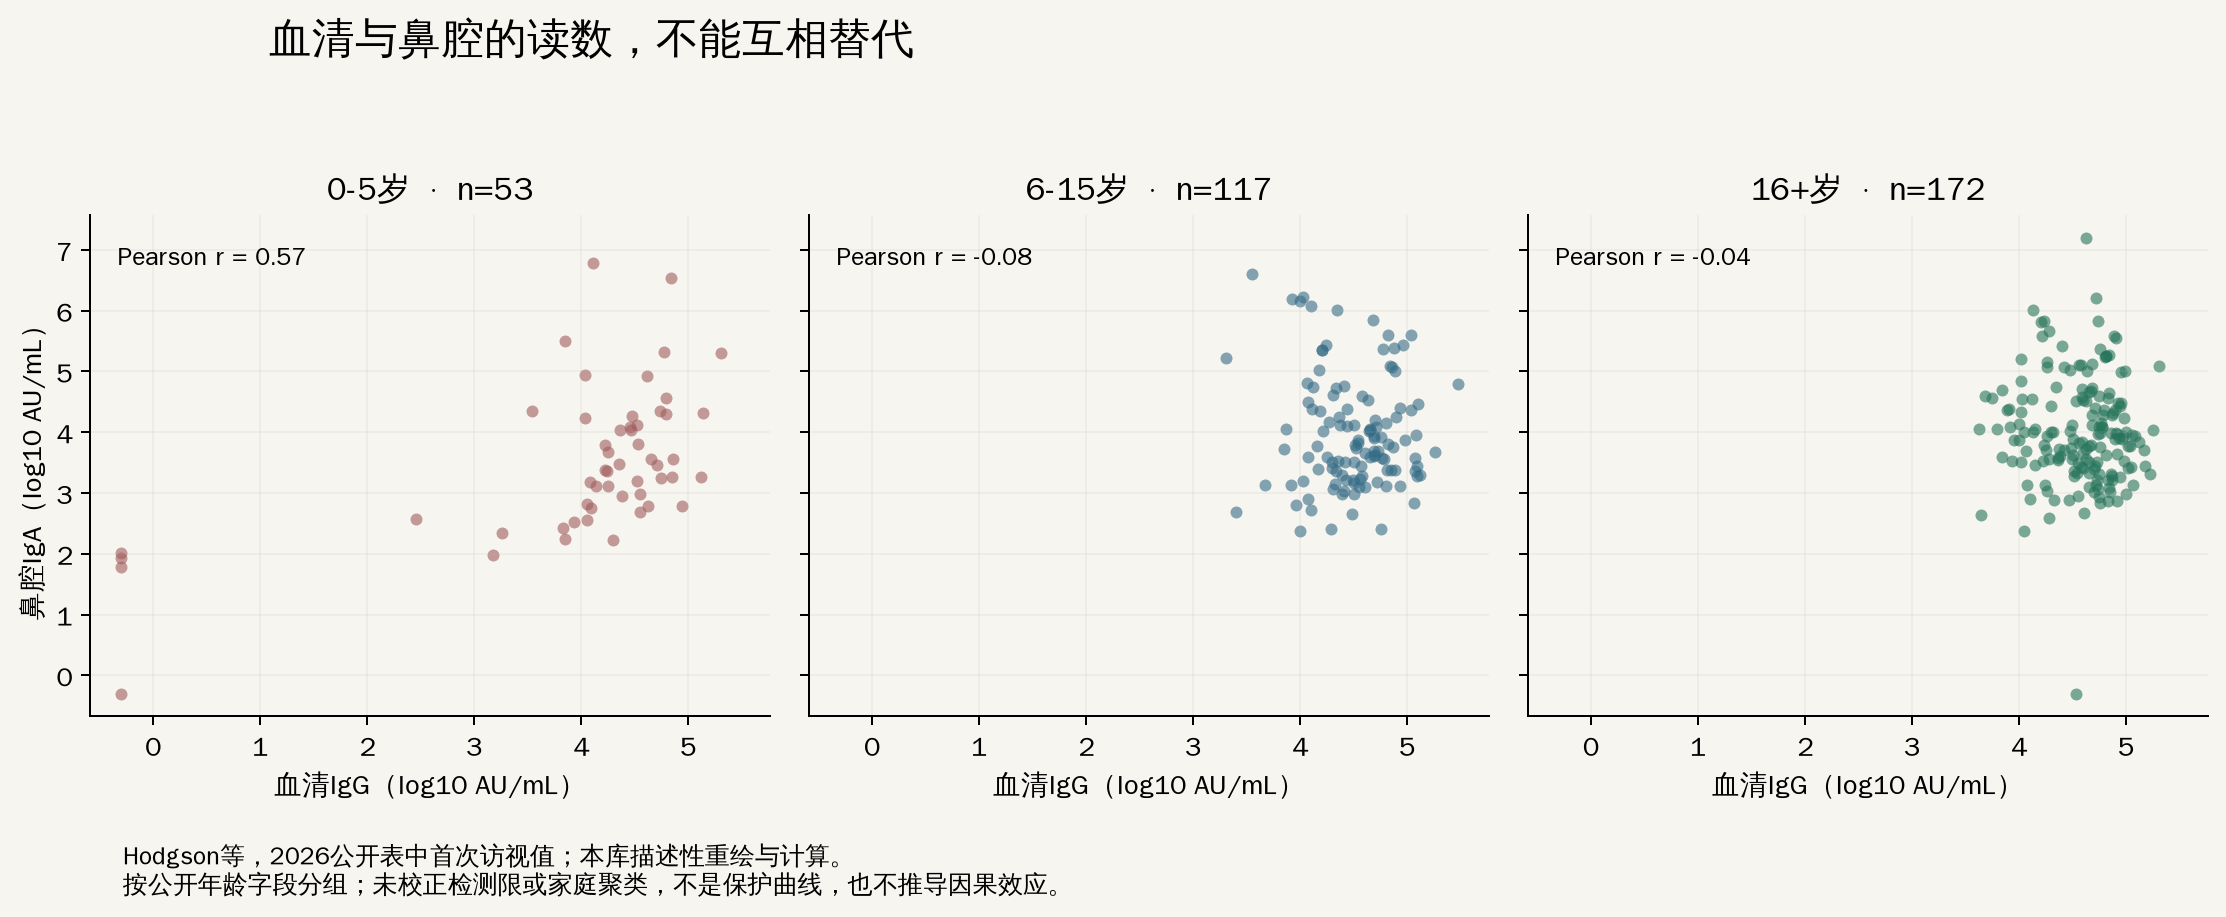
图3:本库对原研究公开的首次访视数值作描述性分析,每点同时包含一个人的血清与鼻腔读数。0–5、6–15、16+为源表年龄分组,人数分别为53、117、172。原文图4的最小年龄组计数与此表不同;本图保留源表分组,不据此重建作者的年龄模型。原数据为CC BY 4.0。
在对数读数上,三个组的Pearson相关系数分别约为0.57、−0.08和−0.04;全体合在一起约为0.26。最小年龄组有一定共同变化,较大年龄组却不是“血液多,鼻腔就按同样比例多”。它也提醒我们:整体相关性低,不代表每个年龄组都一样低。
这张图只描述公开读数,未重新处理检测限,也未校正家庭聚类、暴露或组内年龄。它与作者在模型估计的感染时点计算的相关矩阵不是同一计算。其用途是帮助理解两个位置的测量差别,不能拿散点位置直接划出“安全区”。
尤其不应把论文给出的年龄特异性抗体阈值当临床标准。文中“年轻儿童需要约43倍滴度才能达到相同保护”的说法,来自特定模型中的50%保护点;它不是体外中和实验直接证明儿童抗体弱43倍,也不是在另一组儿童中确认的通用门槛。儿童样本较少、任意单位、对暴露的间接估计,以及未直接测到的抗体品质和组织因素,都限制了这个数的外推。
从能预测保护,走到能通过干预获得保护
如果只是自然状态下“抗体高的人更少感染”,抗体可能是保护因素,也可能部分代表以前的感染经历、不同暴露或其他未测到的防御。要往因果关系前进一步,可以直接改变抗体,再比较结局。
MELODY随机试验给健康的晚期早产及足月婴儿注射长效单克隆抗体nirsevimab或安慰剂。在2022年发表的主要分析中,150天内需要就医的RSV下呼吸道感染分别发生于12/994与25/496名婴儿;原文采用年龄调整及缺失值插补后,估计疗效为74.5%,95%置信区间49.6%至87.1%。7
这提供了比自然抗体相关更直接的证据:**给予一种特定抗体,能够降低特定人群在特定时间窗内的疾病风险。**不过,这个结果不是所有RSV感染减少了74.5%。该次主要分析中的RSV住院结局事件较少,估计区间跨过无效应点,不能把它与主要终点混写。本篇用这项试验说明因果证据的类型,不据这一早期分析汇总当前全部免疫预防效果。
从原始人数直接计算,两个组的粗风险分别约1.21%与5.04%,粗相对下降约76.0%。它与论文74.5%的差别不需要猜测成数据错误:论文已明确使用调整与插补模型,两个数采用了不同计算口径。本库的粗算只核对分母和量级,不称为重现作者的正式疗效分析。
一个尤其值得并读的结果是Narsyn试验。研究者给晚期早产婴儿每天使用鼻腔palivizumab或安慰剂,想在病毒入口提供保护。268人入组,但其中一个季节RSV几乎没有流行,排除该季节及结局缺失者后,主要疗效分析实际包括94人。两组检出的RSV感染分别为18/47与11/47,调整优势比2.2,95%置信区间0.7至6.5,未显示保护,试验按预定中期分析停止。8
这不能证明鼻腔抗体无用,也不能证明这种用法必然增加感染。它测的是特定IgG单克隆抗体、剂量、给药频率和人群,不能直接等同自然存在的分泌型IgA。短暂驻留、实际到达的局部浓度及其他感染入口,都可能有关;原试验没有测出足以确定失败原因的鼻腔药代数据,不能把某一种解释写成已证实。
此外,虽然试验把主要终点称作“任何实验室确认的RSV感染”,实际采样主要由持续呼吸道症状触发;它与冈比亚每周主动采样对无症状感染的捕获并不相同。两项试验也不是不同给药途径的头对头比较。这个反例所限定的是从“局部抗体与保护相关”直接跳到“把某种抗体滴进鼻子就一定有效”的推论。
“免疫缺口”在生物学上可以成立到哪里
现在可以把证据接成一条有边界的解释。
特定病原体的感染经历,会影响针对它的抗体和记忆形成;部分现成抗体会随时间变化。某些儿童人群在较少流行的时期,确实出现了可测的RSV抗体分布差异。与此同时,针对关键靶点的功能抗体可以参与保护,而血清、鼻腔和细胞层面的测量提供不同信息。
这些发现使“人群针对某个病原体的保护状态发生变化”成为可以调查的科学问题。但要从这里进一步解释一场流行,还需要知道哪些人实际暴露、不同年龄的接触方式怎样改变,以及保护差异是否足够影响感染或疾病结局。仅凭一次血清调查,不能算出后来就诊高峰中有多少病例由它造成。
本篇尤其不支持用一个总的“免疫力分数”描述整个群体。某一病原体的某项抗体较少,可能有意义;它没有同时告诉我们对其他病原体的保护,也没有测完局部抗体、细胞记忆、组织状态和暴露条件。反过来,承认测量有限,也不意味着那些已经观察到的特异性差异可以忽略。
要让后续证据更有区分力,最有帮助的是:在同一批儿童身上,感染前同时采集血液与鼻腔样本,记录接种和感染经历,主动检测感染,并分别随访症状与严重结局;跨季节或跨队列检验预测规则。若进一步进行干预,还要确认改变的是何种抗体、它实际到了什么位置、维持多久,以及改变了哪个临床结局。
对读者最有用的判断方式,是把“抗体变少”还原成一句完整的话:**谁、在什么时候、哪一个位置、对哪一个靶点的什么读数变少;这个变化已经被证明对应了什么结局。**补齐这些条件,“免疫缺口”才能从一个有吸引力的比喻,变成可以测量、比较和继续追问的对象。
本篇属于“感染经历与群体免疫”系列的第一题。后续传播中断课题研究这些保护状态怎样进入群体传播过程,中国实证课题比较具体历史中的多种驱动因素,母婴保护课题研究出生最初几个月的保护衔接。它们需要各自的证据,不由本篇提前给出结论。
本篇的复算脚本位于库内research/calculations/rsv_immune_protection.py,可下载计算结果、儿童抗体数值、社区首访配对读数和模型汇总。三张图分别采用公开儿童数值、社区首次访视数值和原作者模型汇总;未重新检测生物样本、重跑整套贝叶斯模型,或从自然抗体相关中估计干预的因果效应。