装在同一件货物上,不等于一直同样用力
细胞里的囊泡、细胞器和一些大分子复合体,会沿微管运输。微管有结构上的正端与负端;本篇涉及的KIF1C倾向向正端运动,细胞质dynein复合体倾向向负端运动。
正负端是轨道本身的方向,不必等同于画面中的左右,也不总能直接换成细胞的“外面”和“里面”。如果轨道方向改变,或者货物换到另一根微管上,可见的运动方向也会改变。
同一件货物上可以同时出现两类马达。直觉上,这像两队人向相反方向拉车,但这里至少有三种不同的状态:马达挂在货物上,却没有抓住微管;马达短暂或较弱地接触微管;马达与轨道持续接合,产生主要牵引。
**蛋白在场、接上轨道和真正承担牵引,是不同的事实。**因此,运输方向不仅取决于有多少马达,还取决于它们当时处于什么状态、怎样被连接,以及受力后是否容易脱离。
2025年的一项重构实验特别有启发:KIF1C不但可以向正端运输,还能帮助负向的dynein开始活动、延长它的运动。更有区分力的是,其中一部分帮助不需要KIF1C的运动头部。3
先分清“开始动了”和“走得更远了”
几种常见指标回答不同问题。
| 指标 | 它主要告诉我们什么 | 不能单独推出什么 |
|---|---|---|
| 着陆率 | 单位轨道长度和时间内,出现多少接轨事件 | 每个事件都能持续移动 |
| 过程性运动事件量 | 有多少事件满足持续时间与位移门槛 | 马达的分子结合速率已经确定 |
| 轨迹平均速度 | 一段轨迹的行程相对于观察时间多快 | 每一次机械步进都更快 |
| 行程 | 在所用定义下走了多远 | 一定是同样大小的净位移 |
| 在轨停留时间 | 可见复合体在轨道上留了多久 | 某个单独马达一直没有松手 |
| 方向与换向 | 按指定规则,轨迹向哪边走、是否有明显反向段 | 每个微小后退步都已被计为掉头 |
2025研究的着陆分析包含被追踪的静止事件,而FHF条件下另做的“过程性事件”分析排除了静止与扩散事件。两者不能因为都在数点,就合成一条不加区别的“马达活性”。作者在评审回复中也专门解释了这个区别。35
真正的机械拔河,为什么不一定把货物永远卡住
马达受力之后,并不是永远抓住不放。如果一侧已经处于不利受力状态,其中一个马达先脱离,剩下同方向马达分担的负载可能进一步增大,又更容易脱离。这个反馈可以使一侧很快失去接轨成员,让另一侧开始较快运动。1
因此,“同时有两种相反马达”并不必然意味着长期静止。2008年的经典模型已经说明,仅通过共同货物传递机械力、再加上随机结合与负载依赖的脱离,就可以形成单向段、停顿与随机换向。
本篇用一个小模型讲清这条链。假设货物上各有两个正向和负向马达;真正接在轨道上的数量$n_+,n_-$会变化。给定一个接轨组合,先按力平衡计算共同受力与速度,再让马达随机结合、脱离。
示例使用的脱离规则为:
负向侧同理。$F$是双方通过货物传递的总对抗力,$F_d$控制脱离对负载多敏感。这里采用同一侧平均分担负载的近似;真实马达的负载响应可以依赖方向、构型和配件,并不都遵循这一条指数规律。
本库实际解了全部九种接轨状态的转移矩阵。保持其他条件相同,关闭“负载促进脱离”这一反馈时,只有一类马达接轨的时间比例约为1.64%;加入较强反馈后,这个比例约为95.7%。后一种情况下,大部分时间由一侧主导,仍可能由随机事件换到另一侧。
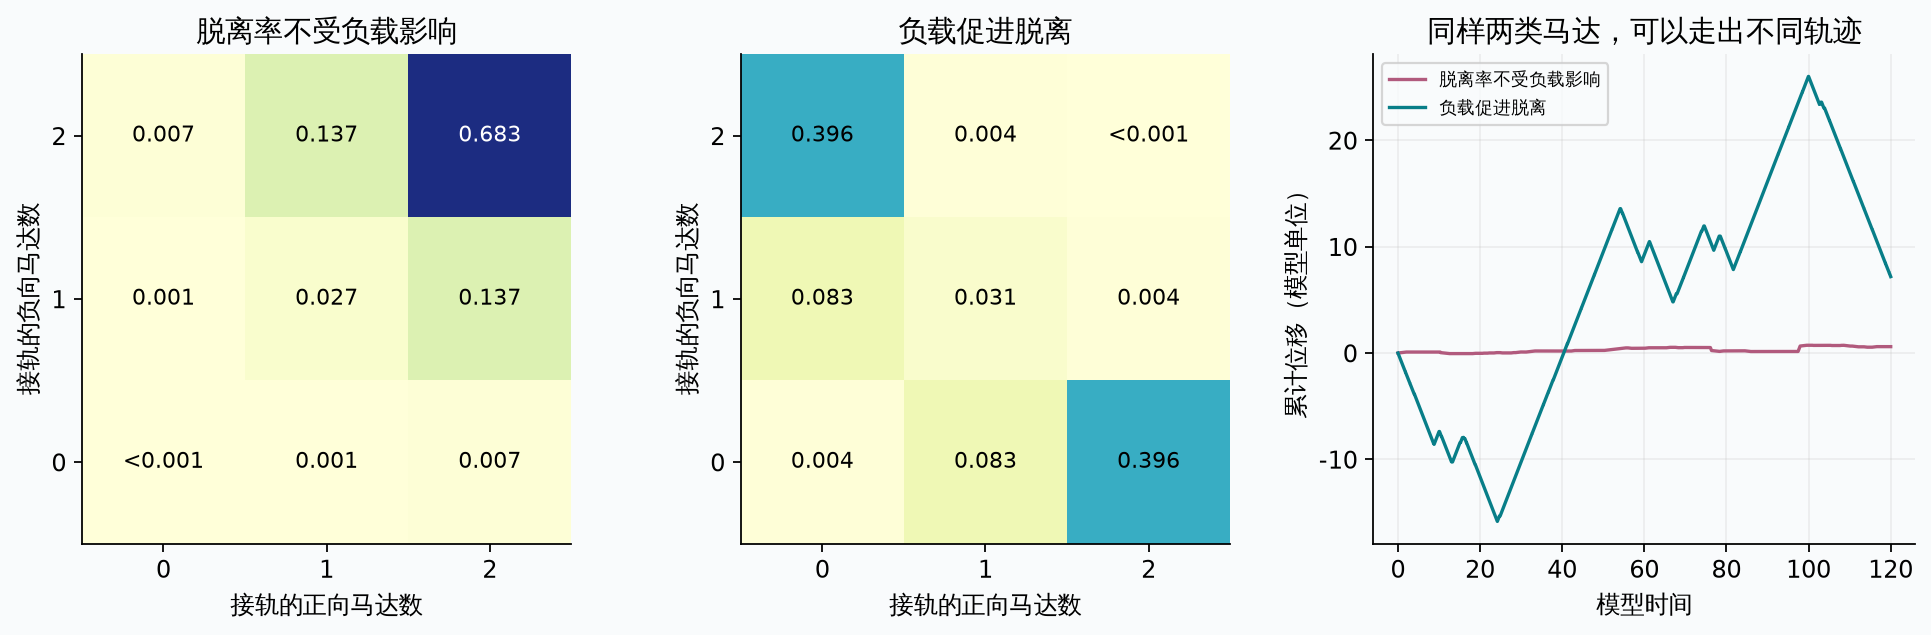
两个例子的长期平均有符号速度都接近零,因为正反方向完全对称。但一个大部分时间接近停滞,另一个不断进行快速的正反向运动。平均净位移相同,并不说明运输过程相同。
这个小模型还假定完全松手后,货物仍留在轨道附近,有机会重新结合;它没有描述三维细胞质中的扩散与重新寻找轨道,也没有提供真实细胞的目的地选择规则。
一类叫dynein的马达,也没有一个固定不变的“拉力值”
机械比较还取决于马达是否处于合适的复合体中。
2016年的实验把人dynein与dynactin、BICD2的一段激活片段组合,形成DDB复合体。在光镊实验中,作者测得这种活化复合体能产生约4.3 pN的阻滞力。把它与一个kinesin连接之后,也能明显拖慢对方,部分复合体还向负端运动。2
这个结果的重要性,不是给所有dynein规定4.3 pN的固定属性,而是说明配件和活化状态能改变我们拿来比较的机器。不能把早先某种纯化条件下较弱的dynein,与另一个条件下的kinesin直接相比,再从名字推出需要几台才能赢。
光镊的力来自位移与经过校准的陷阱刚度;原研究还按持续的平台和随后的释放来定义阻滞事件。这是特定测量条件下的力学证据,不是本篇重新做过的测量,也不是对所有运输复合体的标定。2
2025年的全长dynein结构研究进一步显示,ATP反应位点、连杆状态和微管结合部分之间存在耦合。结构为这些动作的可能路径提供约束,但不同构象的照片数量不能直接当成细胞内各阶段持续时间的测量。6
2025年的新对照:没有运动头部,也能帮助对方着陆
Abid Ali及合作者把dynein、dynactin、HOOK3和KIF1C等人源蛋白组合起来,用单分子荧光显微成像观察它们沿固定微管运动。这里观察的是重构蛋白复合体,尚不是膜囊泡穿过完整细胞的全过程。3
HOOK3是一种适配蛋白,能够把两类相反方向马达组织到同一个复合体中。实验用不同荧光标签追踪组分的共同运动,并在每次实验后用KIF1C检查微管极性,减少把混合方向的轨道误判为马达换向的风险。
公开源表包含三次实验中的1,418条复合体轨迹。按每次实验先算比例、再等权平均,约84.4%为负向、12.8%为正向,约1.5%被归为双向。直接把所有轨迹合并计算会得到稍有不同的比例,属于权重不同,本篇核对了两种口径。4
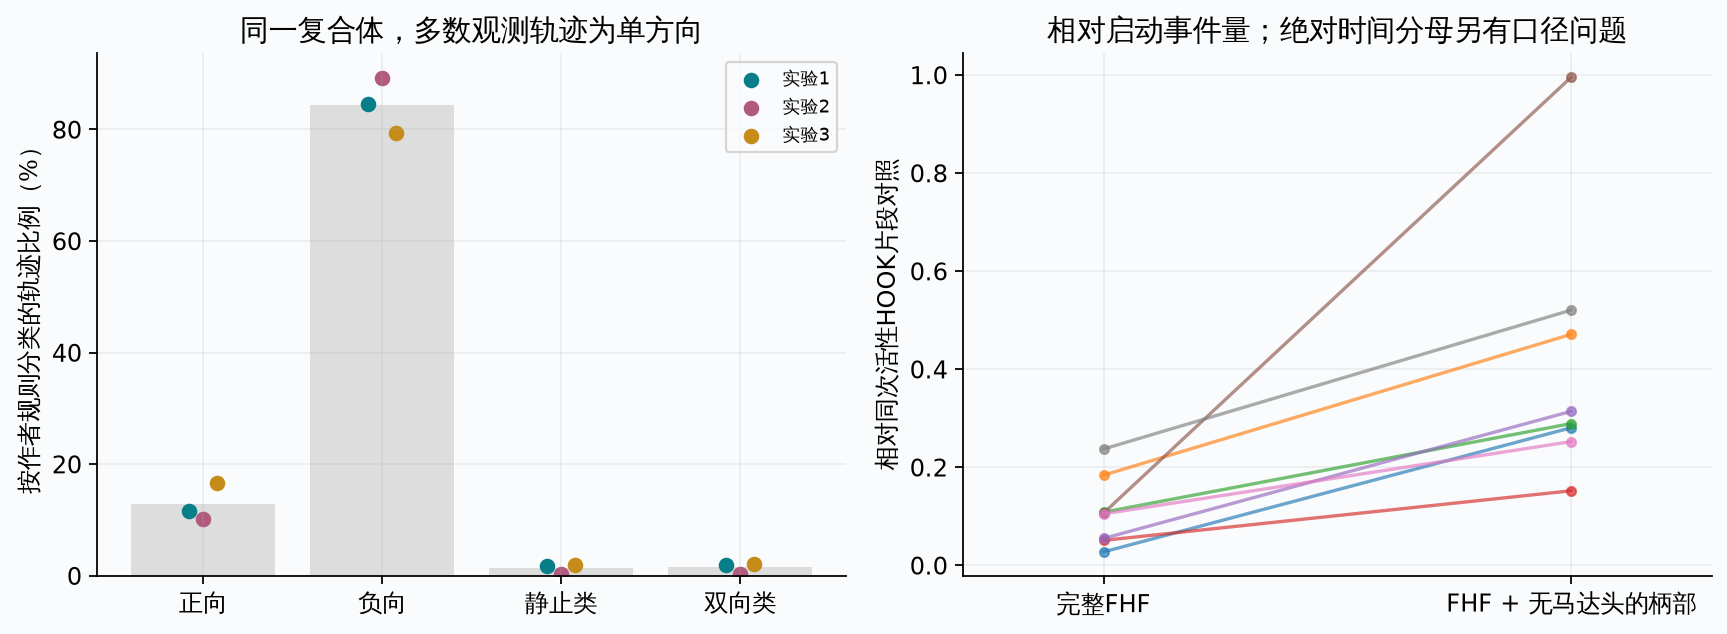
最有区分力的实验,是去掉KIF1C的运动头部,只留下能够与HOOK3结合的非马达柄部。这一片段仍然提高了dynein复合体的着陆。由于它没有负责沿微管步进的头部,这个启动促进作用不需要先由KIF1C向相反方向拉一把。3
反方向也有类似的现象:在相应条件下,即使dynein只留下不含运动头部的部分,也能促进KIF1C接轨。但两边促进作用的分子细节,不能因此被宣布已经完全、对称地解决;其中一些构象路径仍是根据互作与结构建立的模型。
适配蛋白为什么不只是一个被动挂钩
HOOK3还可与FTS、FHIP1B形成FHF复合体。看起来配件已经装齐,不等于整个适配器已经处于容易激活dynein的状态。3
论文的结构、交联与互作结果支持一种折回模型:HOOK3的不同部分相互接近,妨碍dynein–dynactin接入;KIF1C的柄部结合到相应调节区域后,使这种自抑制较容易解除。
这里需要区分证据分辨率。FHF的一部分核心相互作用有较高分辨率结构支持;全长折回的布局,还结合了交联信息和预测结构。它不是一段直接拍到适配器逐步打开、随后马达接上的动作录像。
功能对照与这个模型相互配合:完整FHF本身很少产生满足门槛的过程性事件;加入KIF1C柄部后,同一批记录中的相对事件量增加;而一段已经具有活性的截短HOOK3,提供了另一种参照。并不是只画出了一个“像锁一样”的形状,就把激活机制算作完成。34
本篇从原表重汇总了八组技术重复,加入柄部后的相对事件量在每组都高于对应FHF条件。不过,这一实验的原表时间归一化与标注存在未完全对齐之处,不能可靠地据它倒算绝对每秒结合常数。本篇保留同次实验内的相对比较;着陆实验与FHF过程性事件实验也分别处理。
走得慢一点,却能留得更久、走得更远
促进进入运输,与进入后怎样运动,仍然是两层作用。
在HOOK3条件下,作者比较了dynein复合体不带KIF1C、带KIF1C柄部,以及带全长KIF1C时的运动。原表中的数值是每根微管上所测轨迹的汇总,本篇再按实验分组重绘,并核对了原表的整体均值。34
| dynein复合体条件 | 轨迹平均速度 | 负向累计行程 | 在轨停留时间 |
|---|---|---|---|
| 不带KIF1C | 约0.758 μm/s | 约7.54 μm | 约16.45 s |
| 带非马达柄部 | 约0.714 μm/s | 约8.66 μm | 约17.90 s |
| 带全长KIF1C | 约0.642 μm/s | 约9.92 μm | 约24.58 s |
这张表展示的是各自汇总口径下的观察量,不是三个可以随意相除的物理常数。不同指标的纳入集合略有不同;先平均每条轨迹的比值,也不等于把两种平均值再相除。原分析计算平均速度时没有剔除暂停,因此这个量也不能直接当作马达每一步的机械速率。
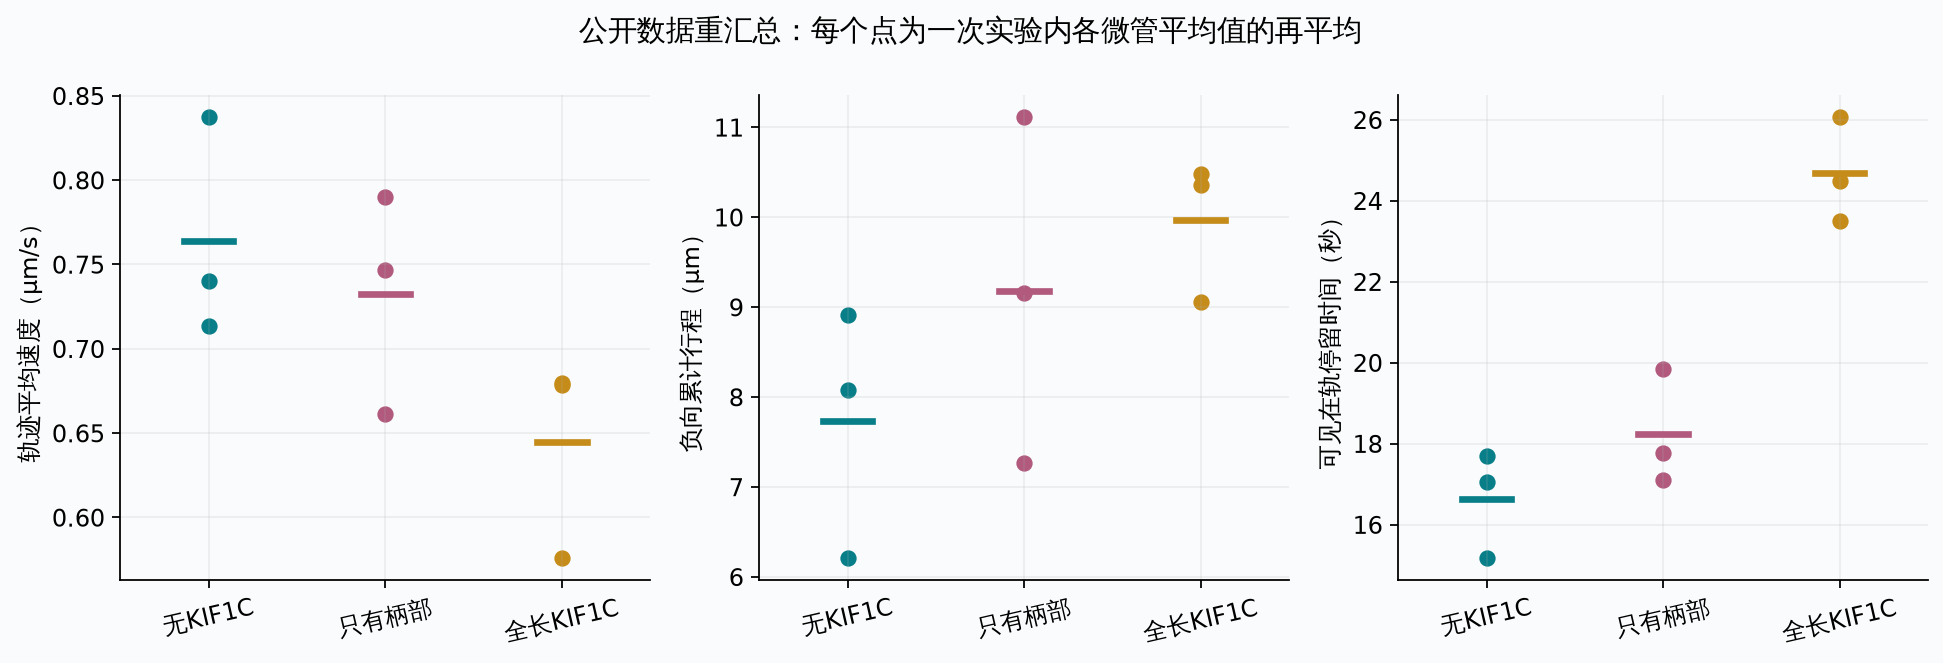
最清楚的组合是:全长KIF1C使dynein复合体稍慢,却留得更久、走得更远。不能把这直接解释成dynein拉力更大,也不能把“促进作用”全部归给一个指标。
柄部的行程均值也有变化,因此不宜说“去掉头部后所有运行指标完全不变”。它与全长KIF1C的效应组合不同:柄部已经足以促进接轨,而全长马达又带来了更明显的速度与停留变化。两层作用需要分别解释。
对KIF1C驱动的正向运动,dynein相关组分也能影响速度与行程,但作者没有观察到同样的停留延长。这种帮助并非在所有指标上都互惠相同。3
一只弱接触的“手”,怎样延长整个复合体的运输
论文提出,未主导牵引的KIF1C可能短暂或较弱地接触微管,成为一个系留点。当主要驱动部分暂时松手,它不让整个复合体立刻离开轨道,从而增加重新接回去的机会。3
这能同时解释两件看似矛盾的事:额外接触可能带来一点阻力,使速度降低;却也能减少整套复合体彻底离轨的机会,使总行程增加。但它目前仍是对观察趋势的一种机制解释,并非已经逐次看到了每一个“松手—救回—再出发”的过程。
本篇建立了三个在轨状态来检验这条因果链:
- D:只有能驱动的dynein复合体接轨。
- D+T:驱动部分和弱系留部分都接轨,运动稍慢。
- T:驱动部分松手,只剩系留;若能重新结合,则回到D+T,否则最终全部脱离。
这里D指已经可以工作的驱动复合体,不是声称裸dynein无需任何配件。模型也暂时忽略系留状态中的热扩散,只计算有方向的推进。真实的弱接触状态还可能转成正向驱动等其他状态;这个小模型只检验负向运输的续接,不代替完整的双向运动模型。
我们保持驱动部分本身的脱离率不变,实际计算它完全脱轨前的平均时间与距离。采用自选示意参数后得到:
| 模型条件 | 平均仍附着的时间 | 平均定向行程 |
|---|---|---|
| 只有驱动部分 | 2.50 s | 2.00 μm |
| 多了系留,但驱动部分不能重新结合 | 3.88 s | 1.74 μm |
| 多了系留,而且驱动部分可以重新结合 | 9.34 s | 6.02 μm |
这组对照说明,仅仅留得更久,仍不保证运输更远。如果被留下来之后不能重新接回驱动,只会多等一段时间,甚至因额外阻力减少推进。真正闭合因果链的,是系留与重新结合共同发生。
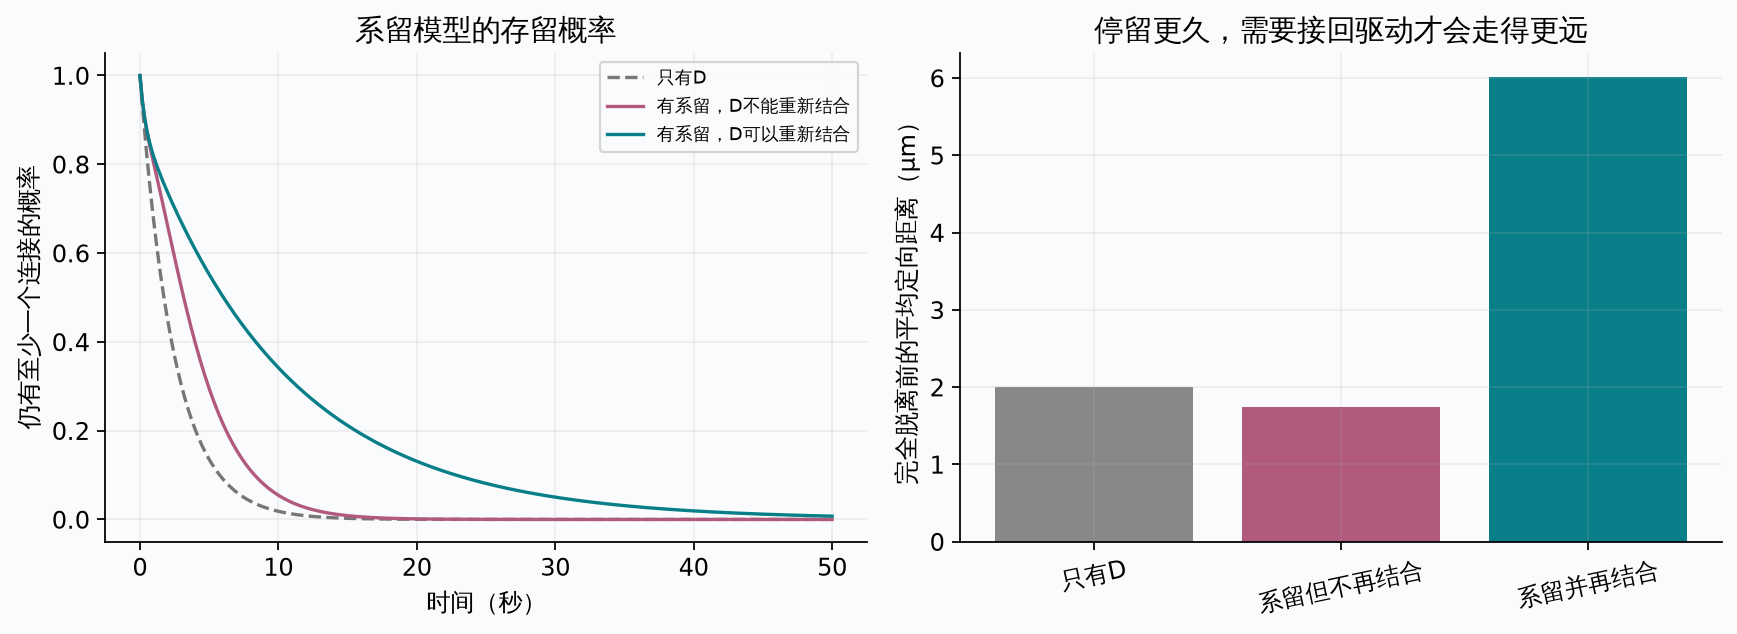
模型均值由吸收状态方程求得,并用存留概率积分核对;随机轨迹抽样另行保留。它说明这条机制在数学上可以工作,不能反过来宣称实验已经确定了所有对应速率。
停顿和真正掉头,还隔着哪些问题
在重构体系里,多数复合体长时间保持一个方向。观察到少量换向,并没有解决细胞里每一次换向的全部原因。
第一,方向统计有门槛。2025研究把明显的双向轨迹定义为正负两个方向都走过足够长的距离;一个长负向轨迹中有很小的正向位移,仍可能被归为负向。因此,约1–2%的“双向类”不等于只有这么多轨迹发生过任何后退或方向波动。3
第二,停顿可以有不同来源。强力对抗、一个马达进入长停留状态、重新接轨、轨道障碍或微管末端,都可能造成停顿。作者在回应审稿意见时明确承认,不能完全排除某些停顿是两类马达力平衡的阶段。5
第三,在细胞里,换轨也会改变可见方向。重构实验刻意选择极性明确的单根微管,并不包含完整的微管交叉、障碍物、货物形变和局部调节环境。一个运输复合体在这种简洁轨道上很少换向,不足以推出它在细胞中也应该很少换向。
机械竞争模型给出了“不需要额外协调器也可能随机换向”的路线;适配蛋白研究给出了“非运动片段也能改变接轨与激活”的路线;系留模型则说明“暂时松手后为什么还能继续走”。它们解释的是不同环节,真实运输可能同时用到不止一条。
怎样从轨迹图走向机制判断
| 观察或比较 | 比较支持的判断 | 还需要保留的边界 |
|---|---|---|
| 两类荧光标签共同移动 | 两类组分在同一可见复合体中 | 不等于两者一直同样用力 |
| 无马达头的片段仍促进对方接轨 | 启动促进不必依赖相向牵引 | 不排除后续运动中的机械作用 |
| 全长对方在场时更慢、停留更长 | 与额外轨道接触或其他状态改变相容 | 尚未逐次证明系留再结合是唯一原因 |
| 明确连接的DDB–kinesin互相阻碍 | 机械竞争可以真实发生 | 马达家族、活化状态与连接方式须说明 |
| 负载改变后更容易脱离 | 可以产生竞争中的正反馈与方向切换 | 脱离规律及负载分摊不是所有马达都相同 |
| 有停顿或双向轨迹 | 存在可分辨的状态变化 | 要说明门槛、轨道极性与暂停后的行为 |
尤其不能把不同论文里“DNA连接的马达常互相拖住”和“HOOK3连接的复合体多能单向跑”简单看作只改变了一种连接方式。那些比较还涉及不同kinesin家族、活化状态和实验条件。2025研究内部的片段、组分和配套结构对照,比跨论文的外观反差更能支撑其具体机制。23
可以带走的机制图景
运输方向不是由一张静态的马达名单单独决定的。负载会改变接轨数量,适配蛋白会改变进入活跃状态的机会,弱接触又可能改变整套复合体是否彻底离开轨道。这些变化共同决定运动的一段段速度、停留与换向。
2025年的KIF1C研究提供了两层很具体的证据:非马达部分可以通过共同适配器促进接轨;完整马达则能改变相反方向复合体的运行表现。本篇重汇总了对应数据,并用力学竞争与系留再结合两个小模型,把其中可成立的过程讲通。
剩余的关键空位是,真实细胞如何在特定位置切换主导牵引的一方,以及每次停顿中究竟发生了哪种接触变化。原始轨迹、结构和重构实验已经把问题缩小,但还不能把一个静态构象、一项平均速度或一种归一化事件率,替代整条动态因果链。