一阵一阵,首先说的是哪一步
这里的“工作”指RNA生产。许多基因并不是每隔固定时间匀速产出一份RNA,而是几次生产接连发生,随后安静一段时间,再出现下一阵。这类时间组织叫转录脉冲或转录突发。
它不是规则的周期振荡,也不意味着每次都抄出相同数量。即使没有一个统一的生物钟,只要某种允许生产的状态能维持片刻,RNA聚合酶就可能在这段时间里多次进入生产过程,形成一阵活动。1
但“一阵亮、一阵暗”还没有自动证明存在一个真实的二态分子开关。看到的是新生RNA光斑、成熟RNA数量还是蛋白荧光,决定了我们究竟在观察哪一步。它们各自的停留、降解与检测过程,会改变波动的外观。
本篇先建立这几把尺子,再看两项新研究:2025年发现不同果蝇基因的有效ON/OFF时长落在一个相当窄的关系范围内;2026年则通过改变增强子的位置,观察到明显不同的转录时间组织。前者提供动力学约束,后者提供条件改变后的对照;两者都没有把所有分子原因一次解决。26
为什么连续生产需要一个“可用的时段”
产生一份可见的新生RNA,需要走过多个环节:调控因子参与形成合适的局部环境,转录机器在启动子附近组装或工作,聚合酶进入可持续的延伸过程,再把RNA链抄出来。
这些环节没有理由永远处在同一个状态。某些条件偶尔满足、维持一阵,然后被打断,下一次生产就会经历等待。于是可以出现两种不同的随机性:一次次RNA生产事件本身有随机间隔;允许这些事件频繁发生的环境也会变化。
一个具体的候选过程是:局部转录平台形成后,可以支持多次聚合酶工作;平台失去关键组分或状态改变后,连续生产中断,重新建立平台需要等待。染色质可及性、调控因子结合、启动复合体重用、聚合酶暂停与释放、局部RNA反馈等,都可能参与其中。1
这是一张机制地图,并非已证实所有基因都使用同一个平台。尤其不能看到ON持续几分钟,就说某一个转录因子必定连续绑定了几分钟。组成部分可以很快交换,而集体形成的可用状态维持更久;反过来,某个因子长时间在附近,也未必一直产生有效RNA。
后文2025年的读出更接近“聚合酶进入产生可见新生RNA的延伸过程”。它无法直接拍到此前所有募集、暂停和释放步骤,因此不能只凭一次OFF,就判定究竟哪一个分子环节停了。2
最小开关模型:三个速率,各管什么
先用一个明确的简化模型:基因状态在OFF和ON之间随机切换,OFF到ON的速率为$a$,ON到OFF的速率为$b$;处于ON时,以速率$K$产生RNA。每个RNA以速率$\gamma$被移除。
这个模型把复杂分子过程压成少数有效状态。它假设两态等待时间是指数分布,切换速率不随已经等了多久而改变;这是一种可检验的近似,不是从看到亮暗就必然得到的事实。1
在稳定条件下:
$p=P_{\mathrm{ON}}$表示一段足够长的时间里有多大比例在ON状态。平均生产速率为$R=Kp$。因此,平均输出提高,可以来自更容易进入ON、更不容易离开ON,或ON时生产得更快;只看到平均值改变,无法立刻选中其中一个解释。
也要分清两个常被都叫作“频率”的量。$a$是已经处于OFF时,进入ON的条件速率;单位总时间里真正发生多少轮脉冲,则是:
当ON持续很久,系统虽然很少安静下来,新的OFF→ON事件反而不会频繁发生。因此,表达越强不一定意味着每分钟脉冲次数越多。
同一个平均值,后面的时间组织可以不同
对于任何足够稳定、ON与OFF交替且平均时长有限的过程,长期活跃比例都满足:
这不专属于二态Markov模型。把ON和OFF都延长十倍,$p$仍然相同;同一个活跃比例可以是频繁短脉冲,也可以是偶尔出现的长脉冲。
再定义一个方便的有效时间:
由这两个定义即可改写为:
**这些改写本身不是新发现。**真正增加信息的是:在不同条件下,$T_C$是否仍近似不变。如果它变化很大,同样的$p$仍对应许多不同的时长组合;如果它被限制在狭窄范围,$p$才会对两个时长有很强的预测力。
本库用$T_C=1$分钟做一个纯示意比较。$p$从0.1变到0.5再到0.9时,条件开启速率$a$依次为0.1、0.5、0.9每分钟,而真正的脉冲次数$F$却是0.09、0.25、0.09每分钟。低活跃端主要通过缩短OFF提高输出;高活跃端则主要通过延长ON提高输出。
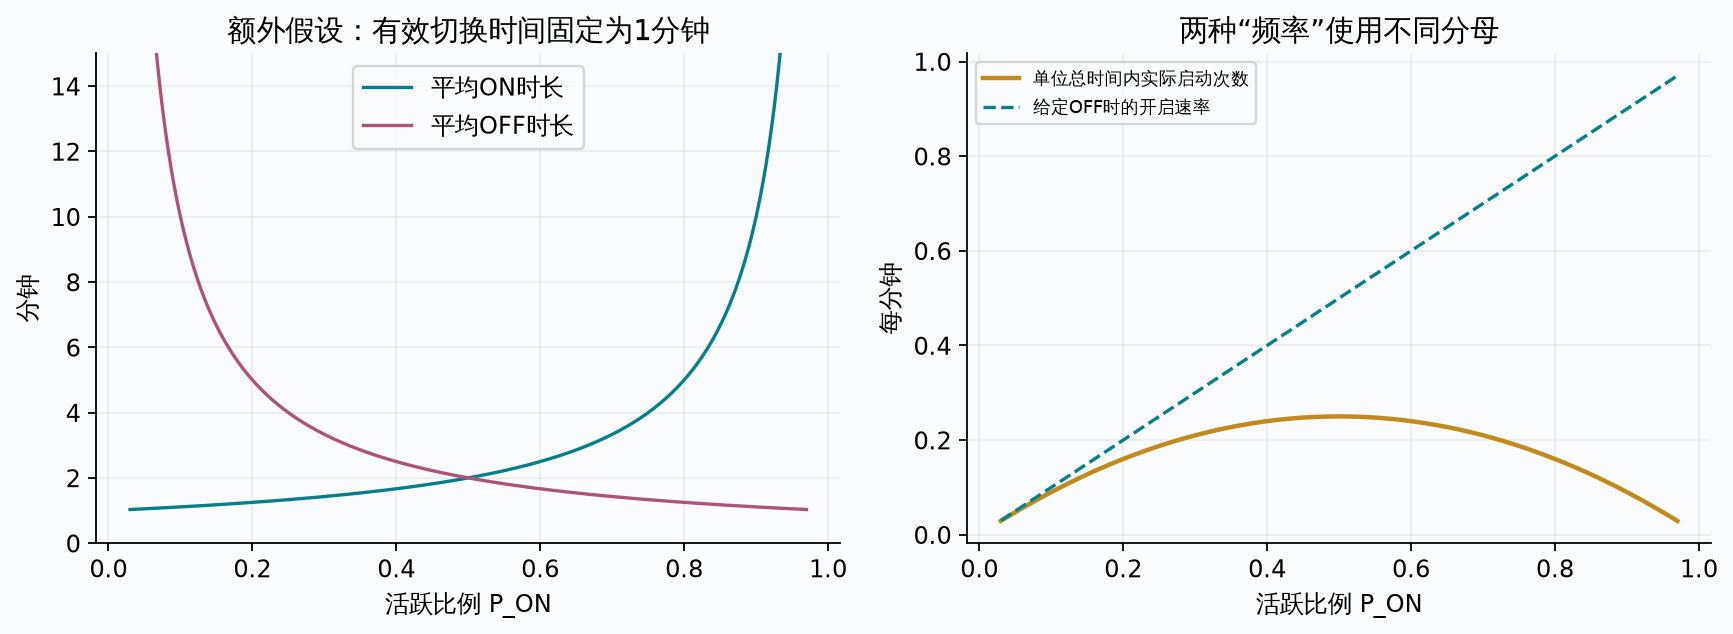
这还没有指定调控因子究竟作用于哪一个分子。即使有效参数沿同一条曲线移动,不同基因仍可能用不同的分子路径实现它。
有效时间,也未必就是全部的“记忆长度”
在理想二态Markov模型里,状态自相关按单指数衰减,相关时间确实是$1/(a+b)=T_C$。
但如果OFF内部要依次经过几个步骤,OFF等待就不再是一个简单的指数过程。同样的平均ON、OFF时长,不再保证同一条自相关曲线。
本篇实际比较了两态开关与一个“四个内部状态”的模型:后者保留一个ON状态,但OFF要走完三个连续步骤才能重新开启。两个模型的平均ON时长都是1.25分钟、平均OFF时长都是5分钟,活跃比例都是0.2,按上式算出的$T_C$也都是1分钟。
它们的时间记忆却不同。两态模型在2分钟后的归一化自相关约为0.135;三步OFF模型约为0.040,之后还出现轻微负相关。这里的三个步骤只是说明一种可能性,没有被指定为真实细胞中的三种蛋白。
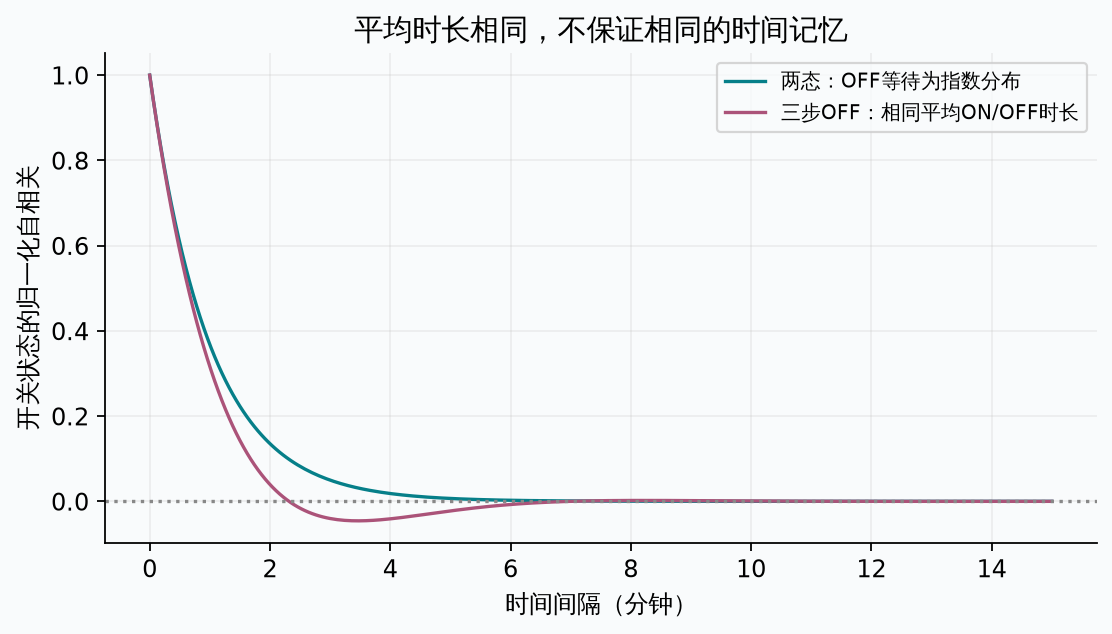
因此,平均时长、自相关与等待时间分布应互相核对。用一个参数描述得方便,与它已经对应某个具体分子步骤,是不同程度的理解。
RNA光斑记住了刚才发生的事
即使基因现在已经停止放行新的聚合酶,前面启动的聚合酶仍可能在继续延伸,带荧光标签的新生RNA也可能尚未离开观察位置。光斑不会立刻变暗。
数学上可以把这看成卷积。若第$j$次有效启动发生在$t_j$,一份新生RNA随时间贡献的可见信号为$h$,则:
$h$包含标记位置、延伸与释放等因素。相同的启动事件,用不同的可见时长观察,得到的曲线就不同。
本篇实际生成了一条随机门控和启动事件记录。让每份RNA分别可见0.75分钟或3分钟,长可见时间的信号会更高、更平滑,也更容易把相邻脉冲连成一片。下图用的是简单矩形可见窗,不是对实验MS2核的完整模拟。
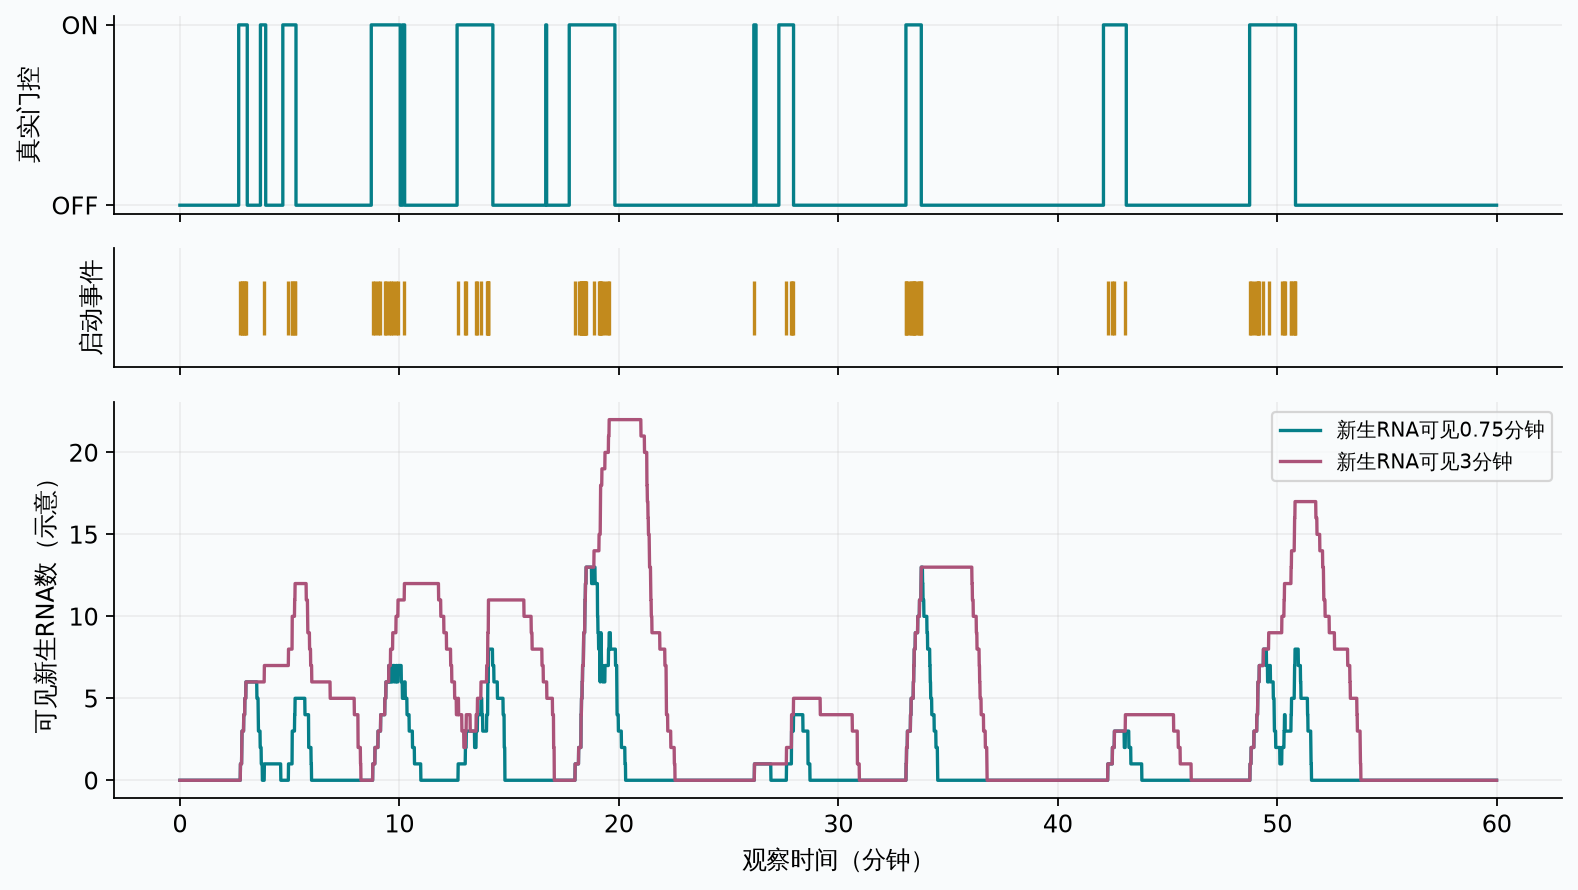
2025年研究并没有直接把每一段亮光等同于一次分子ON。作者先标定信号与RNA的关系,再把噪声和聚合酶延伸核纳入反卷积,估计启动事件,随后才划分ON/OFF。这个顺序是其证据的重要组成部分。23
反卷积也有条件:这套分析把延伸近似为恒定、确定的过程,未在核中加入基因体内的暂停或提前退出。若这些过程发生了重要变化,就可能改变反推出的启动事件。本篇重汇总后面的参数,并没有重新检验所有这些原始读出假设。
快照完全一样,也可能是两个不同过程
成熟RNA数量还要经过生产和降解的共同作用。在上述两态模型中:
第二个比值是Fano因子。超过1说明这个模型中的RNA计数比同均值的泊松分布更分散,但观测到超过1,并不能反过来唯一证明二态开关。
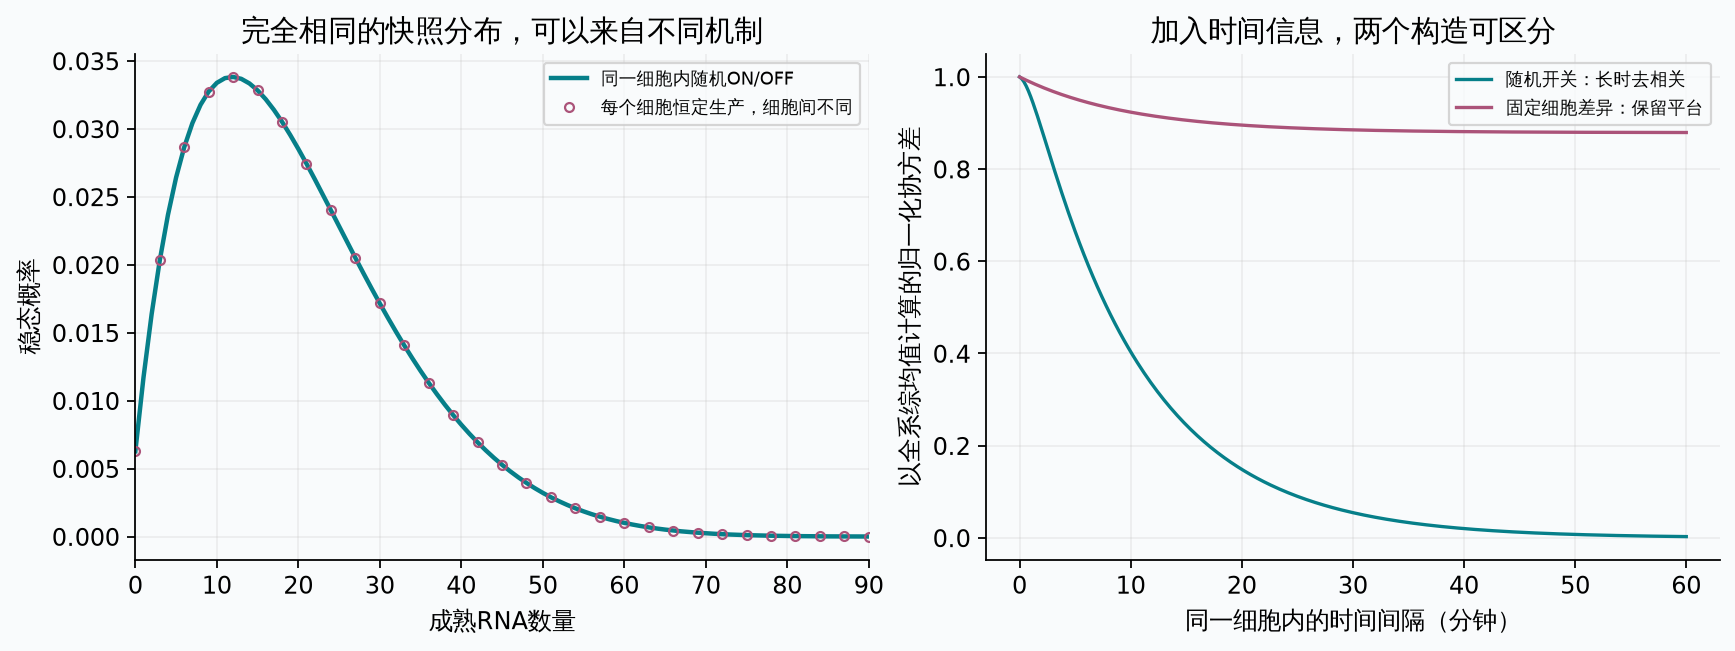
本篇构造了一个更强的反例。第一种机制是每个细胞内部都有随机ON/OFF;第二种机制是每个细胞都恒定生产,但不同细胞的生产速率各不相同。恰当地选择后者的速率分布,两者的整个稳态RNA数量分布可以完全相同,而不只是均值与方差相同。
具体计算采用$a=0.2$、$b=0.8$、$K=10$、$\gamma=0.1$,单位为分钟对应的速率。第一种机制的稳态可以写成Beta–Poisson混合;第二种就让恒定生产速率为$KX$,其中$X$服从$\mathrm{Beta}(a/\gamma,b/\gamma)$分布。
为什么可以这样构造?给定过去的门控历史,尚存RNA的平均数等于过去生产按存活概率加权的结果;在这个模型的稳态下,归一化后的随机均值服从上述Beta分布。第二个机制直接把同样的均值分布分配给不同细胞,所以一张照片分不清,时间过程却不同。
本库分别用离散状态主方程与独立的混合积分计算。得到平均20个RNA、方差约165.45、Fano因子约8.27,两份完整分布的差异总和约为$9\times10^{-15}$。这是一项故意构造的数学反例,不是说真实细胞恰好都具有这种Beta异质性。
加入同一细胞的时间记录后,二者才有机会被区分。图中以同一个全体细胞均值为基准计算协方差:随机开关模型会逐渐去相关;固定细胞差异模型则保留来自细胞间稳定差别的平台。如果先减去每个细胞自己的均值,平台会被去掉,所以分析时也必须说明如何居中。
较长的RNA寿命还会积累过去多轮生产,使RNA库存相对当前开关更平滑。要谈“噪声降低”,需说明比较的是相对波动、方差还是Fano因子;它们不一定同方向变化。蛋白还会经历翻译与自身更新,不能用蛋白荧光的起伏直接代替即时转录。
2025年的新约束:很多有效参数落在一条窄带上
Chen及合作者跟踪早期果蝇胚胎中hb、Kr、kni与gt等gap基因的转录活动。这些基因在胚胎不同位置和发育时间表达得很不一样,但反卷积后的参数出现了一组相近的关系。2
较低的平均转录活动,主要对应较小的活跃比例;活动增强时,更多时间在ON,而不是完全依靠ON期间无限加快生产。更值得注意的是,有效ON与OFF时长的组合受到约一分钟量级的$T_C$限制。
本篇从公开的大归档中,预先选定七组野生型数据的NC13与NC14参数汇总,取出全部169份文件,核对成员校验。它们包含33,214个已处理参数点。按照作者代码排除记录首尾不适合估计持续时间的部分后,保留26,980个有限值,重新得到:45
| 本篇重汇总量 | 结果 |
|---|---|
| 有效$T_C$均值 | 1.246分钟 |
| 参数点间标准差 | 0.373分钟 |
| 中位数 | 1.185分钟 |
| 第5至95百分位 | 约0.81至1.84分钟 |
均值和标准差与论文报告的1.25 ± 0.37分钟一致。这里的0.373是参数点的离散程度,不是均值的统计误差;这些点共享胚胎、位置分区与时间轨迹,也不是两万多次独立生物学实验。
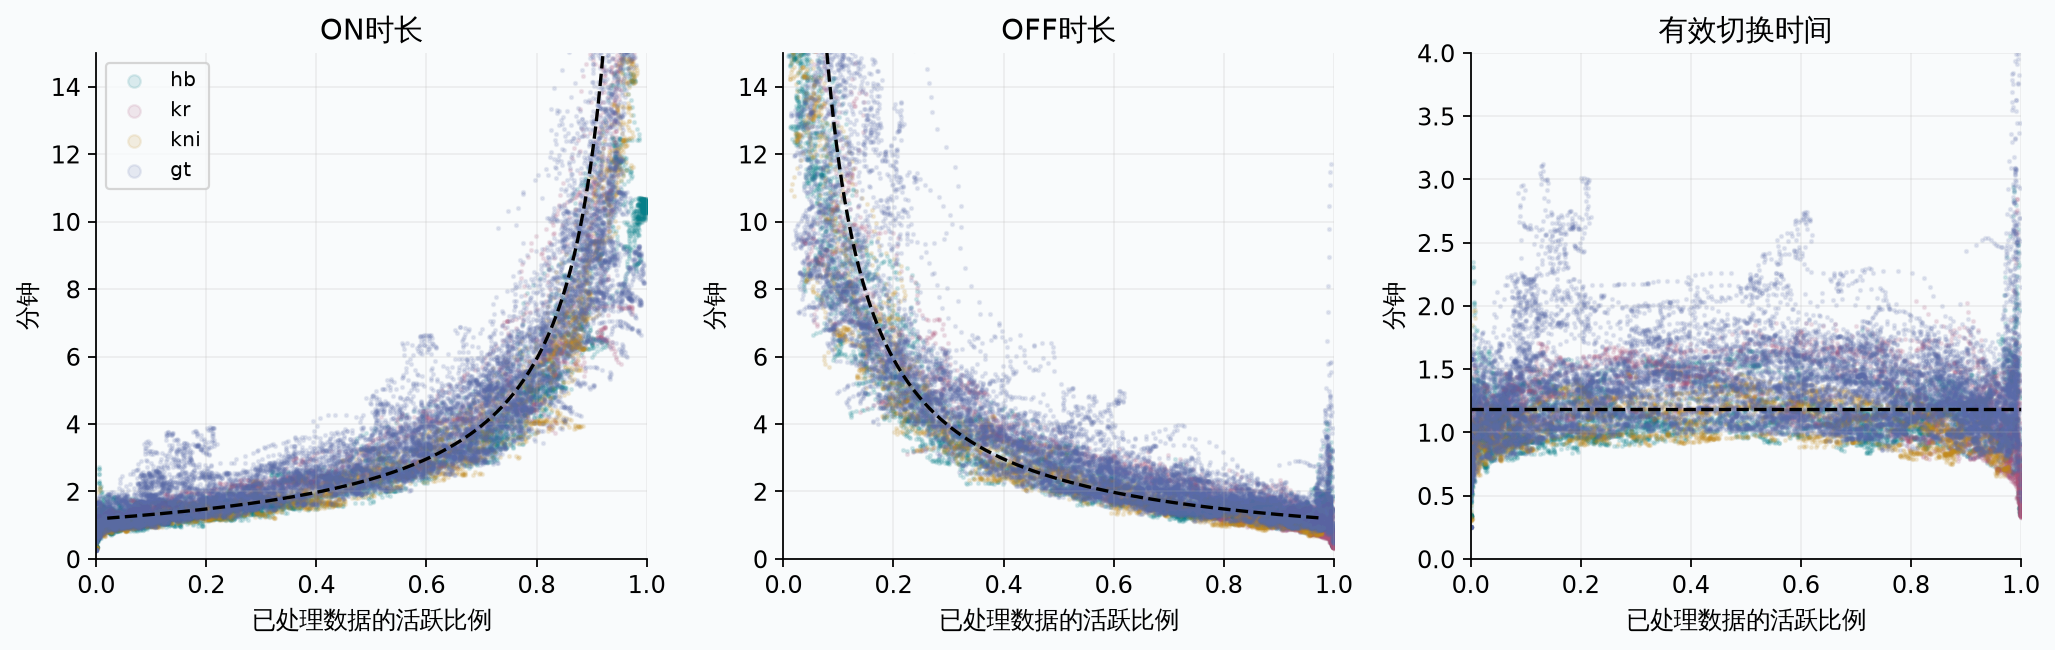
这个结果比单纯写出$p=T_{\mathrm{ON}}/(T_{\mathrm{ON}}+T_{\mathrm{OFF}})$强得多:数学定义允许两个时长一起任意伸缩,数据却只使用了其中较窄的一带。它是对候选分子机制的限制,而不只是一个方便的作图方式。
但“近似共同”并不意味着没有差异。本篇按基因分组后的有效$T_C$均值约从1.05到1.35分钟,且原研究也报告发育时段带来的变化。不能把这些数值压成所有位点必须服从的精确常数。
阈值会不会把“一分钟”硬造出来
这是必须认真检查的替代解释。因为作者划分ON/OFF时使用了约一分钟量级的平滑,并按有限检测阈值分段,处理方法本身就带入了时间尺度。23
本篇先做一个简单反例:从头到尾没有隐藏开关,只按恒定速率产生泊松事件;把过去1分钟内至少有2次事件判为ON,仍会得到一段段表观ON/OFF。我们用连续事件排序实际计算,避免时间分箱漏掉短事件。改变恒定启动率后,得到的表观有效时间约从0.55降到0.20分钟。
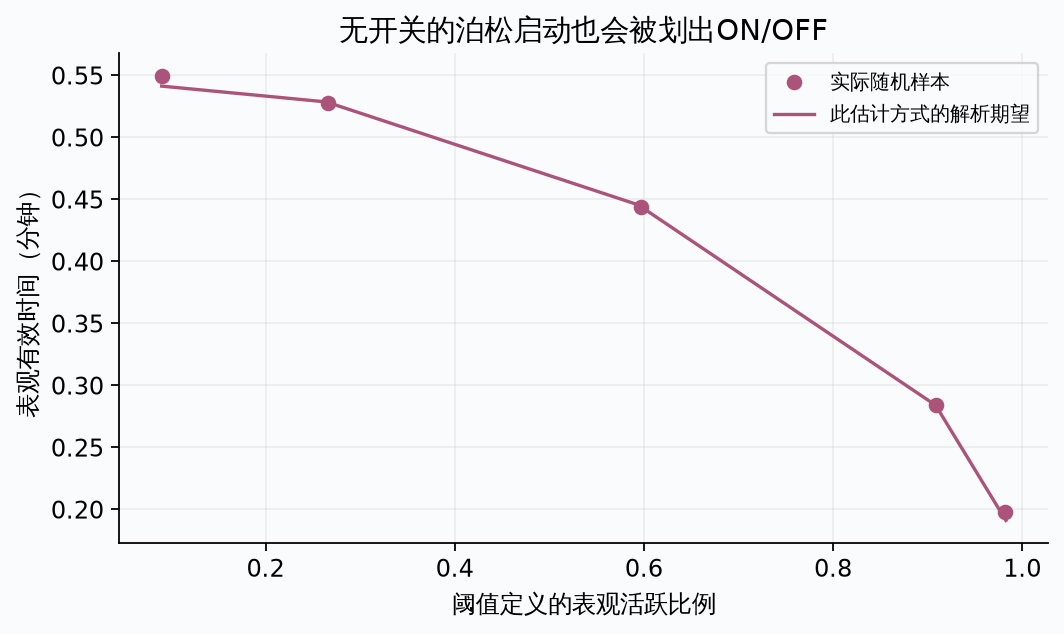
它说明仅凭阈值划出的脉冲,不足以确认一个分子开关;却不能据此就认定2025论文的结果是伪象。原作者还做了几层更有针对性的核对:
- 从没有依赖ON/OFF划分的启动速率自相关中,得到约1.37分钟的衰减时间,与有效时长结果接近。
- 用已知输入参数的模拟,把延伸、成像噪声、反卷积和分段连起来检验;不仅使用二态模型,也比较暂停模型和多步循环模型。
- 测试了不同真实时间尺度与检测参数。方法能分辨比观察到的窄带更宽的范围,同时承认接近较短检测尺度时存在偏差。23
因此,目前更合理的判断是:这组有效关系有实质证据支持,不能仅用“有阈值”三个字抹掉;但我们也不能把有效关系直接命名成某一个尚未测到的分子时钟。本篇重算的是公开处理参数的汇总,没有独立重跑原始图像反卷积与全部模拟验证。
单一等位基因光斑,也未必只含一份独立的基因活动
胚胎细胞周期中,复制后的姐妹染色单体可能在光学上无法分开。一个可见位点的信号,就可能包含两份基因拷贝的活动。2
如果两份拷贝大体独立,一份关了、另一份还开着,可见位点就仍然被判为ON。有效ON时长、ON期间生产速率以及活跃比例,都会和单份基因的参数不同。
2025研究结合数据和模型分析这种影响,估计单份活跃基因的生产速率约为每分钟6.4份RNA。但这个数值包含姐妹拷贝相关程度与读出转换的假设,不是直接从一张光斑图上逐个辨认出来的单拷贝计数。23
跨物种比较也需要保持这种谨慎。论文重新分析的人类基因记录,得到的时间常数约为3.2分钟,数据采样与平滑方式也不同。更关键的是,小鼠部分单细胞RNA快照拟合,使用了以1分钟为中心的时间先验来缓解难以辨识的问题。它可以用于有条件的参数估计,但不能再把拟合出来的分钟量级,算成对同一时间常数的独立确认。2
所以,这项研究最硬的内容是特定数据范围内的动力学约束。把它扩大成所有物种、所有基因共用一套精确速度,证据还没有走到那里。
2026年的条件改变:把增强子放到另一边
另一个问题是,除了调控因子的数量与性质,DNA上的相对位置会不会改变时间组织?
2026年的果蝇胚胎研究比较了距离相近、增强子位于启动子上游或下游的报告系统。在线性距离相近的一组中,下游配置的荧光输出与被判为活跃的时间比例明显较低。研究还比较不同距离、报告基因和调控序列,提示位置与距离可以影响不同的动力学方面。6
本篇选择公开主图数据中的这一组距离相近的比较:上游7.6 kb与下游7.7 kb,各3枚胚胎。直接读取所提供的活跃核输出字段,并给每枚胚胎相同权重,得到下游/上游比约为0.311,即该代理输出下降约69%。每枚下游胚胎的平均值都低于这三枚上游胚胎。7
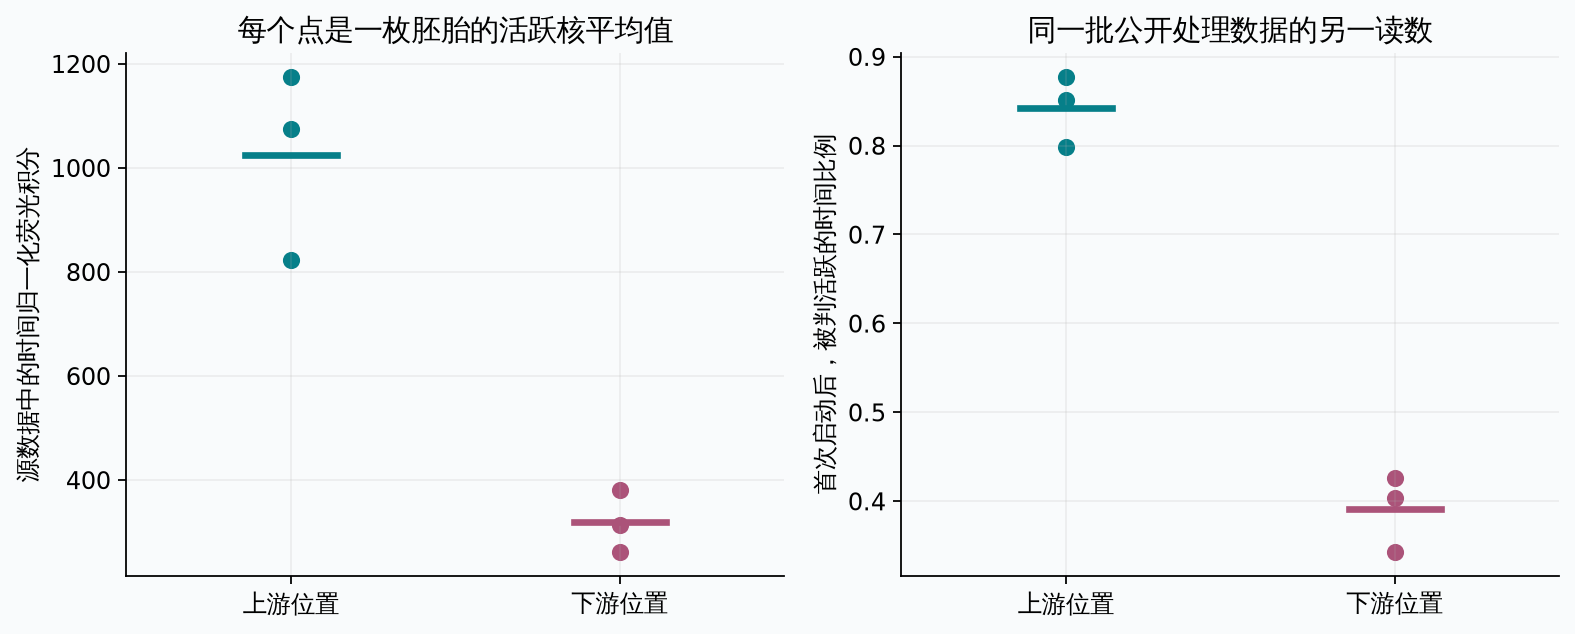
这里有一个容易被摘要中的“RNA产量”盖住的细节:本篇逐项计算发现,文件中的输出等于轨迹积分再除以记录帧跨度,仍是荧光代理量,未校准为绝对RNA分子数。相对差异可以有意义,但不能把0.311解释成直接数到了某个精确比例的成熟RNA。作者另有RNA FISH支持相近方向,并在评审回复中说明该验证也没有做到单分子分辨率。78
这项研究的ON/OFF尺子也与2025年的不同:它用荧光上升、下降的拟合来推断状态;2025研究先反卷积为启动事件,再划分活动时段。两边都叫“ON时间”,并不意味着可以直接把分钟数放在一张图上检验同一条普适曲线。36
位置影响已经看到了,分子原因还没有唯一确定
下游配置为何较弱?一种解释是局部调控因子聚集与位点接触方式改变。研究者同时追踪Dorsal因子聚集与转录位点,在所测接近程度、强度与接触持续性指标上,没有观察到足以解释两种配置差别的显著变化。6
这个阴性结果针对的是所测因子、指标和有限样本,不表示所有局部聚集机制都已排除。它的价值在于让“附近有个聚集体,所以脉冲差异必定来自它”的解释承受一次具体对照。
另一种解释把下游配置较弱归因于转录所产生的DNA机械作用。研究进一步缩短实际被转录的区域,但相对位置带来的差异仍然存在,没有按最简单的预期恢复。这使“只是较长的转录造成更大机械拉扯”不足以独自解释结果。68
染色质占据、三维接近、转录后的局部变化或多个过程共同作用,仍可能参与。作者在修订后的讨论中也明确保留了具体机制未定的状态。因此,这项研究支持空间配置会影响可见的转录动力学,却不能把“活跃状态较不稳定”这个现象描述,当作已经解释完了底下的分子过程。
什么证据最能把几种解释分开
| 容易混在一起的解释 | 更有区分力的比较 |
|---|---|
| 真实成簇启动,或检测把随机事件拼成脉冲 | 独立标定可见核、反卷积、原始速率相关性,以及把完整分析施加于已知过程的对照 |
| 单个慢开关,或多个内部步骤 | 不只比较平均ON/OFF,还比较等待分布与时间自相关 |
| 同一细胞内突发,或细胞间长期异质性 | 逐细胞时间记录、多个读出,并说明是否减去每个细胞自己的均值 |
| ON更多、ON更久,或ON时更快 | 在同一观测定义下分别估计活跃比例、两种持续时间与有效生产速率 |
| 特定分子改变了动力学,或只是改变了平均输出 | 同时观测有关分子状态与RNA事件,检验时间先后和能区分候选过程的条件变化 |
| 参数关系可以跨条件推广,或被先验与采样限定 | 比较实际数据范围、反卷积假设、检测下限及未用于设定先验的时间证据 |
可以保留下来的解释
转录成簇出现的一条基本机制,是随机生产事件受到较慢、能持续一段时间的可用状态调制。改变进入状态的机会、离开状态的速度或状态内的生产活动,都可以改变输出;新生RNA可见时间和RNA库存更新,又会改变我们最后看见的波动。
2025年的数据进一步给出一个有分量的约束:在其果蝇数据范围内,有效ON/OFF时长的组合并没有任意游走,而是集中在约一分钟量级的窄带。本篇重汇总确认了核心统计。2026年的位置比较则展示,改变空间配置可以影响转录的时间组织和相对输出,同时把一些简单的分子解释留在了未决状态。
这些结果已经足以推进理解,但还没有把“ON”唯一对应到一件分子开关。最值得继续追问的,是哪些具体步骤共同维持这个可用时段,以及改变哪些条件后,原本相近的时间关系会真正分开。