先给一句短答案:"残留细胞长期存在"与"残留细胞长期不分裂"是两件事,而临床上能看到的东西主要只支持前者。 规模的平均轨迹只由出生率减死亡率决定,所以真正的静止、每年周转一次和每月周转一次给出同一条曲线;要把它们分开,得去看别的东西——单个细胞积累了多少突变,或者血浆里的 DNA(那不只反映活细胞数)。这不是技术不够,主要是读数结构的问题。
一、四个必须分开的说法
| 说法 | 严格含义 | 观测 |
|---|---|---|
| 未检出 | 本次检查没有检出目标 | 结合灵敏度与抽样给出约束;硬规模上界只属于简化模型 |
| 影像缓解 | 病灶变化达到约定反应标准 | 部分缓解与完全缓解分开,均不直接证明细胞已清除 |
| 细胞休眠 | 单个细胞停止分裂 | 增殖标志、分裂计数、谱系追踪 |
| 群体稳定 | 出生与死亡相抵,总数不变 | 总量随时间的曲线 |
后两者最常被混用。一个群体可以在总数完全不变的同时,每个细胞都在不停分裂与死亡;也可以每个细胞都静止不动。清除的难度、对细胞周期依赖性药物的敏感性、以及积累新突变的速度,在这两种情形下完全不同,而总量的平均曲线一模一样。要提前说清一件事:一模一样的是期望,不是每一条实现——随机出生-死亡过程的涨落随 b 增大,第三节给出这个量级。
二、现象有多硬:复发风险可以持续二十多年,但并非不下降
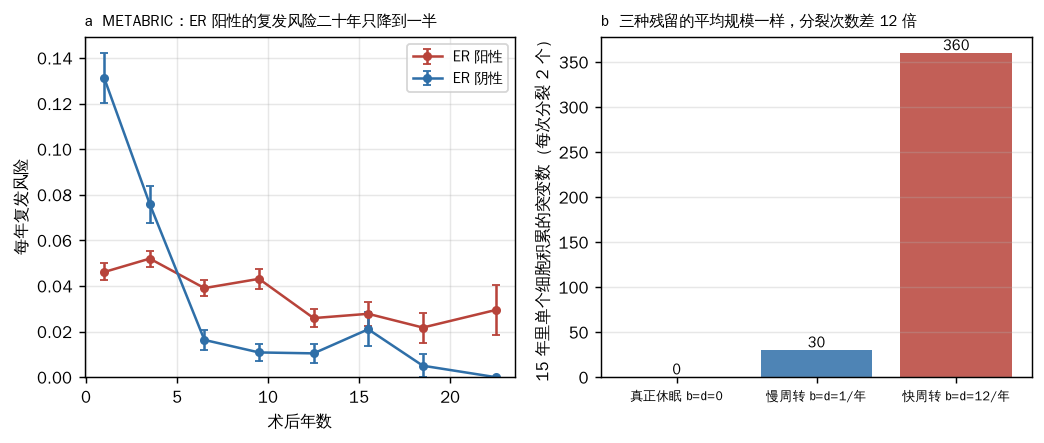
先确认要解释的对象。用 METABRIC 队列的 2380 例有复发随访的乳腺癌(随访最长 32 年,520 例超过 15 年),按区间计算每年复发风险:
| 术后 | 0–2 年 | 2–5 | 5–8 | 8–11 | 11–14 | 14–17 | 17–20 | 20–25 |
|---|---|---|---|---|---|---|---|---|
| ER 阳性(1743 例,691 次复发) | 0.046 | 0.052 | 0.039 | 0.043 | 0.026 | 0.028 | 0.022 | 0.029 |
| ER 阴性(608 例,267 次复发) | 0.131 | 0.076 | 0.016 | 0.011 | 0.010 | 0.021 | 0.005 | 0.000 |
两条曲线的形状完全不同:受体阴性者的风险集中在头几年,之后大幅下降(11 年后与头两年之比 0.09);受体阳性者下降得慢得多,二十多年只降到大约一半(比值 0.57)。要按观察到的事件数读最后一格:受体阴性 20–25 年那格是零事件,不是零风险——该区间只有 117.1 人年,按同一常率泊松近似,真实风险的单侧 95% 上界仍有 0.026/年。
拿三个模型去拟合(最大似然,含右删失):
| 模型 | ER 阳性 | ER 阴性 |
|---|---|---|
| 指数(风险恒定) | 0.042/年,AIC 5771.3 | 0.052/年,AIC 2117.8 |
| Weibull | 形状 k=0.915,AIC 5766.0 | 形状 k=0.575,AIC 1987.6 |
| 治愈比例+指数 | 67% 属于模型的易发生事件成分、成分内危险率 0.076/年,AIC 5751.6 | 48% 属于模型的易发生事件成分、成分内危险率 0.287/年,AIC 1915.4 |
两组都是第三个模型最好,但含义相反:受体阴性像"一半的人带着可发生事件的残留,而这些残留很快就会显形";受体阳性像"三分之二的人带着它,而它每年只有 7.6% 的机会显形"。
这里有两处必须说死。第一,67%/48% 是混合模型里"易发生事件成分"的比例,不是实测的带残留人数:另一个成分也可能包含被长期控制住、始终没显形的残留,模型分不出"没有残留"与"有残留但一直没长起来"。第二,即使按这个模型,人群层面的危险率也在下降——恒定的只是易发生事件那一部分人内部的 λ。把拟合参数代回 $h(t)=\pi\lambda e^{-\lambda t}/(\pi e^{-\lambda t}+1-\pi)$,受体阳性从 0.0511/年降到二十年后的 0.0234/年(0.458 倍),受体阴性则从 0.1377 降到 0.0008。所以本节真正稳的现象是:受体阳性的复发风险可以持续几十年,而且下降模式与阴性完全不同,不是"完全不降"。
需要立刻打的折扣:这个比例是模型参数不是实测量。我原本预计它与随访长度强烈耦合(随访越短、被判为"治愈"的比例越高),于是把随访人为截断到 10、15、20、25 年各重拟合一次。结果比预期稳:受体阳性的比例是 0.665 / 0.659 / 0.642 / 0.658(不截断 0.671),受体阴性是 0.441 / 0.463 / 0.479 / 0.479(不截断 0.479)。受体阳性各档的最大差是 0.029,受体阴性把十年那一档算进来是 0.038——变化不大,但不能说成"已证明对随访长度不敏感"。真正随随访长度漂移的是另一个参数——受体阴性的逃逸率从 0.381 降到 0.287(降了四分之一),因为早期事件在短随访里占的权重更大。
仍然要打的折扣:这三个模型都没有区分局部复发与远处转移,也没有校正治疗(内分泌治疗本身就把受体阳性者的风险往后推),队列以 1980–90 年代病例为主。所以上面的数字是对这份随访数据形状的描述,不是对生物学的测量。
三、总量的平均曲线读不出出生与死亡——但"总量读数"不止一种
现在问机制。把残留群体写成线性出生-死亡过程:出生率 $b$、死亡率 $d$、净增长率 $r=b-d$,规模的期望是 $N_0e^{rt}$,只依赖 $r$。于是取 $N_0=10^6$、十五年窗口:
| 残留方式 | $b$ | $d$ | 十五年后规模(期望) | 规模的标准差 | 单个细胞的分裂次数 | 积累的突变数 | 稳态血浆 DNA(相对) |
|---|---|---|---|---|---|---|---|
| 真正休眠 | 0 | 0 | $10^6$ | 0 | 0 | 0 | 0 |
| 每年周转一次 | 1 | 1 | $10^6$ | 5,477 | 15 | 30 | 1 |
| 每月周转一次 | 12 | 12 | $10^6$ | 18,974 | 180 | 360 | 12 |
(突变数按每次分裂 2 个体细胞突变计;血浆 DNA 按最简收支 $\mathrm dC/\mathrm dt=q\,d\,N-\text{清除}\cdot C$ 的稳态值,取 $q=$ 清除率 $=1$、以休眠情形为 0 标度。)
三行要分三个层次读:
- 规模的期望完全相同,所以任何只看平均总量曲线的读法都分不开它们。这是本节的主结论。
- 涨落不同:$r=0$ 时 $\operatorname{Var}[N(t)]=2bN_0t$,十五年后的标准差分别是 0、5,477、18,974。相对一百万只有 0.5%–1.9%,本篇未证明实际影像能可靠分辨这点差别,但"所有数量读数在结构上完全一样"这句话本身是不对的。
- 血浆 DNA 不只反映活细胞数。释放、细胞死亡、进入血液与清除都参与浓度的形成;只算与死亡相关的释放,就已经给出"同样的 $N$、不同的 $C$"——上表最后一列相差 12 倍。真实的 ctDNA 当然不止凋亡这一条来源,但这足以否掉"总量读数必然只测 $N$"这个前提。
差别最大的仍是单个细胞的历史:0、15、180 次分裂,慢周转与快周转之间是 12 倍("零"不能进倍数比较)。
一个候选读数是突变钟——但它要先解决一个归属问题。 "相对已取的原发样本为私有"不等于"在休眠阶段新获得":这些突变可能来自原发取样漏掉的分支、播散分支在被取样之前的历史、休眠阶段本身,以及重新扩张阶段;要把它们分到哪一段,需要共同祖先的时点、检测覆盖度与突变过程的假设。下表演示的是假定这些私有突变全部产生于休眠期时的换算:$M$ 除以每次分裂的突变率 $\mu$ 给出分裂次数,再除以间隔年数得到每年分裂率 $b$:
| 复发灶私有突变数 | 每年分裂次数 | 泊松标准误 |
|---|---|---|
| 10 | 0.33 | 0.11 |
| 50 | 1.7 | 0.24 |
| 200 | 6.7 | 0.47 |
| 1000 | 33 | 1.05 |
表里那个泊松标准误只描述"预先假定的计数模型"里的抽样噪声:它没有核定实际测序的检出与假阳率,也没有把阶段归属与突变率本身的不确定性算进去。所以不能由它推出"现有精度足够,几十个私有突变就对应每年一次周转"。这一节能给的是一条候选读数与它需要的前提清单:配对的原发-复发测序、共同祖先时点的估计、覆盖度校正、以及独立的突变率标定。本篇没有取得配对数据,不给结论。
四、机制文献提出的是"波动+清除",但它测到的还不是周转率
有意思的是,两篇入口论文提出的图景本身就偏向"状态在波动"而不是"细胞停在原地"。要先分清哪些是作者对既有研究的整合、哪些是这两篇自己的实验结果。
肺腺癌那篇(s1)研究播散后进入休眠的转移起始细胞:TGF-β 诱导它们进入细胞周期停滞,同时诱导一种不含应力纤维的非典型上皮-间质转化——由解聚肌动蛋白的凝溶胶蛋白介导——使细胞变软,从而躲开"免疫机械监视"(细胞越硬越容易被细胞毒淋巴细胞杀死)。该文在引言里把休眠整合为"在免疫逃避的慢周期状态与增殖状态之间波动,而进入增殖的那部分会被清除"。这是一幅 $b>0$、$d>0$ 的图景,但它是作者对既有工作的整合,不是这篇自己测出来的周转率:该文当前的结果描述的是周期停滞、低 Ki67、高 p27 与细胞力学状态的改变。所以这里能说的是"存在状态波动与免疫限制的可能",不能跳过状态与细胞间的异质性,直接给残留群体指定 $b=d$。
乳腺癌那篇(s2)研究染色质重塑复合体成分 Brd7:失去 Brd7 会重塑染色质可及性与增强子景观,把肺里休眠的转移起始细胞唤醒,同时动员促瘤的炎性中性粒细胞、把 T 细胞推向应激与耗竭。它给出的是"休眠可以被特定改变解除",也就是这种静止是可逆的——但可逆的静止仍然是静止:Brd7 缺失让休眠细胞重新扩张,并不说明改变之前它们就在分裂。"可逆维持"与"持续周转"是两个命题。
把这两篇与第三节放在一起,能提出的是一条待检验的假说而不是结论:如果休眠期的存活确实靠"分裂出来就被清除"这个平衡,那么去掉免疫压力应当同时提高净增长率与复发率,而复发灶应当带着与周转次数相称的突变负荷。 反过来,如果各类残留其实大多真的停在原地,前一条会成立而后一条不会。两篇入口论文都支持"具体环节可以改变休眠与存活",都没有给出本篇需要的那个长期出生/死亡率分解。
五、"未检出"能给出的上界
最后处理检测那一侧。以 1 cm 病灶约 $10^9$ 个细胞为影像阈值:
| 残留细胞数 | 倍增 30 天 | 倍增 90 天 | 倍增 365 天 |
|---|---|---|---|
| $10^3$ | 1.6 年 | 4.9 年 | 19.9 年 |
| $10^5$ | 1.1 年 | 3.3 年 | 13.3 年 |
| $10^7$ | 0.55 年 | 1.6 年 | 6.6 年 |
两条读法:
- 净增长率为正时,"未检出"只是尚未到时候——一个十万细胞、90 天倍增的残留要 3.3 年才越过这个阈值。
- 净增长率为零时,按这个模型它永远不越过阈值,却一直在那里,直到某个条件改变。
这两条都是确定性近似加一个硬阈值下的算术,别当成对实际检查的保证。真实的"查不到"还取决于病灶长在哪里、分散成几处、这次检查的灵敏度与抽样方式;所以不能写成"十万个细胞在任何影像上都是完全缓解"。同样,$r=0$ 时"永远不跨阈值"只属于这个确定性例子,不等于所有真实残留都会一直存在——随机涨落、免疫清除与条件改变都在模型之外。
这也说明为什么"缩小"与"清除"是两个不同的终点:把 $10^{10}$ 个细胞杀到 $10^5$ 是五个数量级的缩小,按这个阈值就落在影像看不见的一侧,而剩下的十万个细胞与复发之间只隔着一个净增长率的符号。(顺带一提,"部分缓解"说的是可测病灶之和缩小到一定程度,不等于病灶整体低于检出线,两者不是一回事。)
六、边界、反例与可以检查的预期
本篇没有证明的:
- 第二节是对 METABRIC 这一份回顾性队列随访形状的描述,随访起点、复发定义与治疗背景以该数据集的说明为准,不由模型曲线自行补成"术后残留逃逸"。混合模型的成分比例是模型参数不是实测的带残留人数,也不必与术后 ctDNA 阴性比例对齐(后者还受释放与检测限影响);未区分局部复发与远处转移;未校正内分泌治疗与化疗(受体阳性组绝大多数接受内分泌治疗,这本身会把风险往后推,因此长期复发风险里有多少是治疗造成的延后、有多少是残留本身的性质,这份数据分不开)。队列以 1980–90 年代的病例为主,治疗方案与今天不同。
- 第三节的出生-死亡模型是线性、无空间、无免疫的;真实残留分布在多个器官、状态各异。"每次分裂 2 个突变"是量级假设,换成 1 或 5 会把突变钟的刻度整体平移。血浆 DNA 那一列只是一个最简收支的稳态值,用来否掉"总量读数必然只测细胞数",不是 ctDNA 模型。
- 第四节的两篇都是小鼠模型研究,本篇按原文引用其机制描述,没有复算任何一项,也没有把小鼠的时间尺度换算到人。
- 本篇没有取得配对原发-复发的测序数据,因此突变钟只给判据不给结论。
- 本篇不评价任何辅助治疗方案,不构成治疗建议。健康议题按本库规矩只作研究。
被数据修正的预期(两处): 其一,开题时我预计受体阳性与阴性的差别主要是幅度差别(阳性整体风险低但形状相似)。实测是形状本身不同:阴性的晚期/早期风险比 0.09,阳性 0.57,且两组的最佳模型参数方向相反(阴性是少数人快逃逸,阳性是多数人慢逃逸)。其二,我预计拟合出的治愈比例主要是随访长度的产物,做了截断复算后发现它从十年随访起就变化不大(最大差0.038);漂移的是受体阴性的逃逸率(0.381→0.287)。两处都按实测改写。
可以检查的预期:
- 配对测序是候选读数:只有把突变归属到休眠窗口,并约束采样遗漏、检出能力及突变过程后,计数才可能帮助估计该窗口的周转。本文尚未验证这些条件,不能用“几十个或几百个私有突变”直接分成年度或月度周转,也不能把表内Poisson标准误当成实际测序精度要求;接近零同样不是证明静止的必要或充分条件。
- 若"分裂出来就被清除"的平衡成立,则在免疫缺陷宿主里同一批播散细胞的净增长率应当由零转正,复发也应当更早、更集中。要说清这条预期的限度:本篇的模型没有给出两类人群各自的分布与机制映射,所以不能预言"受体阳性的形状会变成受体阴性的形状"——那是两个不同人群的经验分布,不是同一模型的两个参数值。
- 若只考虑药物对特定细胞周期阶段的直接作用,那么在整个相关窗口都不进入该阶段的细胞,其直接敏感性可能较低。某时刻静止不等于整个辅助治疗窗口都静止,后续再进入周期、状态混合与其他作用均可能影响结局;不能据此断定某类辅助治疗是否有效。
- 第二节的易发生事件成分比例在截断复算里变化不大(最大0.038)。可探索它与独立残留指标的关系,但不能把该比例误叫作无残留比例,也不能预设它与ctDNA阴性率同向或数值相等;释放、检测限和长期控制都可能影响对应关系。