109
没有外部热浴,孤立量子系统怎样呈现热平衡?
孤立量子系统可以始终保持整体纯态,同时通过纠缠和不同频率的相位演化,使局部观测接近热平衡描述。纠缠、达到平衡和热化是三个不同命题;是否能用温度概括局部,还取决于守恒量、初态与能谱。六格玻色链计算、2016和2025年的实验及2026年高温定理,分别展示这条机制链的证据和边界。
Mechanism Atlas · 现象 — 机制 — 条件
从一个可回答的问题出发,比较可能的机制,走通最小因果链,再看条件改变之后什么会变化。
孤立量子系统可以始终保持整体纯态,同时通过纠缠和不同频率的相位演化,使局部观测接近热平衡描述。纠缠、达到平衡和热化是三个不同命题;是否能用温度概括局部,还取决于守恒量、初态与能谱。六格玻色链计算、2016和2025年的实验及2026年高温定理,分别展示这条机制链的证据和边界。
直管中刚出现的湍流常是一团团会消失、也会分裂的局部结构。持续湍流依赖平均流不断供能,以及局部生灭和空间相互作用共同维持的群体。2024年的实验约束模型支持直管转捩的定向渗流图像,但最靠近临界点的标度仍依赖模型外推;改变几何、作用力和局部结构后,转捩方式需要重新检验。
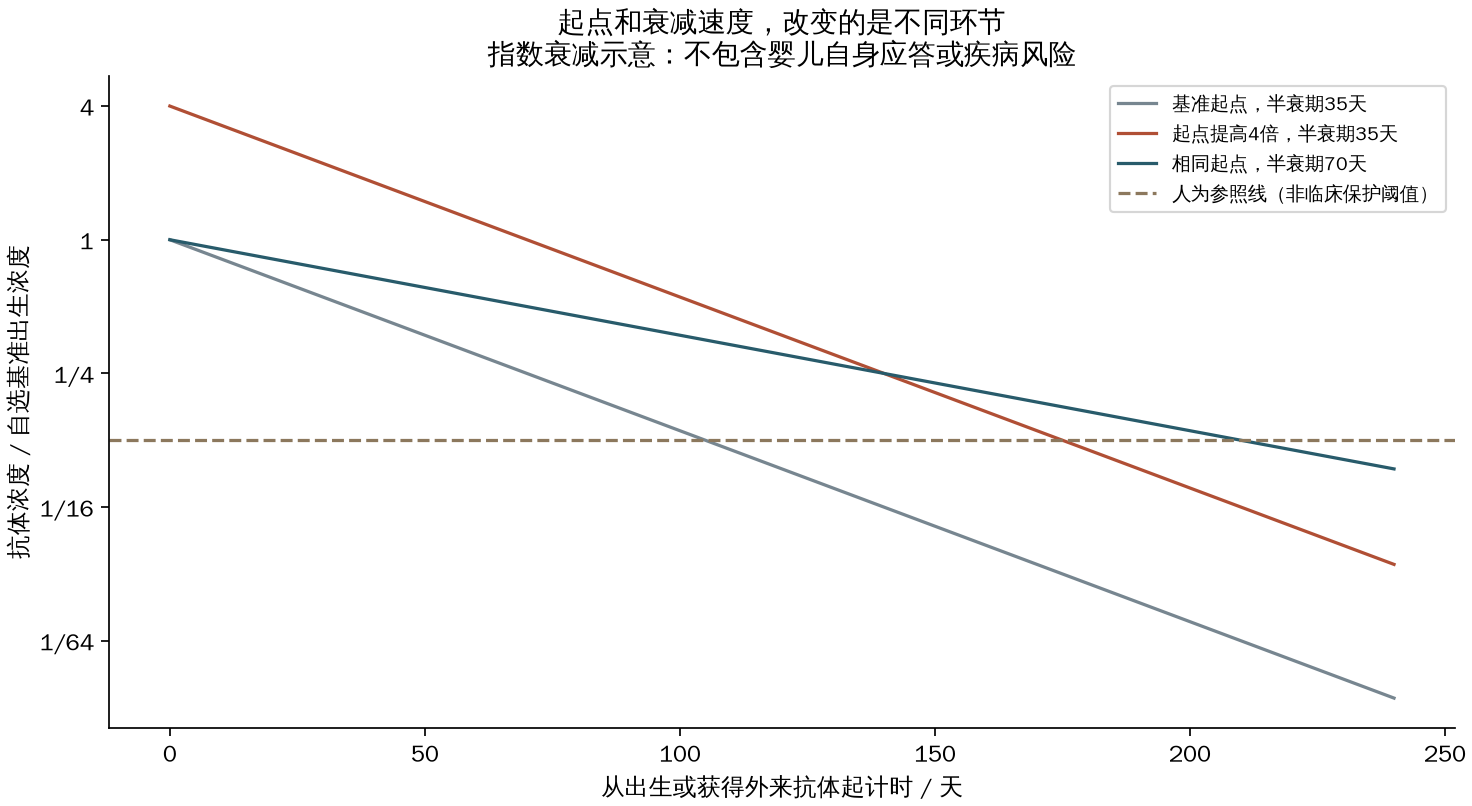
母源抗体、婴儿自身防御与实际暴露同时变化,保护不能仅凭月龄判定。胎盘转移决定出生时的一部分抗体基础,出生后的衰减与再次应答改变后续状态;孕期免疫和婴儿被动免疫作用于不同环节。随机试验支持减少所测RSV疾病负担,自身应答和第二季随访提供了衔接证据,但不能把抗体可测、临床保护、全部感染和长期安全互相替代。
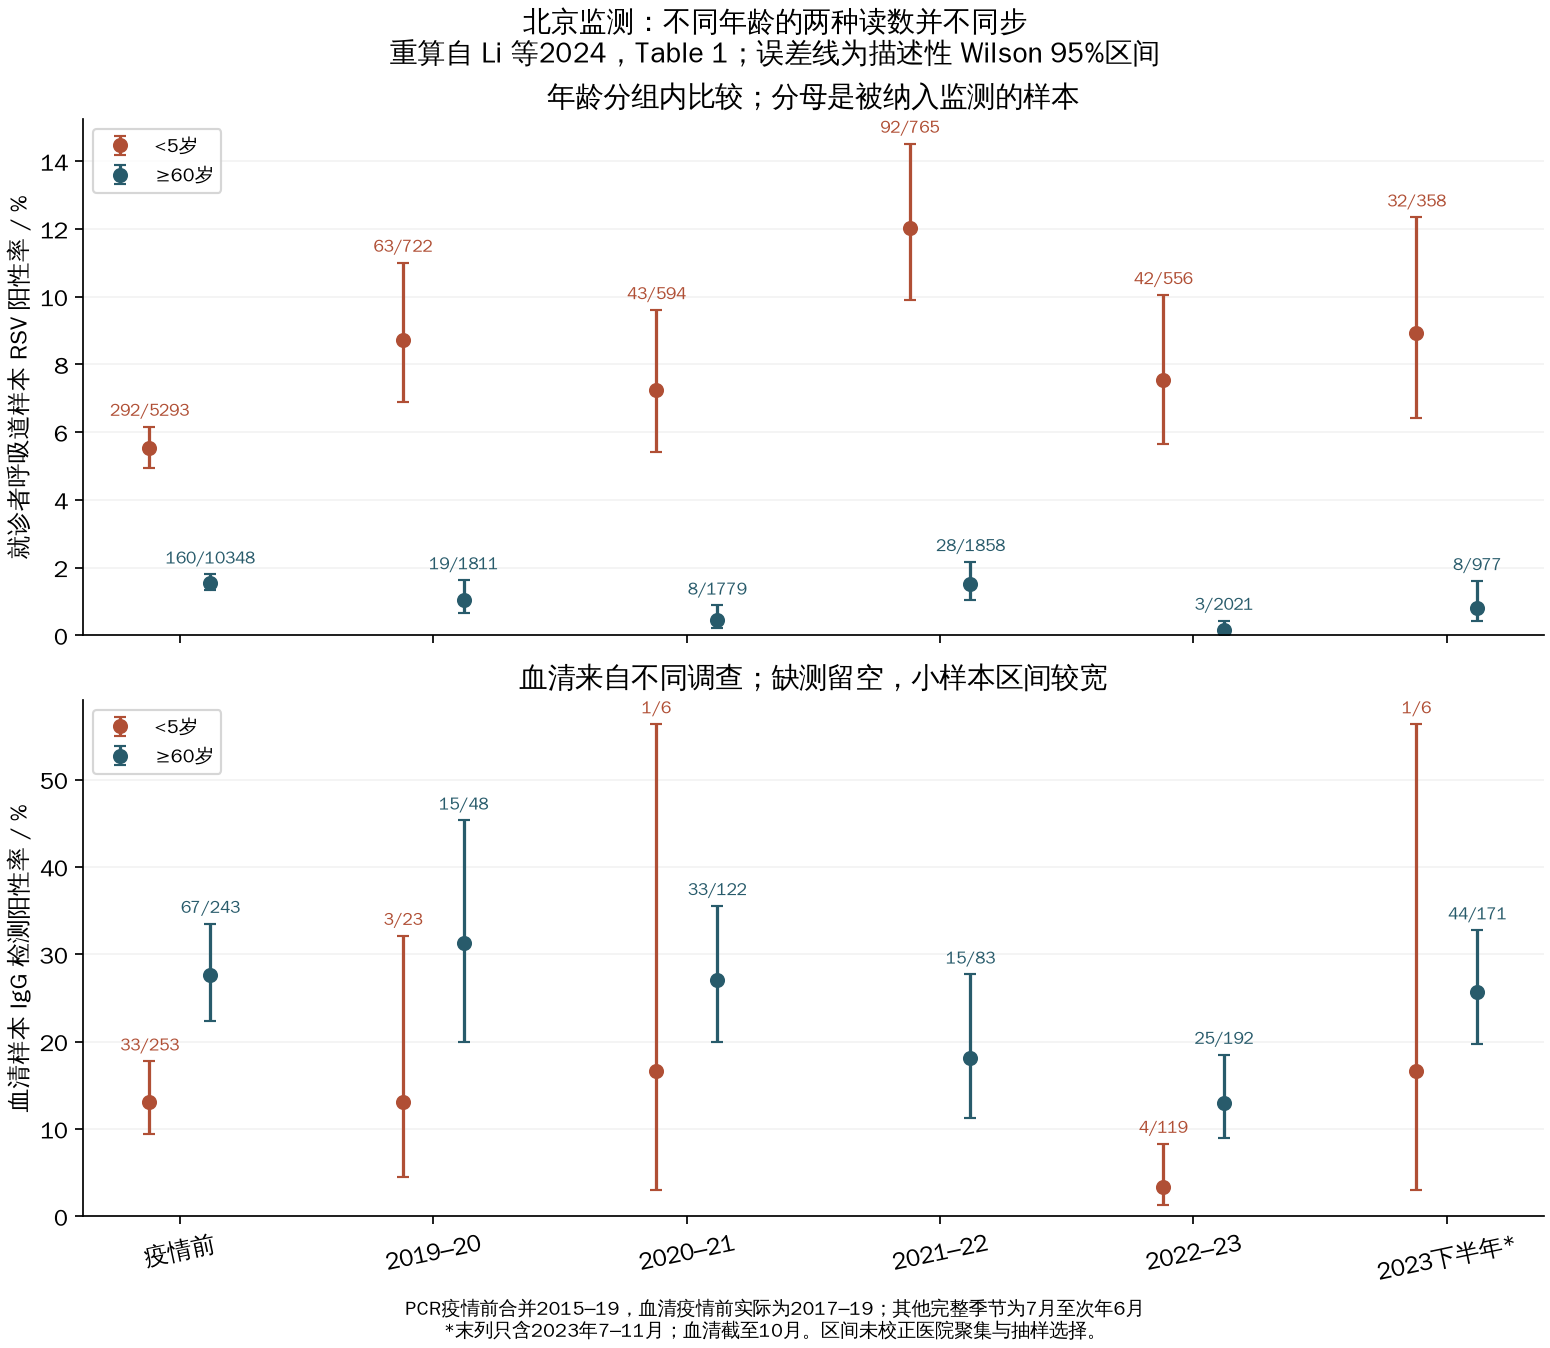
中国部分地区确有呼吸道感染节律、年龄构成和特定抗体读数改变的证据,但三年防控并非所有病原体连续三年停止传播。北京RSV资料支持研究人群历史与保护变化,同时保留接触、季节、检测和就医的竞争解释。截至2026年9月9日可得的全国周报能描述近期活动,不能据此计算全国免疫债余额、归因份额或统一还清日期。
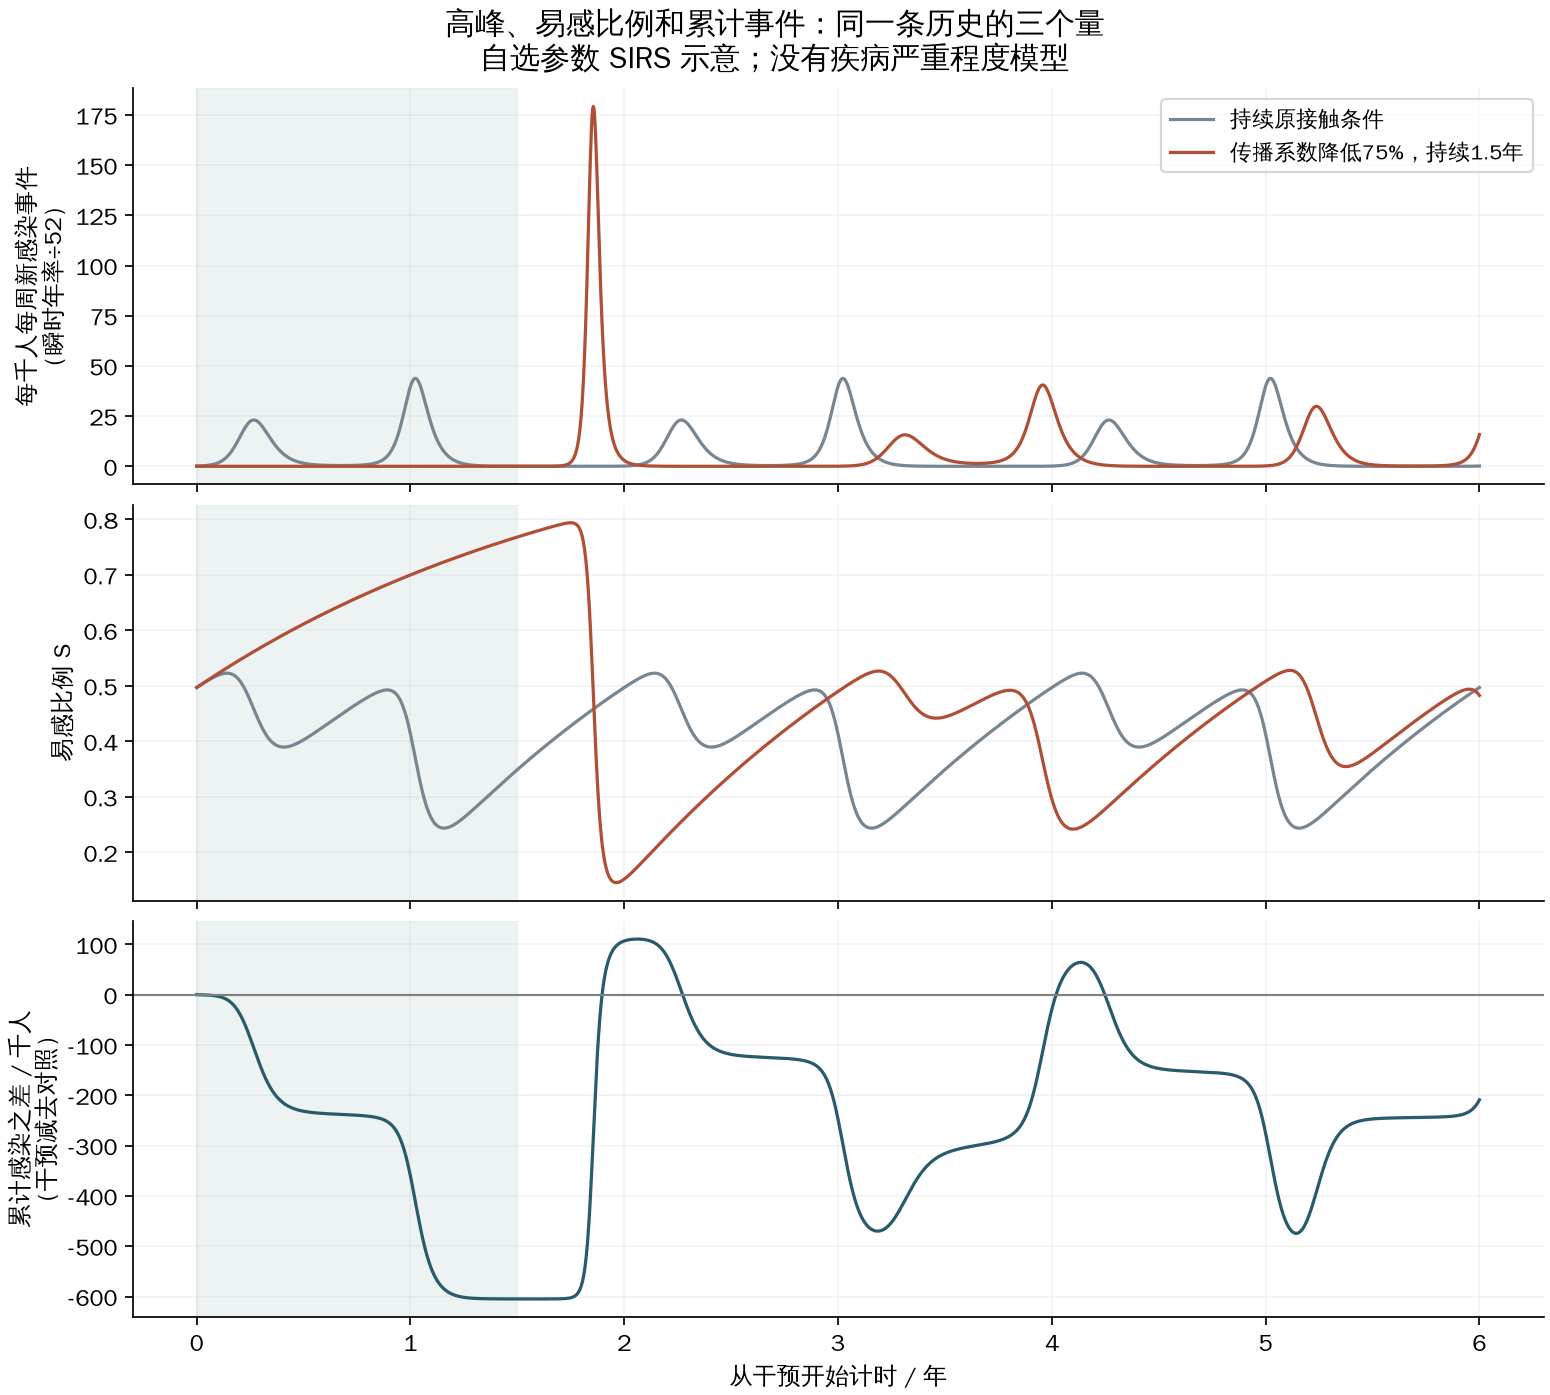
传播减少时,孩子仍在出生和长大,既有保护也继续变化;恢复接触时,人群已不是原先那个人群。但更高的下一轮峰值、更多的累计感染和更大的住院负担,是三个需要分别检验的结果。RSV模型与流感血清研究显示,年龄、感染经历、接触恢复和季节条件共同决定后续流行;仅凭反弹曲线,无法给免疫缺口分配唯一的因果份额。
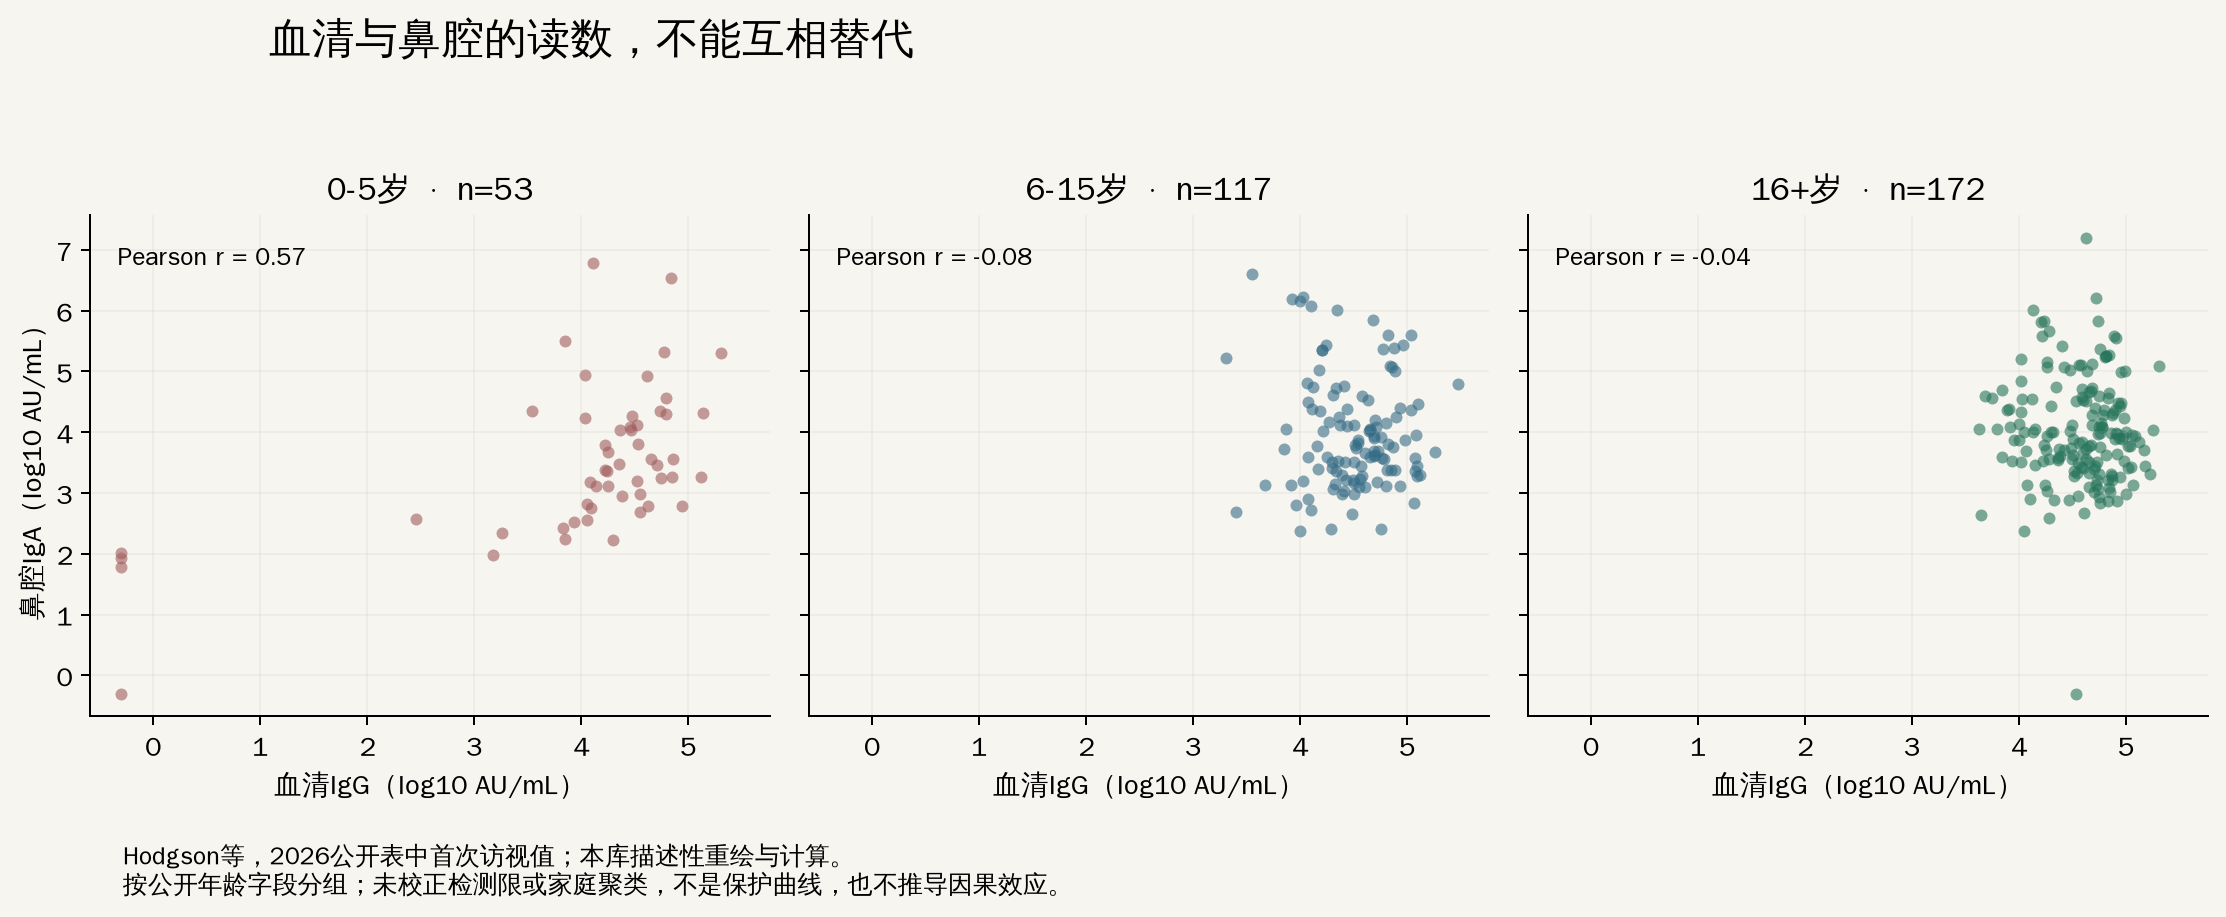
抗体读数描述的是针对某个靶点、位于某个位置的一部分保护。RSV的血清结合抗体、体外中和活性、鼻腔抗体与细胞记忆不能互相替代,预防感染与减轻疾病也需要分别检验。儿童公开数据支持某些年龄组的抗体差异;2026年社区研究为鼻腔IgA提供了新的预测证据,但模型阈值和自然抗体关联仍不能直接变成个人检测标准或干预效果。
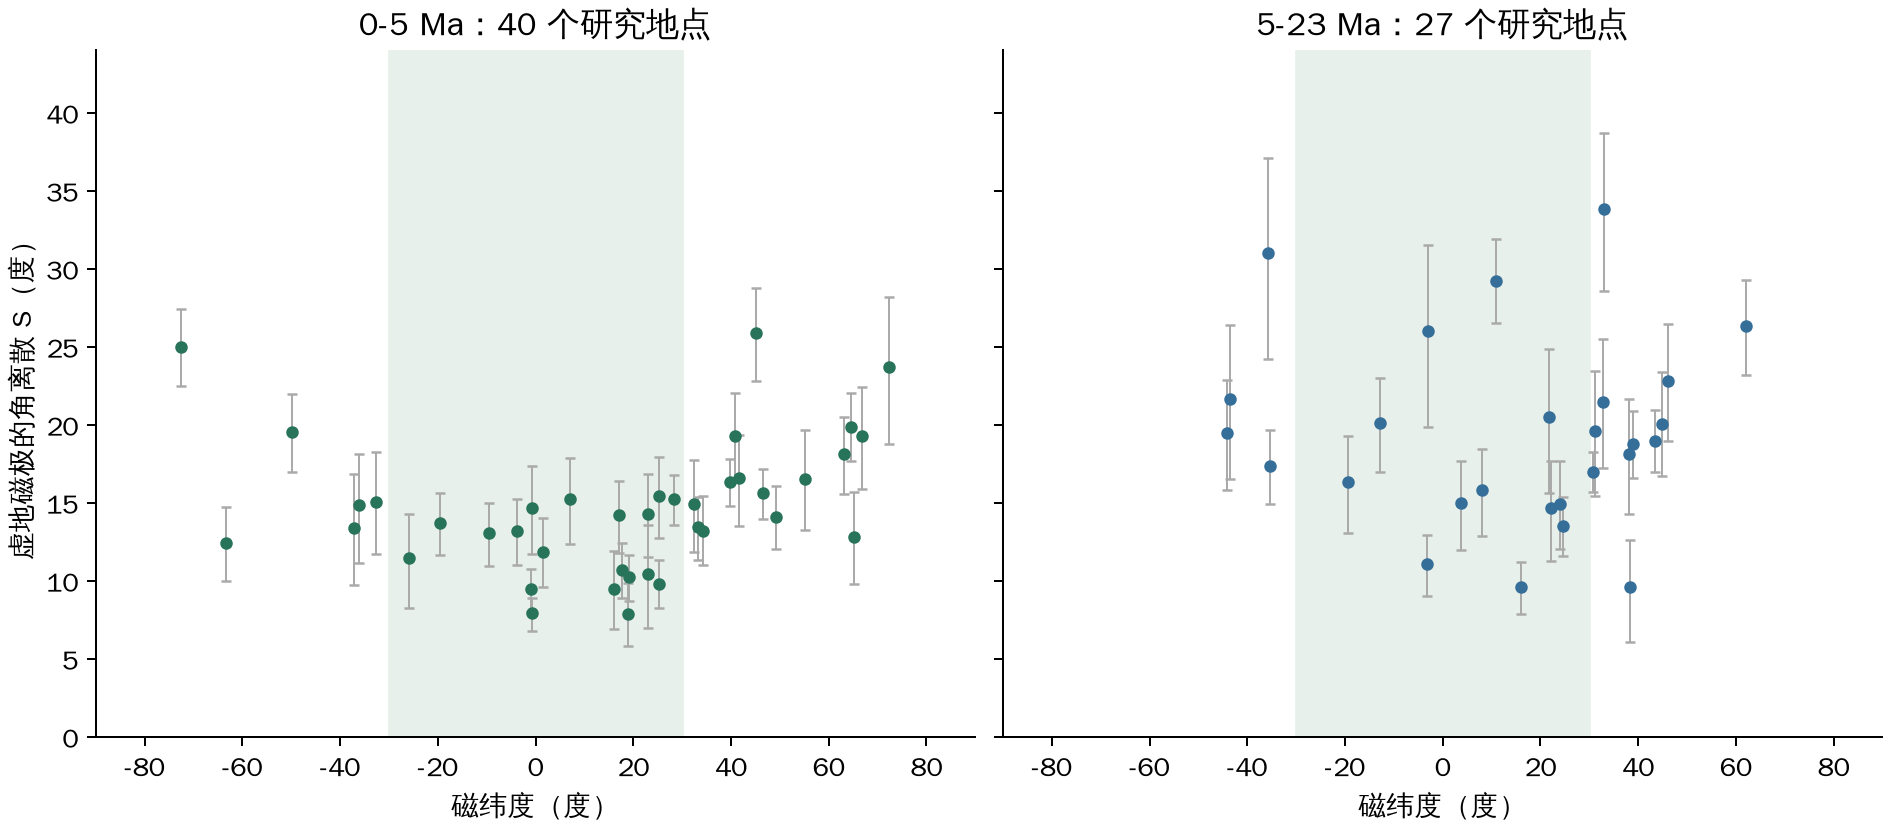
地磁场靠导电外核的流动持续补偿有限电导造成的磁能耗散;旋转组织流动,磁场又反过来改变流动。维持磁场并不等于锁定极性。三模式计算展示有界波动怎样跨越两种极性,古地磁资料与2025—2026年三维模型则说明,散热的空间分布、稳定分层和近核表面输运分别改变哪些环节,以及为什么这些结果尚不能预测下一次地磁反转。
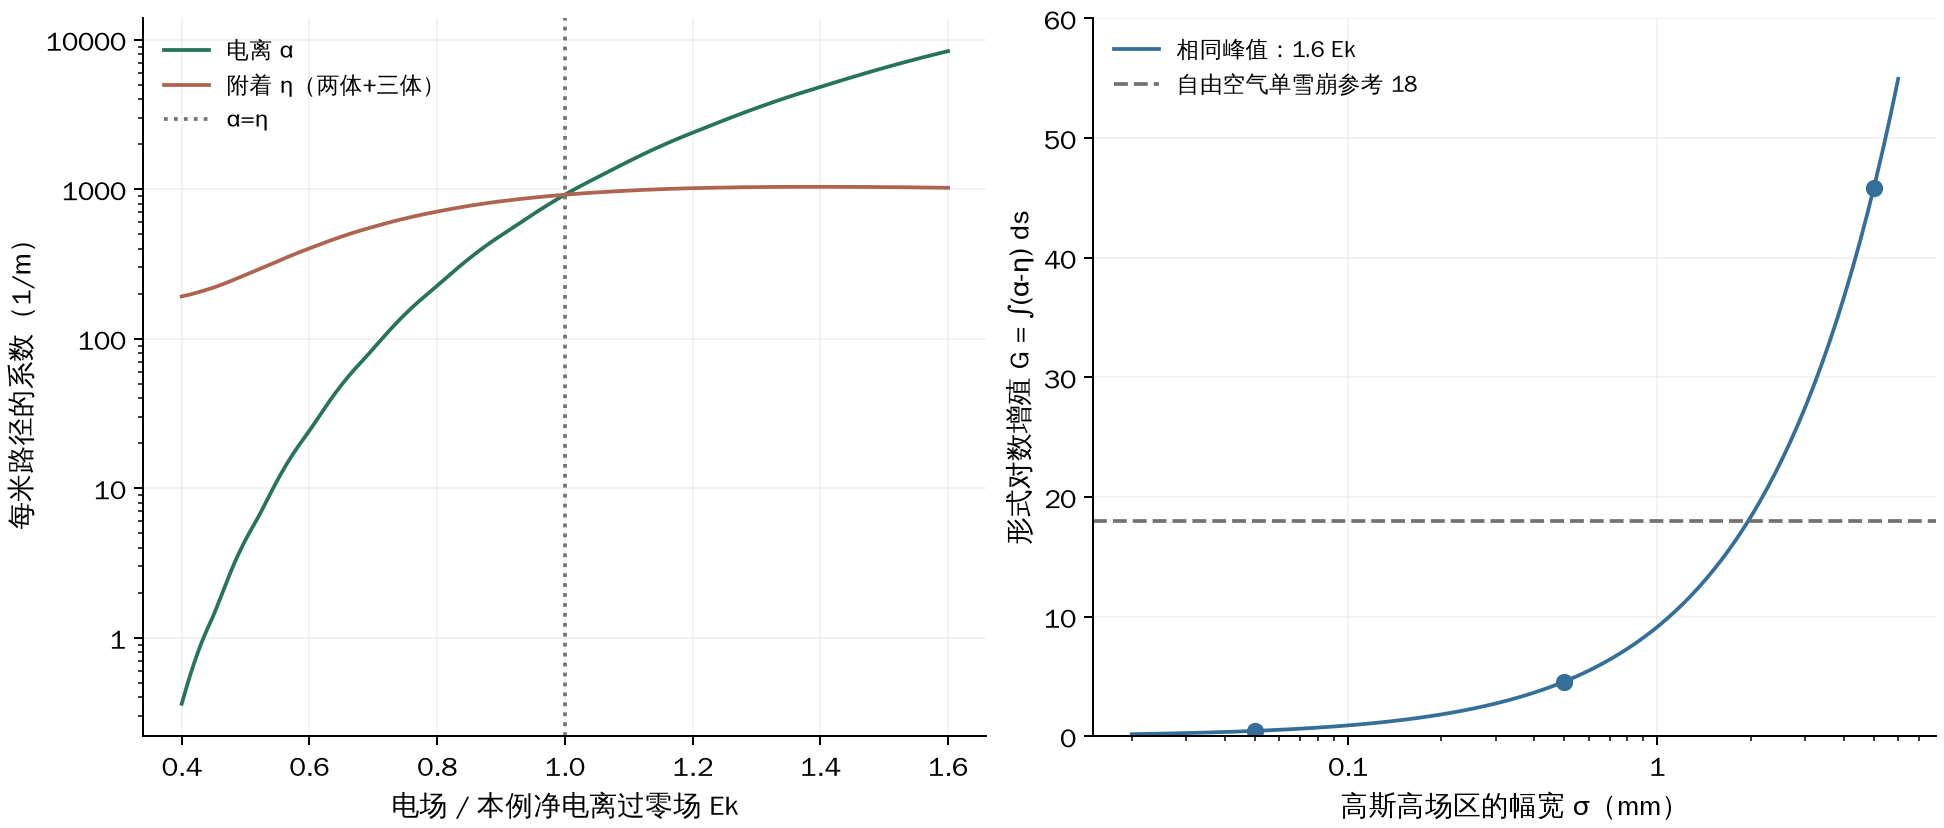
雷暴中的电场需要先支持电子增殖,再让电离活动形成可以继续延伸、维持的结构。电场峰值、作用范围、种子电子、空间电荷和气体加热分别控制不同环节。本文用空气反应数据计算有限高场区的累计增殖,比较流注起始、电子屏蔽与高能光子反馈,再结合射频偏振和机载伽马观测说明目前的证据。局部放大机制已有扎实基础,但最早的快速放电怎样触发并转成热先导,仍不能由一类波形或一套模型唯一回答。
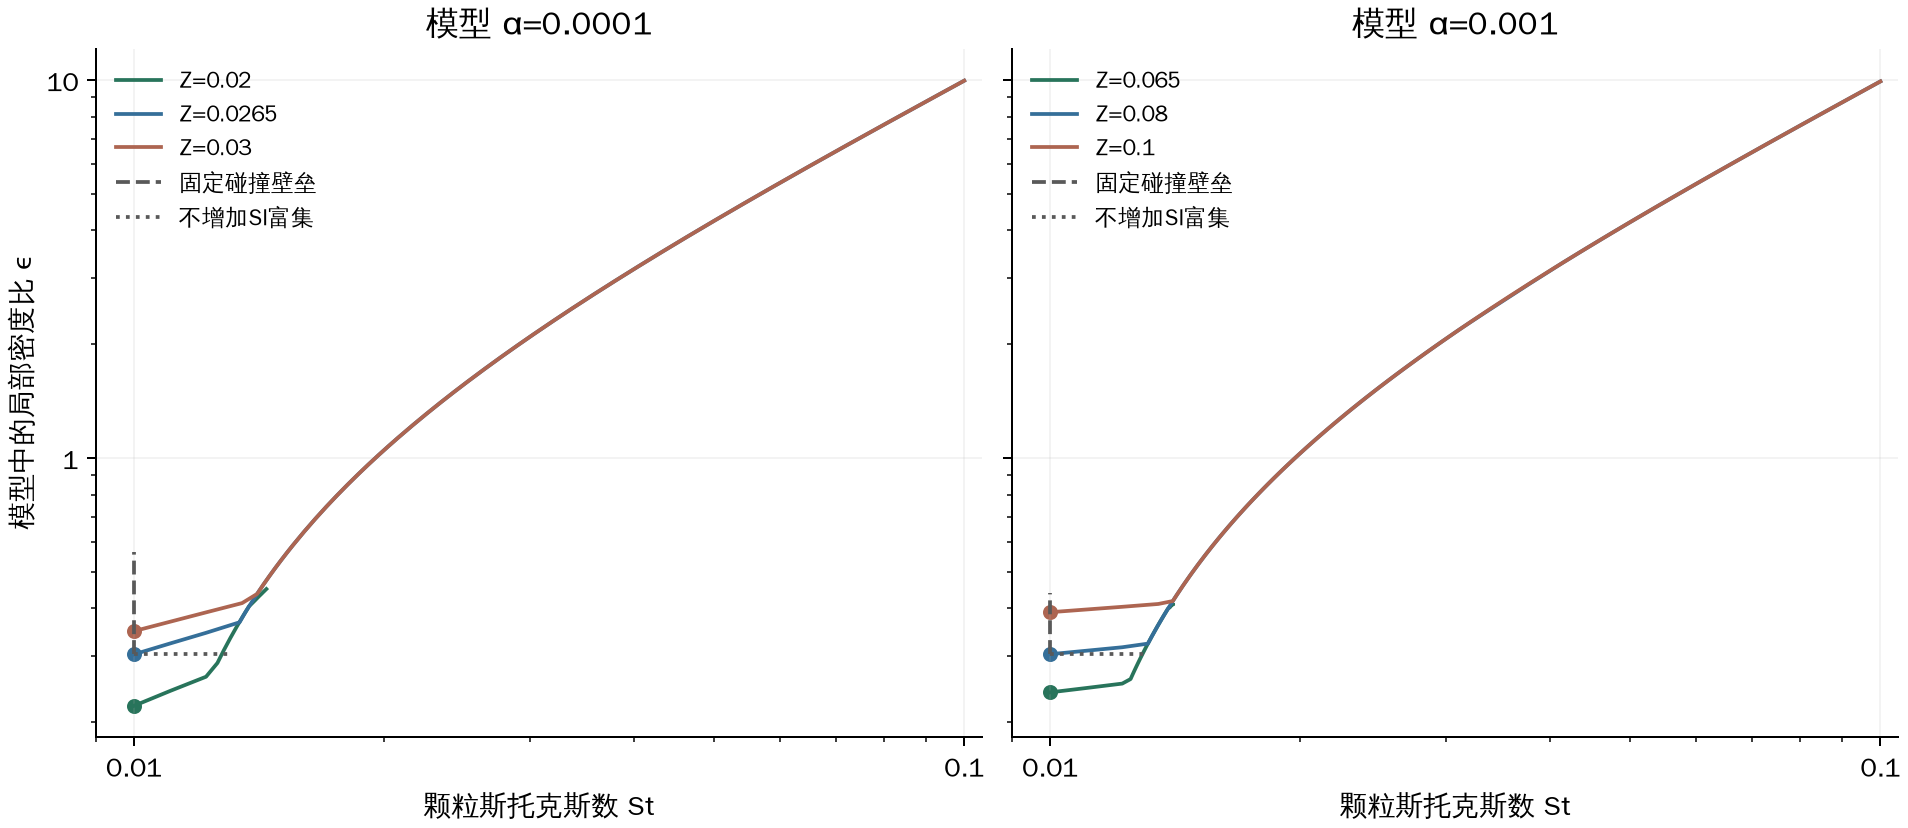
尘埃碰撞决定颗粒怎样长大,颗粒大小又决定它怎样被气体拖曳、向内漂移和集中。气固反作用能使小密度差异自行放大,压力隆起可以留住颗粒;但形成星子还需要局部自引力胜过潮汐与扩散。本篇复算气固线性反馈和一个颗粒增长模型,并比较包含自引力的三维模拟、2026年凝聚与压力俘获研究及ALMA气体旋转观测。已有证据支持多个环节协同打开形成路径,具体结果仍取决于颗粒材料、湍流、垂直结构和固体供给。
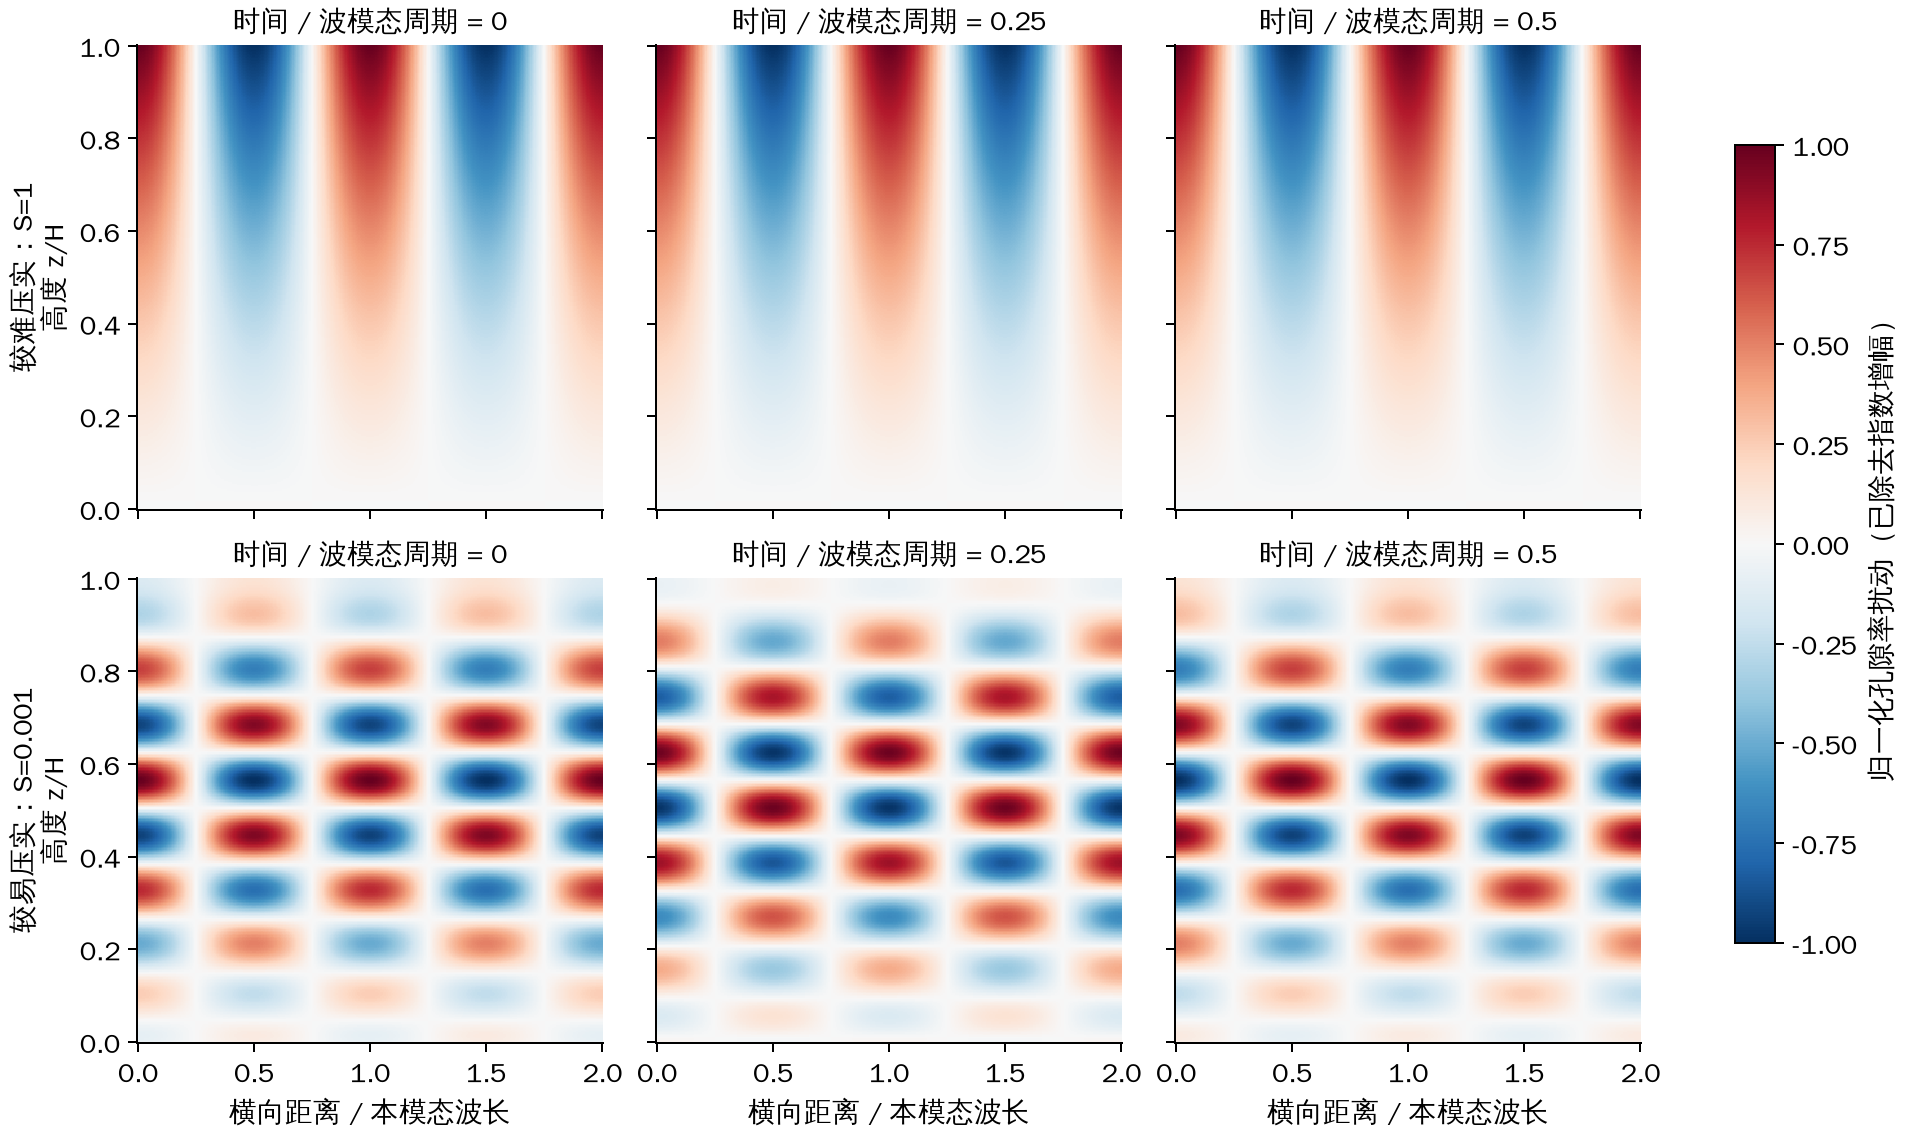
地幔中的熔体可以沿晶粒之间的连通孔隙移动,不必先有一条空管。某处稍微更通透,就可能吸引更多未达到化学平衡的熔体;反应改变矿物和孔隙,又使这条路更通。高温高压实验支持这条反馈链,但固体压实、入口补给和背景熔融会改变其结果。本文重绘19组实验条件,并复算2026年有限区域模型的初始扰动:较难压实与较易压实的两组参数分别出现通道和振荡模态。再比较能量守恒模型、剪切富集带及天然纯橄岩记录,说明何处已有机制依据,何处仍不能从模型图案直接推回地下历史。
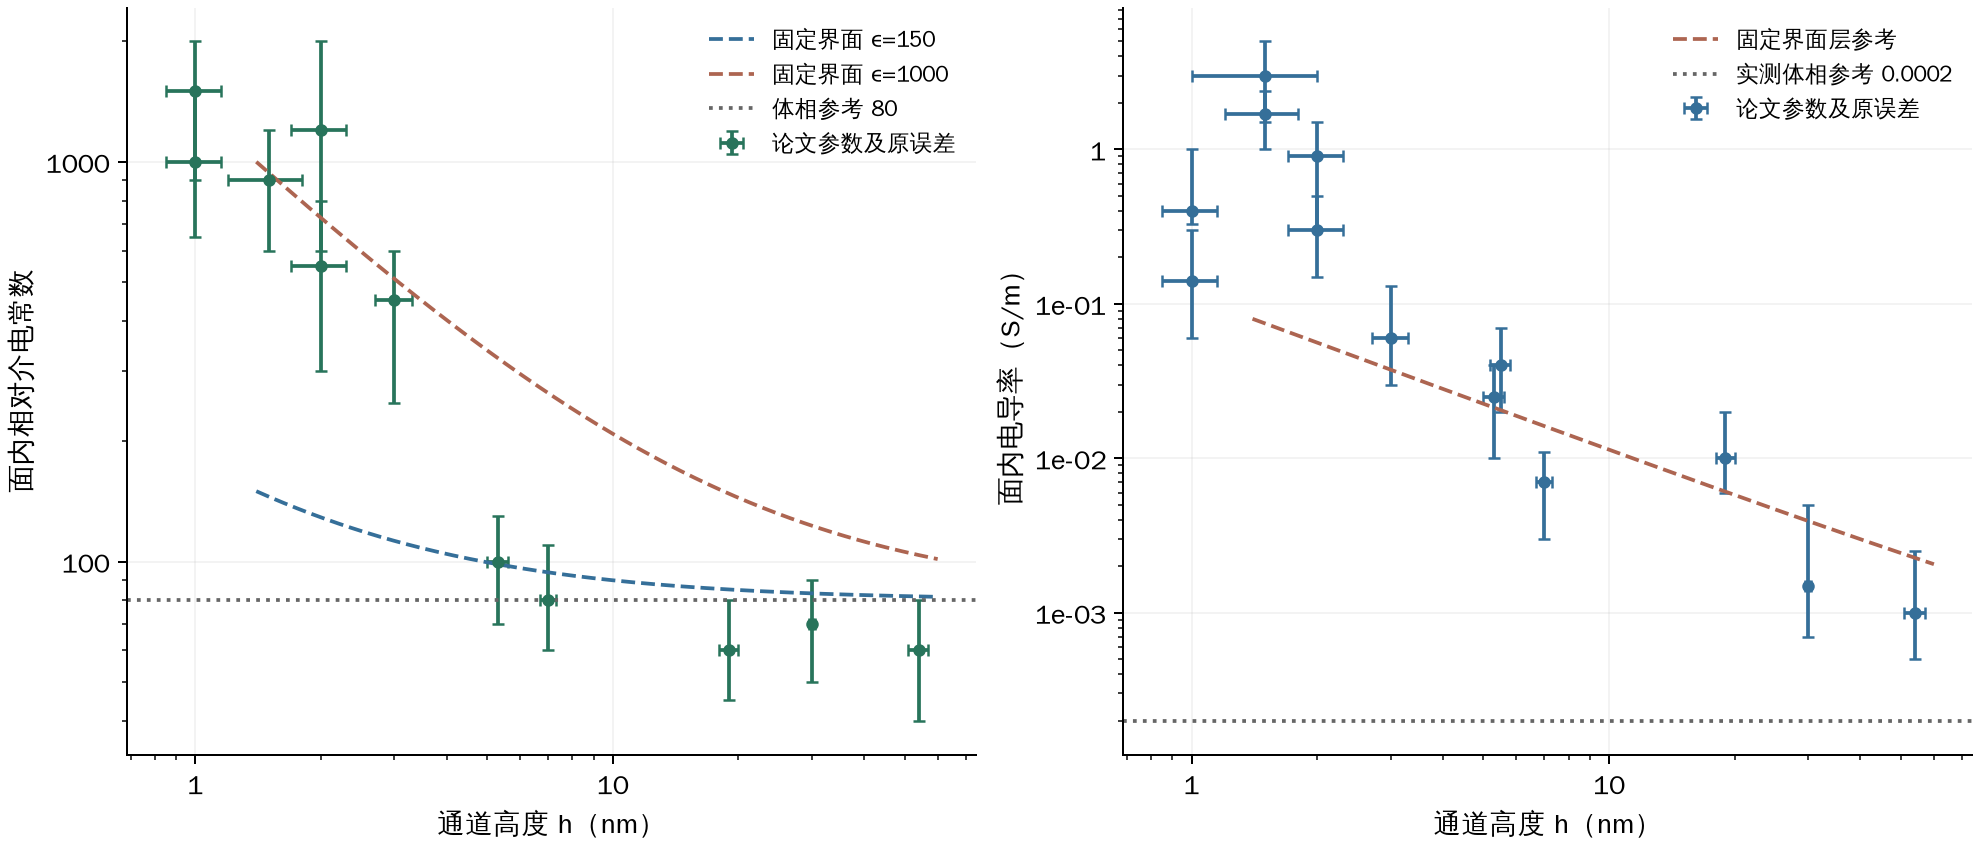
几层分子厚的水,既受到壁面的化学影响,也失去了体相水原有的运动方向和氢键连接方式。2025年的狭缝实验发现,面内介电响应和有效电导率在少层区显著增强,但最窄通道的电导率又下降。本文重绘公开参数并换算方块电导:在已报告的中心值中,少层峰不因去掉厚度归一化而消失。再用夹层电容模型说明,频率转折不能直接当作水分子的取向弛豫时间。最后比较强酸纳米液滴中的慢质子跃迁,区分电荷数量、迁移能力、几何方向与测量定义,以及尚未被单独确认的氢键机制。
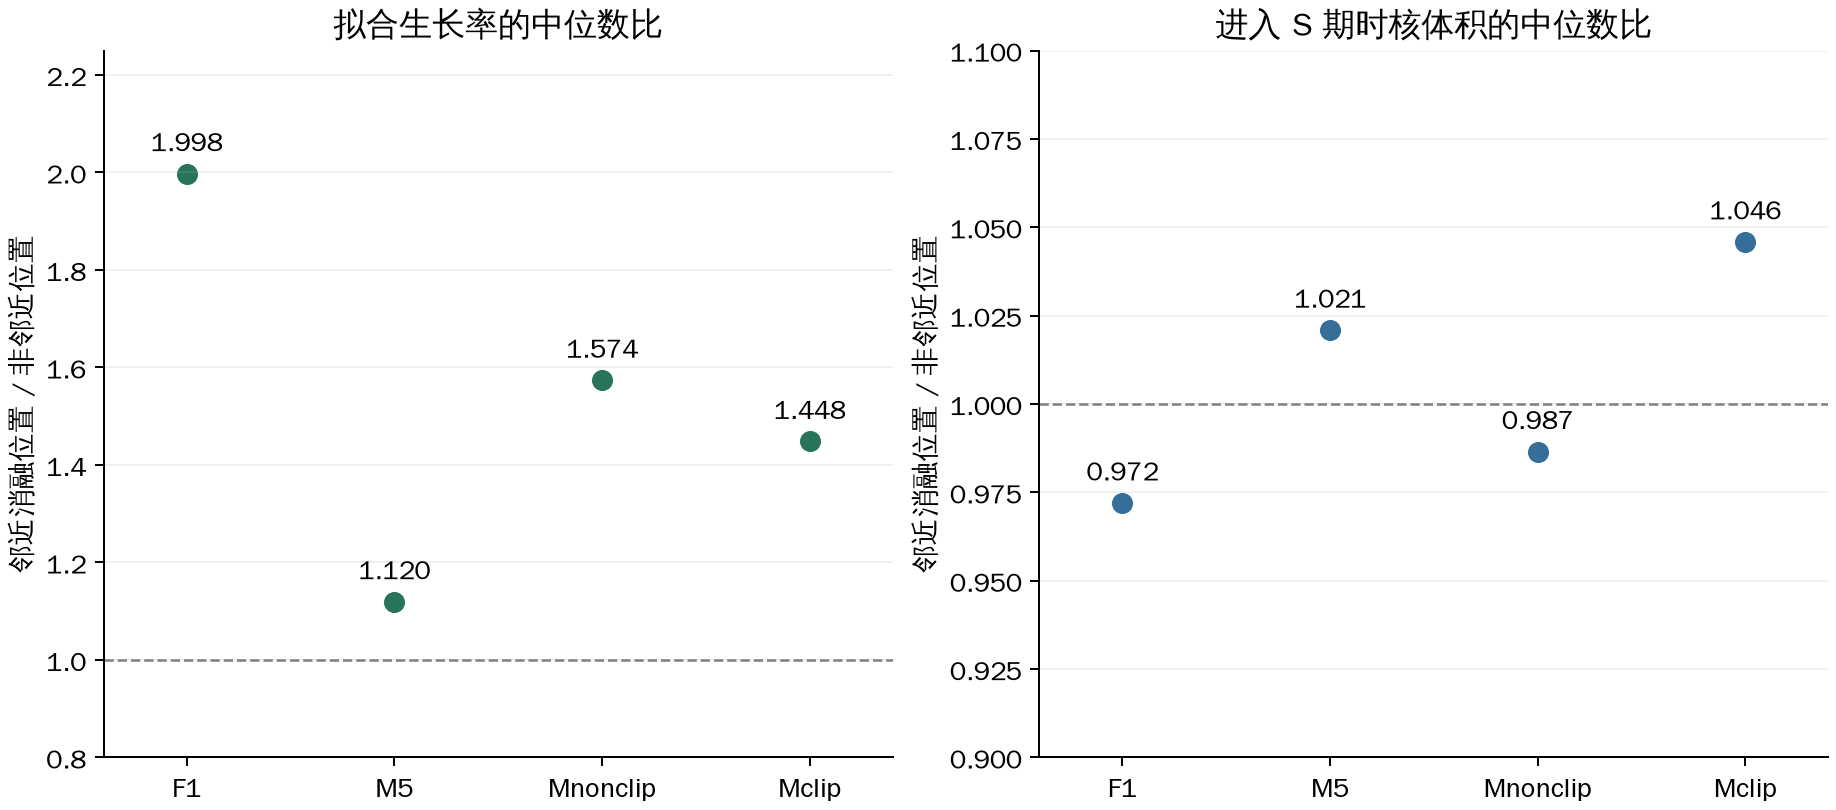
维持细胞大小,需要把每一代的偏差传回生长与周期推进过程。某些细胞能让较小的出生个体多等一段时间,再开始复制DNA;其他细胞还会调节生长速率或后续周期阶段。本篇结合2025年活体干细胞的RB家族干预与局部消融、2020年Rb稀释实验,以及2026年浓度阈值理论,用最小模型说明:抑制物被稀释本身还不够,出生时继承多少、下一轮怎样复位,同样决定能否纠正大小偏差。公开四鼠数据重绘则展示,长得更快和改变入S大小是两个不同的观测。
没有匹配的研究笔记