133
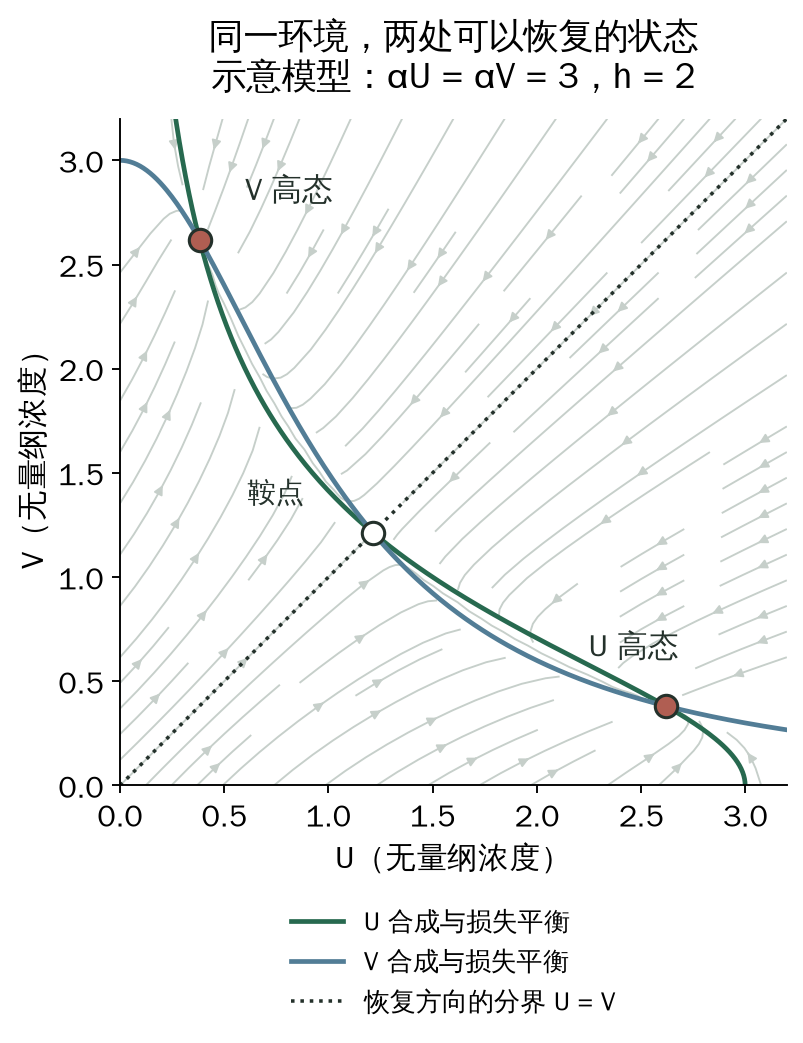
一次短暂刺激怎样让基因回路长期保持新状态?
短刺激可以暂时削弱一侧抑制,让另一侧的蛋白积累到足以接管回路;撤去刺激后,持续的合成与抑制关系维持新状态。互相抑制的连接方式还不够,反应曲线和参数需要落在双稳态范围内。本文结合原始构造、单细胞实验与最小计算,区分状态记忆、缓慢衰减和群体双峰,并说明有限分子噪声、培养条件及细胞周期为什么使记忆的保持时间成为另一个问题。
Mechanism Atlas · 现象 — 机制 — 条件
从一个可回答的问题出发,比较可能的机制,走通最小因果链,再看条件改变之后什么会变化。
短刺激可以暂时削弱一侧抑制,让另一侧的蛋白积累到足以接管回路;撤去刺激后,持续的合成与抑制关系维持新状态。互相抑制的连接方式还不够,反应曲线和参数需要落在双稳态范围内。本文结合原始构造、单细胞实验与最小计算,区分状态记忆、缓慢衰减和群体双峰,并说明有限分子噪声、培养条件及细胞周期为什么使记忆的保持时间成为另一个问题。
浓度感知的精度取决于观察期间获得了多少新的统计信息,而不只是眼前有多少个分子。扩散把分子送到受体,重复访问和长时间占用又使记录彼此相关;同一份结合记录,用空闲等待时间估计浓度,在简化模型的长记录极限下可将占用比例法的方差降到一半。增加受体会遇到共同供给的限制,封闭空间和探头位置则会改变相关时间。近期研究进一步表明,理想无扰监测器改变空间权重也能改善精度,但不能把这种数学改进直接当成真实细胞已经采用的策略。
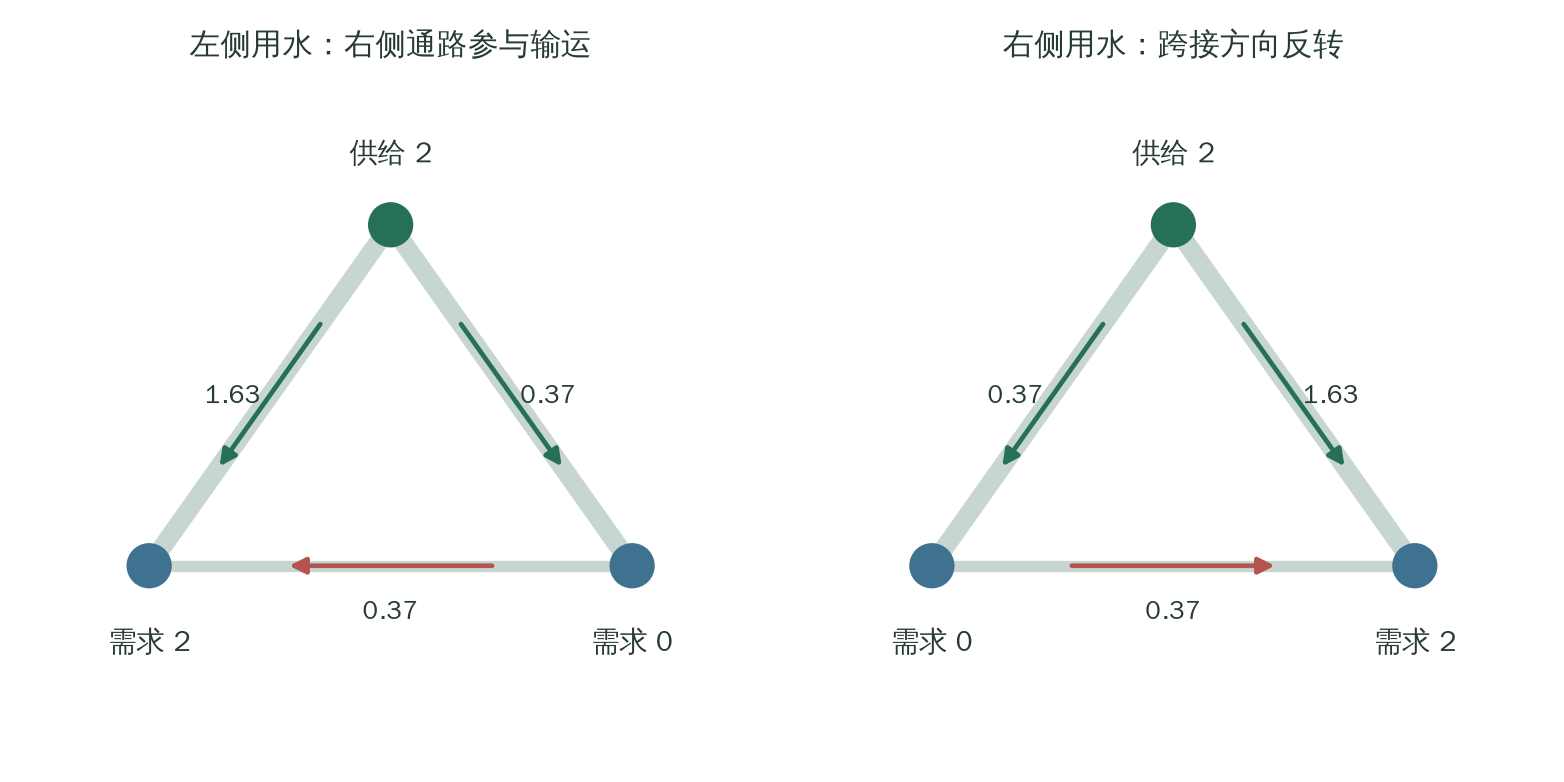
环路提供的是改道的可能性,但额外通路也要占用建造资源。叶脉切割实验显示,冗余能保护受损后的输运,不过效果取决于损伤位置与叶脉层级。在线性网络模型里,仅让全部需求同步变大变小不会改变最优结构;不同地点轮流用水时,跨接边却可能降低平均耗散,即使它的平均流量为零。本篇用同预算的三节点网络算清这个区别,并说明为什么极细的环路未必具有足够的抗损伤能力。2026年的镜面草研究进一步表明,解释环路的形成还要考察发育中的信号与几何关系,不能只凭结构有利就认定它由某个优化目标产生。
同样的物种库、同样的环境,只是把接种顺序调换,群落可以走向完全不同的结局——先到者耗光资源挡住后来者(生态位预占),或者把环境改造成适合自己同盟的样子(生态位改造)。但“顺序有影响”不等于“历史被永久记住”:历史造成的长期差异可能来自真正的替代稳态,也可能只是收敛很慢的暂态,直接操纵实验中两种情形都被证实过、还有相当比例无法定论——只有跨世代的观测与扰动实验才能区分。判断历史效应会不会持续,要问三件事:机制是预占还是改造、结局是暂态还是稳态、观测的是分类组成还是功能。
在合成大肠杆菌系统中,删除一个氨基酸合成基因和另一个代谢基因,可以得到互相补给的菌株:失去某种合成功能的适合度收益可超过过量生产其他氨基酸的代价,多数受试配对表现优于自给自足的野生型。共存之后,交换反馈、稀释率和资源供应还会影响群落趋向稳态、持续振荡或崩溃。在另一套氨基酸交换系统中,模型展示了特定条件下振荡如何通过资源的时间分离排除欺骗者;实验也观察到实际构建的双缺陷菌被振荡群落排除,但没有确认模型假设的生长优势。分工的收益、动态结局与抵御入侵的能力,需要分别判断。
循环剪切的非布朗悬浮液能把训练振幅写进粒子构型:反复剪切让粒子重排到互不碰撞的可逆态,不可逆性恰好在越过训练振幅时重新开始。多个振幅可以同时写入,但无噪声地持续训练会逐步擦掉较小振幅的记忆——因为对大振幅可逆的构型对小振幅必然也可逆。噪声阻止系统到达这个不动点,反而保住了记忆。这与磁体等滞回体系的返回点记忆是两类不同的机制。
在拥挤的培养单层中,ATP 状态与离子调控参与细胞排出;在肠道模型中,改变邻居的收缩能力就能改变细胞的去留。两条研究路线给出了不同强度的因果证据,也留下了共同的问题:局部变化怎样变成可靠的组织维护。
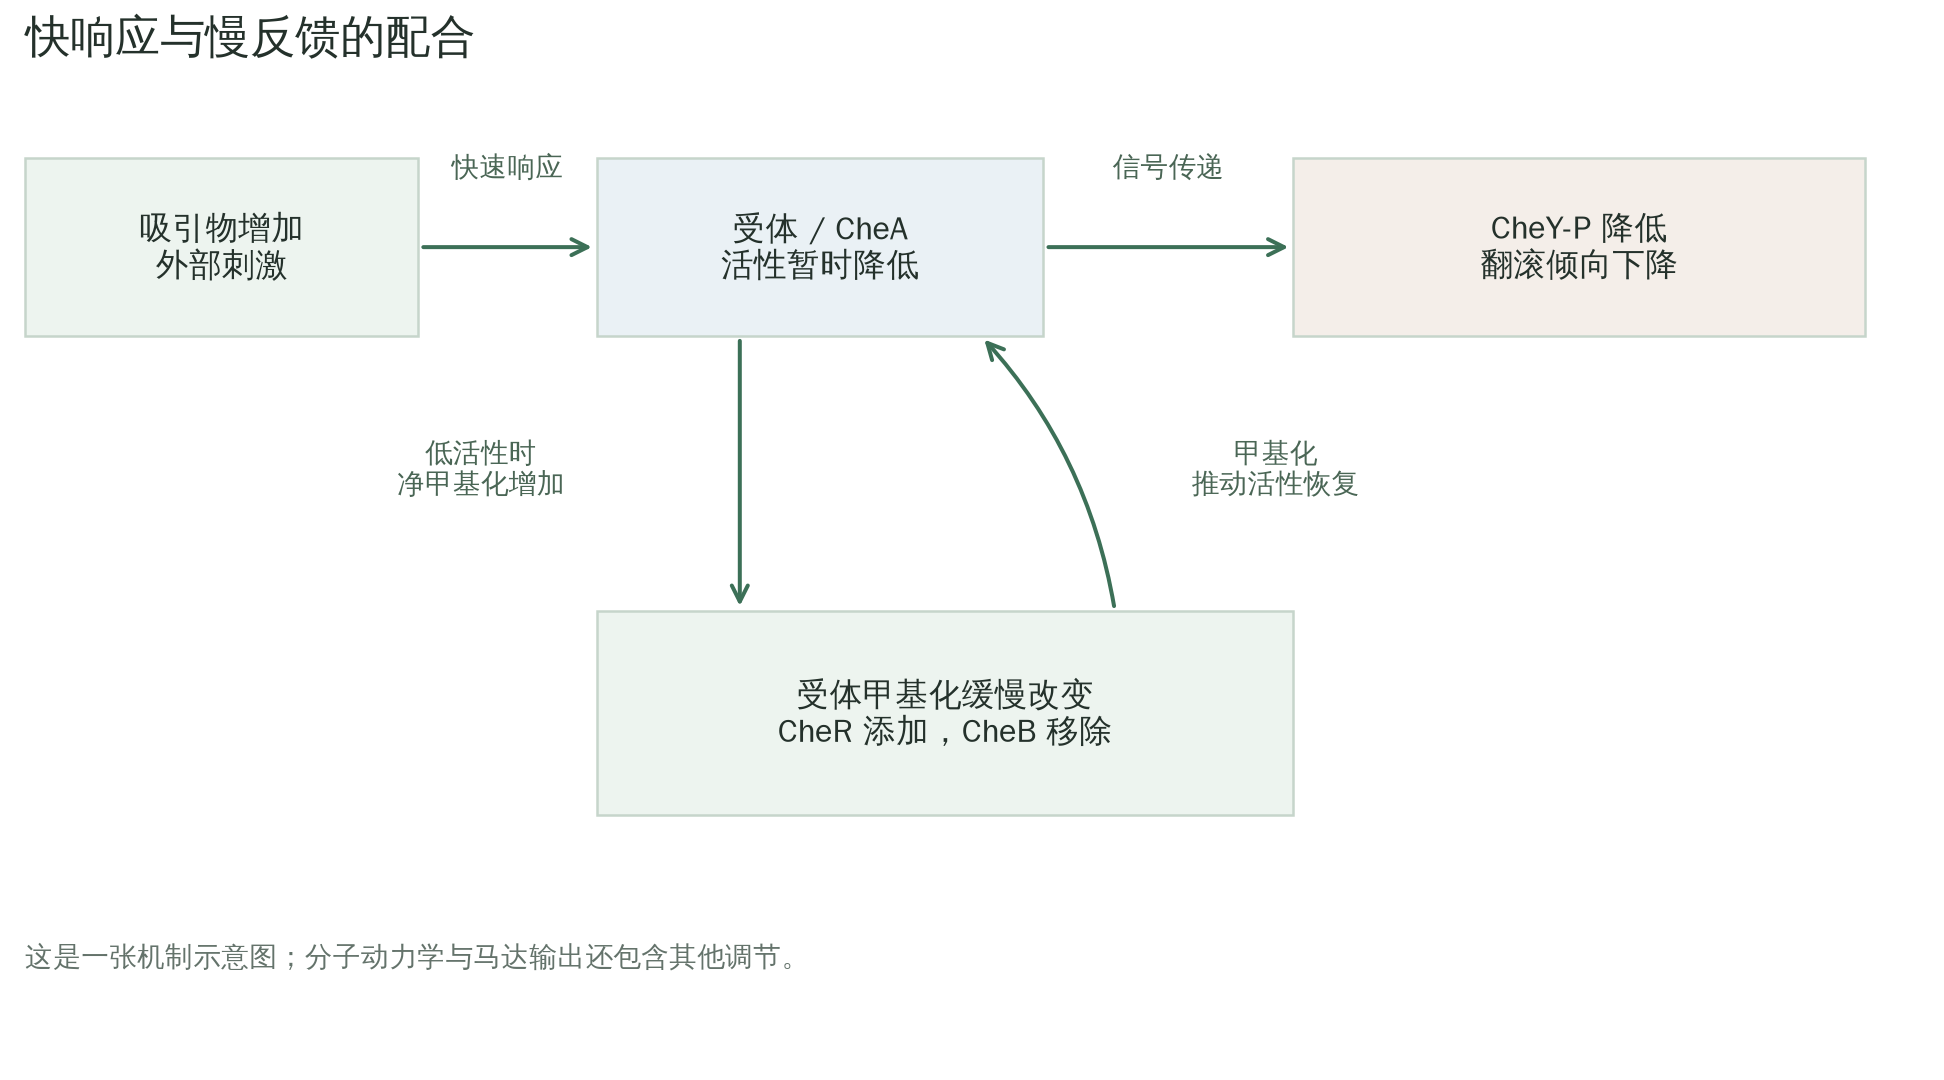
刺激没有消失,细胞却能恢复响应。趋化网络用快速信号传递与缓慢受体修饰实现这种适应;关键是反馈怎样积累偏差,以及它在什么条件下会失效。
没有匹配的研究笔记