121
热为什么有时会像波一样传播?
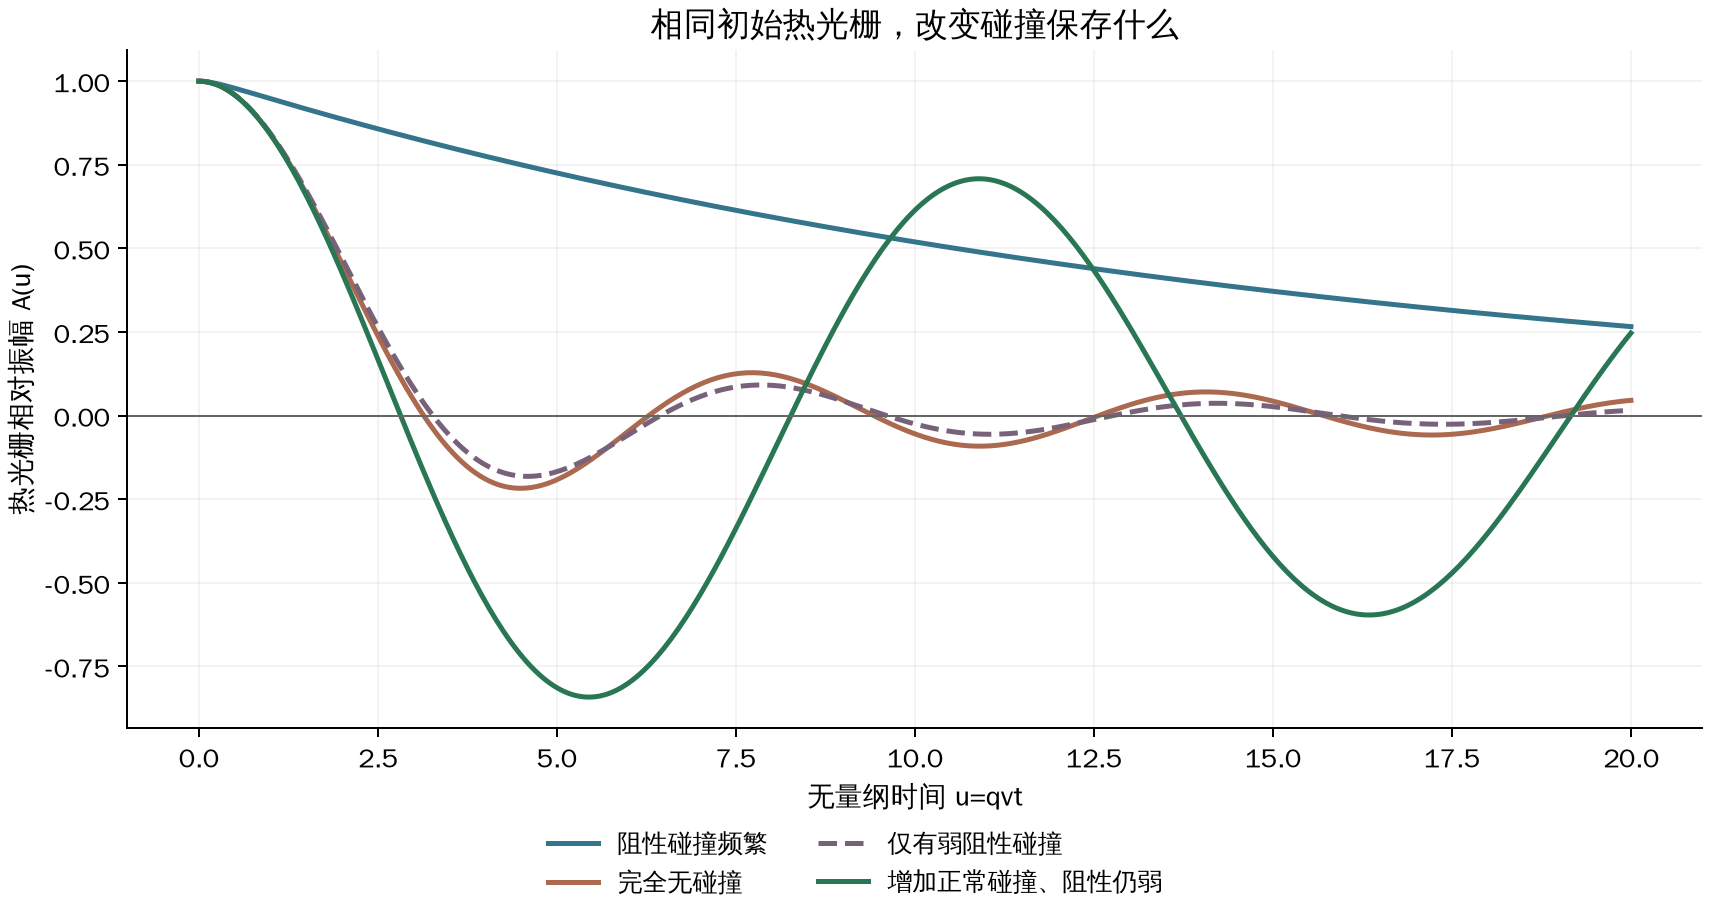
热扩散只是能量传递的一种宏观形式。当声子之间频繁交换能量,却较少丢失整体漂移的晶格准动量时,热流不能立即跟随温度梯度,温度扰动便可能形成衰减的波。本篇从2019、2022和2026年的石墨热光栅实验出发,用保留正常与阻性碰撞的最小动力学模型解释扩散、弹道和集体波动的区别。模型也给出一个边界:无碰撞的能量叠加同样可能出现负光栅信号,确认第二声还需要样本、尺度、散射与测量方式的共同证据。
Mechanism Atlas · 现象 — 机制 — 条件
从一个可回答的问题出发,比较可能的机制,走通最小因果链,再看条件改变之后什么会变化。
热扩散只是能量传递的一种宏观形式。当声子之间频繁交换能量,却较少丢失整体漂移的晶格准动量时,热流不能立即跟随温度梯度,温度扰动便可能形成衰减的波。本篇从2019、2022和2026年的石墨热光栅实验出发,用保留正常与阻性碰撞的最小动力学模型解释扩散、弹道和集体波动的区别。模型也给出一个边界:无碰撞的能量叠加同样可能出现负光栅信号,确认第二声还需要样本、尺度、散射与测量方式的共同证据。
核孔的选择性来自拥挤、柔性蛋白链与运输受体的动态相互作用。受体让货物更容易进入屏障,却不意味着结合越牢、每次穿过越快;受体本身还会改变屏障的组织。本篇结合2025年原生核孔高速成像、单分子轨迹与公开荧光数据,用两个最小速率模型区分穿过概率、停留时间、通量和核内积累,再说明Ran循环如何给双向随机运动加上装卸方向。2026年的核孔装配实验进一步提示:改变屏障组分也可能改变孔的成熟过程,不能把所有运输变化都归因于同一种筛选机制。
分水岭不是固定的墙,而是两侧地形共同维持的分流边界。一侧河道下切后,邻接坡面的侵蚀与输运可能把边界推向另一侧,新增汇水又会改变河道的侵蚀条件。但多雨不一定意味着边界移动更快,泥沙既能磨蚀河床,也能覆盖它。本文用两出口地形计算和受控降雨实验解释渐进调整,再用加拿大2016年冰川退缩导致的改道事件说明突发袭夺。最后区分地形指标给出的条件性趋势与重建历史所需的年代、物源和水文证据。
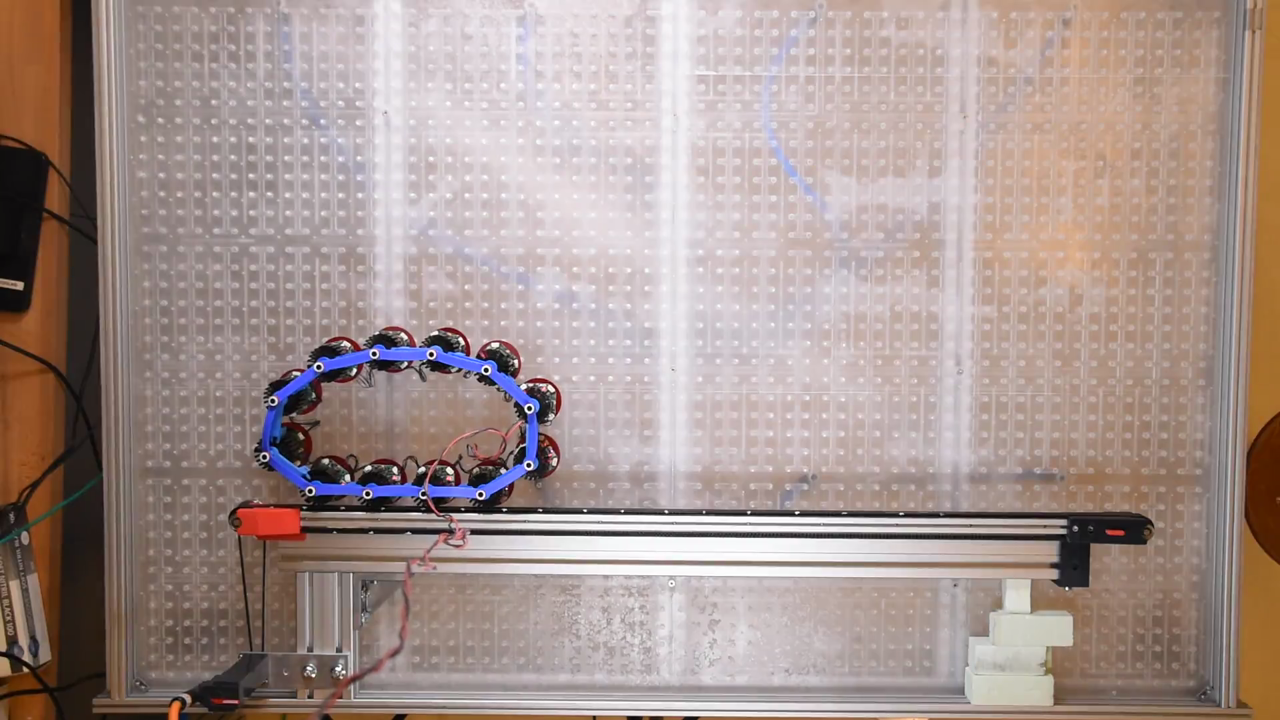
局部电机不断供能,还需要结构和环境把能量组织成动作。2025年的主动铰链材料用邻居角度控制本地力矩,使两个形变方向非互易地耦合。较弱驱动时,重力与接触维持形变循环,循环再通过滚动与环境交换动量;较强驱动时,单元自身失稳,电机饱和使振幅稳定,并能支持不同步态。本篇复算了两条循环路线、能量收支和起振条件,并从作者角度记录重算剪切相位与滚动速度。原型依赖外部48V电源、气浮台和受控边界,不能直接等同于普通地面上的独立机器人;2026年的连接性研究还表明,局部驱动增强有时反而削弱宏观奇弹性响应。
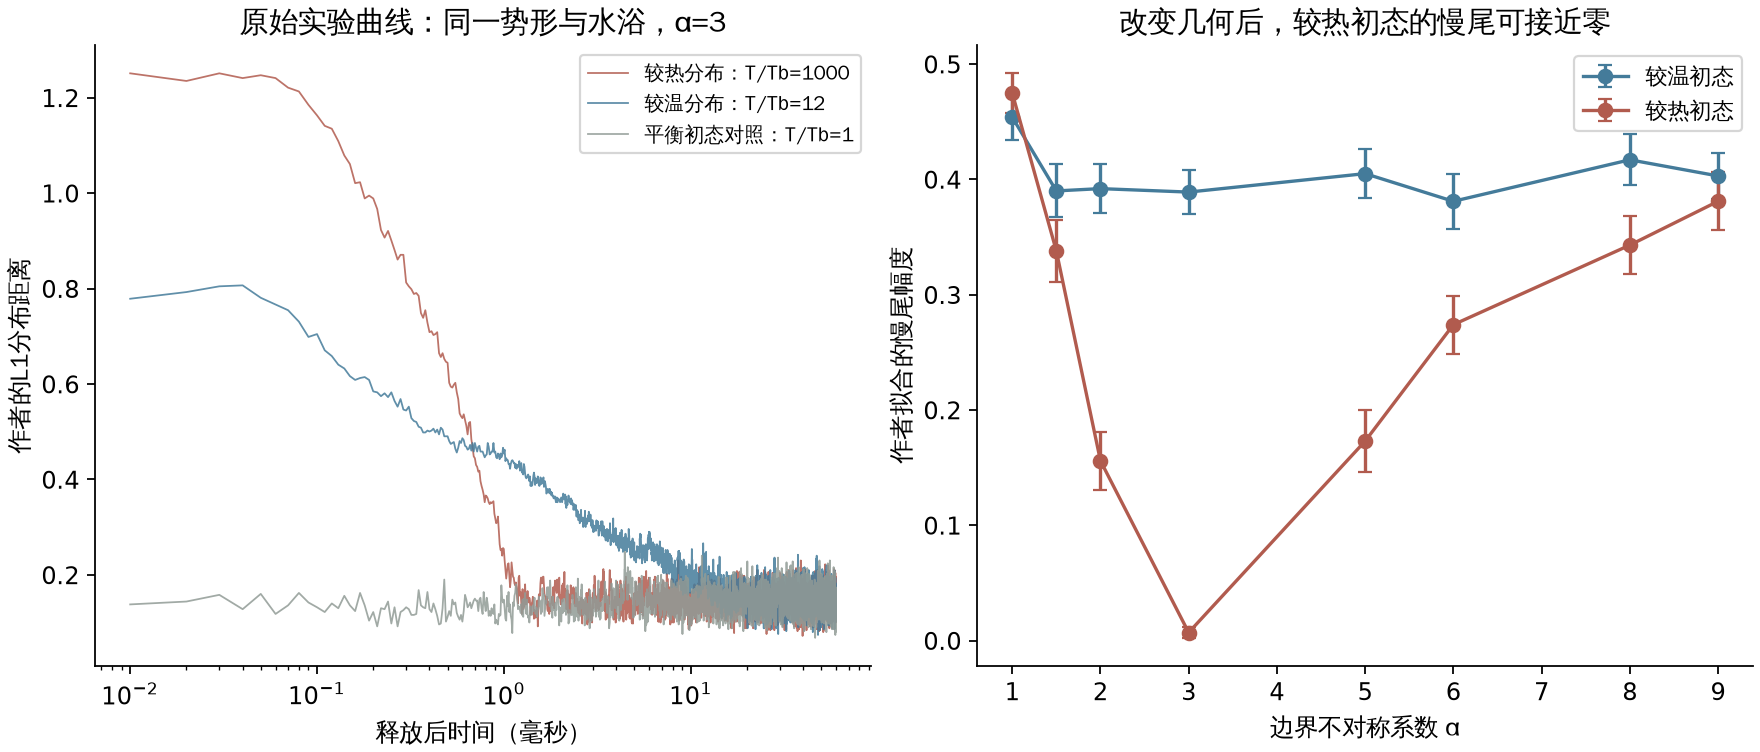
起点离目标有多远,不完全决定多久能到达;还要看偏差落在哪些快慢不同的松弛方向上。受控胶体实验通过制备不同的起始位置分布,在同一水浴、同一势形下看到更远的初态先接近平衡。本篇重绘作者数据,并用详细平衡三态模型算出一个避开最慢模态的热初态:严格精度下松弛显著加快,但放宽达标阈值时顺序可以反过来,初温偏差也会恢复长尾。2025年的单离子实验与热主序理论进一步说明,初态相干性、慢模态简并和距离定义都会影响加速结论。Mpemba效应在这里是一条关于状态空间中路径与慢尾的机制,而不是“越热一定冷得越快”。
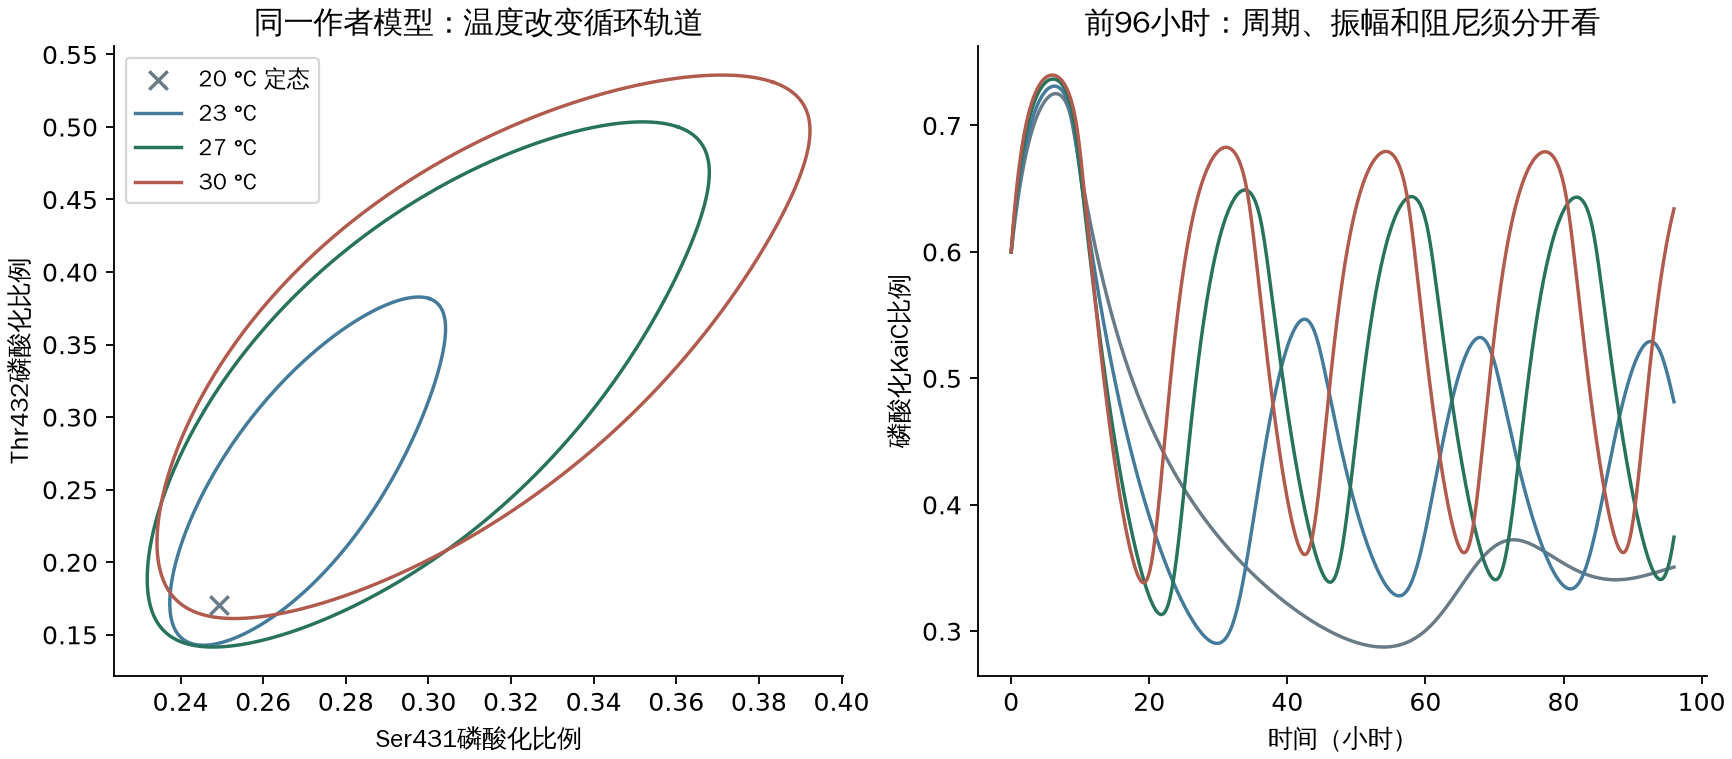
温度补偿不是所有分子动作都保持原速,而是整套时钟绕完一圈的时间变化较小。KaiC的低温度敏感ATPase提供了重要线索,突变实验也把局部酶活性与周期联系起来,但有温度补偿的酶活性仍可能没有振荡。KaiB折叠转换和KaiA对复合物的反向调节则改变了反馈的等待与切换条件。2026年的新预印本将这些问题推进到可测的双稳态和反应速率:本篇按作者公开模型复算,反应加速与结合反馈的温度效应部分抵消,23至30°C间周期约从24.52小时变到23.04小时,振幅却明显增大;20°C模型最终停振。证据支持多层机制共同维持周期,尚不足以把补偿归结为一个已完全确定的分子步骤。
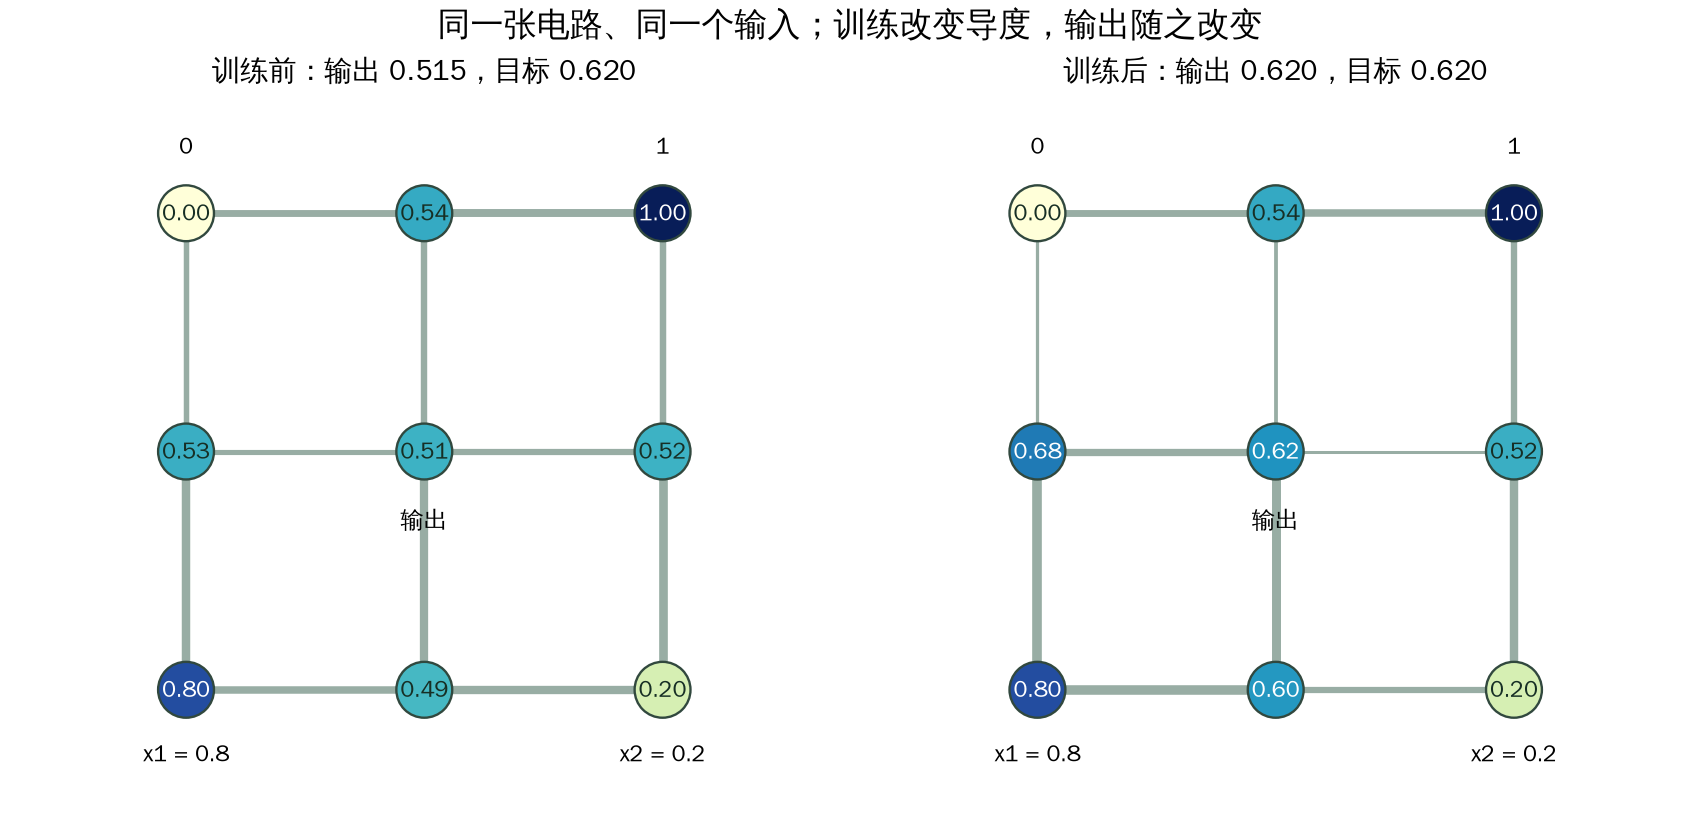
电路元件不必各自知道正确答案,前提是训练协议把答案的影响送进它们能测到的局部量。可调网络比较输入相同、输出约束不同的两个状态,各条边用本地电压降的变化更新参数。在线性、单输出、小扰动条件下,这个更新与任务误差梯度相差一个正比例因子;九节点复算验证了这一联系,也显示同样的线性电路无法学出XOR。32组晶体管双边组成的真实装置已学会XOR和非线性回归,但仍需要目标输入、控制电路和参数存储,非线性推导也有近似条件。理解它的关键,是分清物理状态的松弛、参数的学习,以及外部装置怎样把任务信息接入这两个过程。
膜上的蛋白质斑点不会因为“能凝聚”就自动具有固定尺寸。膜结合可以提高局部浓度,却也会减慢组分运动;与体相交换则可能提供另一条输运通路。Whi3重构实验显示快速进入亮度平台,跨膜耦合实验却提醒我们:区域增长可因新凝聚体进入而加快,这不等于封闭体系粗化加快。2026年的理论进一步表明,主动解离发生在浓相还是稀相,会给出相反结果,而且更快的交换不总是更强的尺寸控制。本篇用守恒物料池模型检验慢化与稳定性的区别,并区分单个斑点稳定和群体靠持续出生、解体维持分布。
cohesin能与NIPBL一起利用ATP,把连续DNA中的一段收进逐渐扩大的空间环;这项能力有体外重构支持,但分子每一步怎样交接DNA仍未完全闭合。CTCF也不是不透水的墙:在一组受控张力实验中,从N侧和C侧相遇的阻挡比例分别为54/119与18/115,且阻挡随DNA张力变化。本篇重绘事件计数,用有限寿命模型区分到达、阻挡和保持,并对照活细胞动态、酵母转录驱动的竞争证据及近期扭转研究。一个清晰的接触图样可以来自不断更新的环,不能直接读成一个永久固定的环。
同样是二氧化硅、同样先放电,也不意味着两个接触表面处在同一状态。2026年的球与板实验把起电方向的改变连到空气中吸附的微量含碳物质:处理哪一侧,哪一侧就更倾向带负电;静置后,吸附层与起电倾向都在小时尺度上变化。PDMS实验则显示,接触本身会改变样品,放掉电荷也不会清除接触历史。本篇重绘作者公开数据,并用三样品算例说明跨时刻比较如何形成表观起电循环。表面差异已能被干预,实际转移的是电子、离子还是带电碎片,仍须按材料和条件另行判断。
一团 CaCO₃ 浆体倒入盘后立刻水平振动十几秒,三天干燥后裂纹垂直于当初的振动方向排列——密闭一个月后开放干燥仍然如此。实验把写入条件锁定在"屈服应力量级的塑性剪切":太弱没写入,太强被宏观流动冲掉。理论上,弹塑性连续模型证明塑性流动必然积累流向张力、并由屈服阈值把一部分冻结为残余张力;后续测量把两种候选载体都变成直接观测——残余应力各向异性(弹性底板反演)与颗粒排列各向异性(X 射线断层),两者的因果贡献至今未分离。本库的弹簧网络复算单独检验读出端:方向性的键强差异会被断裂级联读进早期断键的方向分布,各向同性弱化则不产生方向记忆——读出环节本身可以放大微弱各向异性,但模型不给出真实材料的数值阈值。写入靠塑性,保存靠冻结,读出靠断裂对弱键的忠实选择;换方向再振两下即可改写,宏观流动则冲掉。
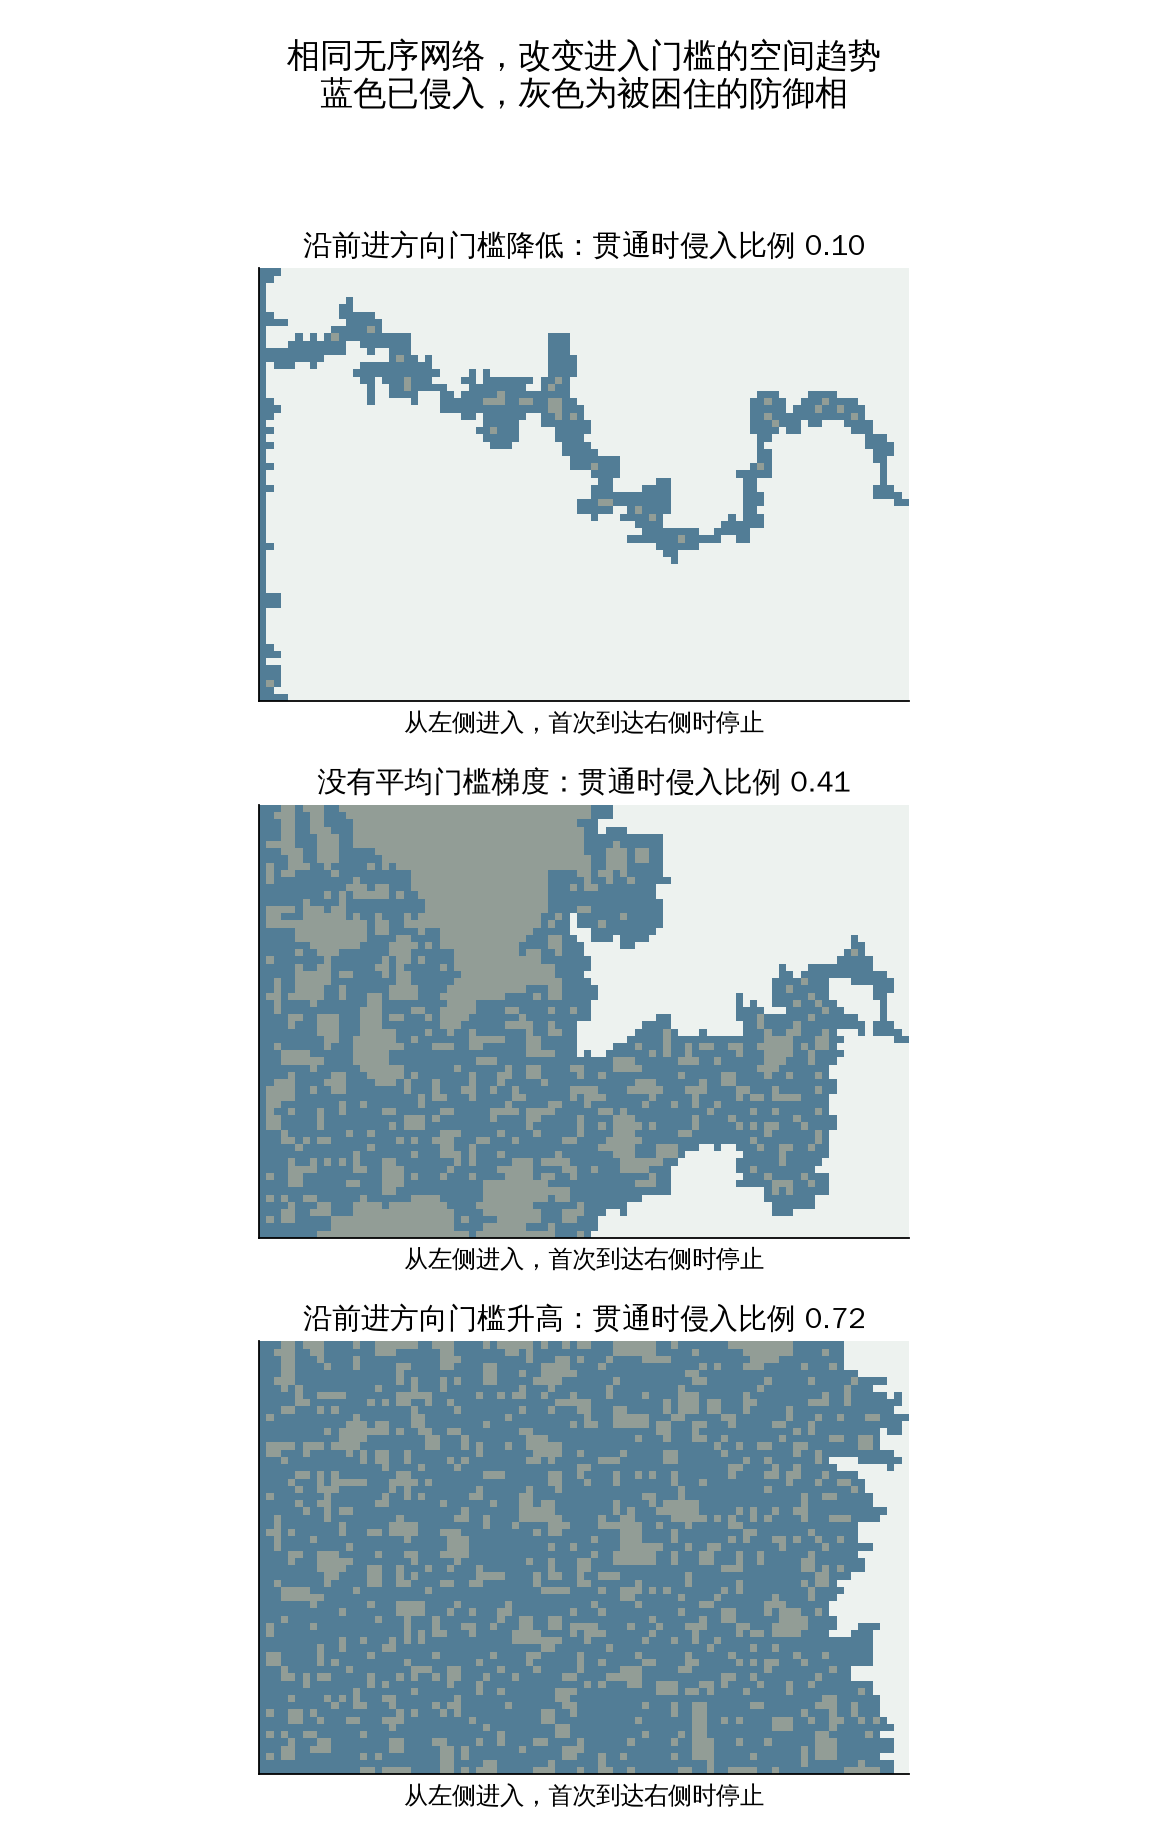
分叉前沿可能由两种不同过程形成:黏性指进把略微领先的通路变成阻力更小、流量更大的通路;毛细指进则在缓慢排驱时不断挑选当前可进入的低门槛孔喉。孔隙梯度可以放大或抑制这种选路,润湿性又会改变弯液面的移动方式。本文用原始实验与两组分工明确的最小计算,解释前沿为何变窄、铺开或留下困闭区域,并说明单看最终形状为什么不足以确定形成机制。
没有匹配的研究笔记