73
心跳、呼吸与脑活动怎样相互影响,又怎样区分共同驱动?
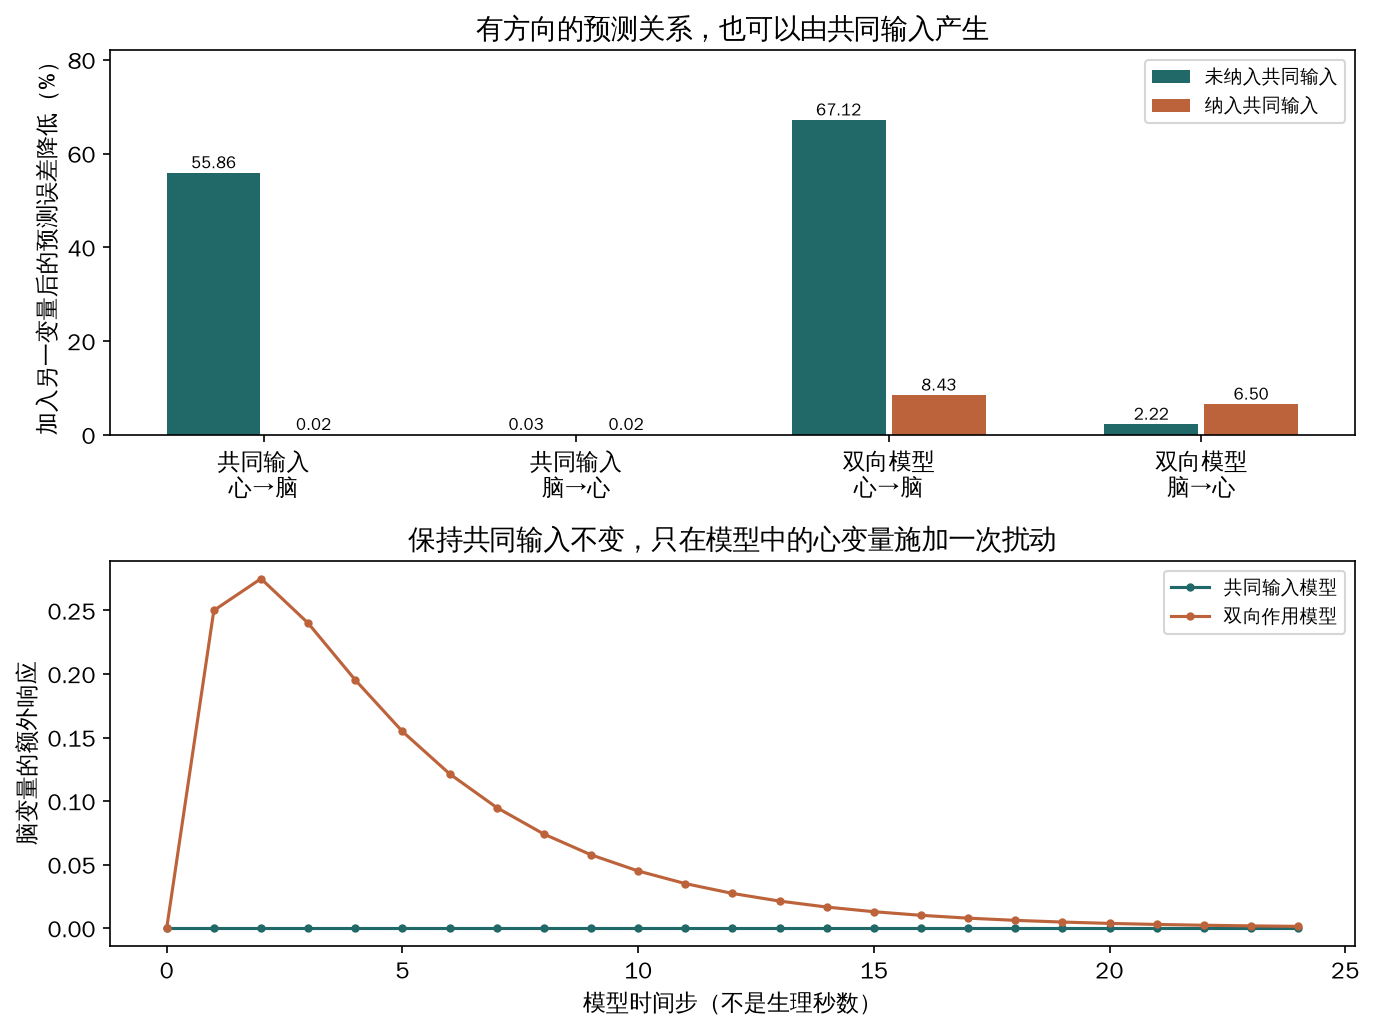
心脏与中枢之间有真实的传入、传出和反射通路,呼吸又同时影响循环与神经活动。本文结合压力感受与2026年血量感觉研究、鼻呼吸和人体感知实验,解释这些联系的具体环节;重绘小鼠体位补偿数据,并计算共同输入、真实反馈、心搏锁定伪迹及感知判断的对照。方向性统计、心搏平均和主观体验分别需要自己的证据,联合记录的价值在于逐步区分实际通路、共同驱动与测量混入。
Mechanism Atlas · 现象 — 机制 — 条件
从一个可回答的问题出发,比较可能的机制,走通最小因果链,再看条件改变之后什么会变化。
心脏与中枢之间有真实的传入、传出和反射通路,呼吸又同时影响循环与神经活动。本文结合压力感受与2026年血量感觉研究、鼻呼吸和人体感知实验,解释这些联系的具体环节;重绘小鼠体位补偿数据,并计算共同输入、真实反馈、心搏锁定伪迹及感知判断的对照。方向性统计、心搏平均和主观体验分别需要自己的证据,联合记录的价值在于逐步区分实际通路、共同驱动与测量混入。
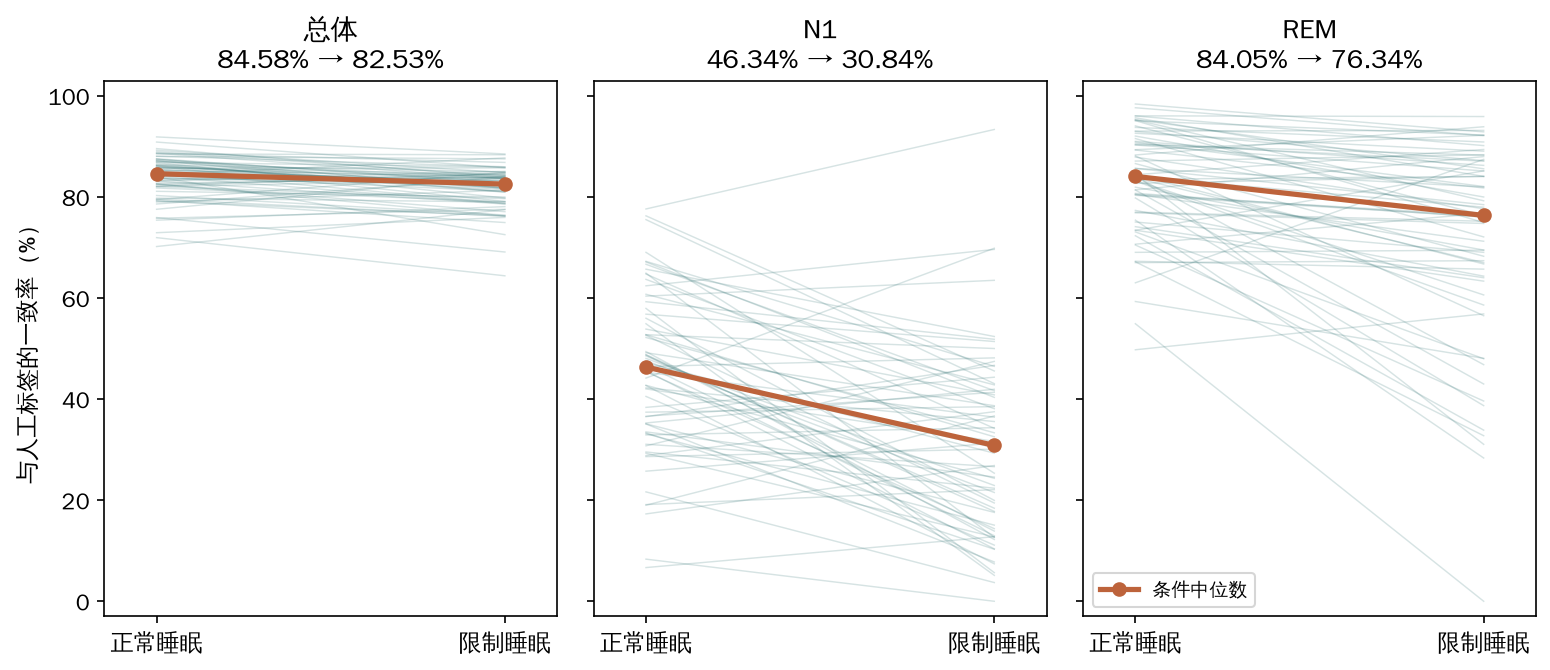
睡眠分期算法把脑电、眼电、肌电及时间背景转成特征,再依据人工标注学习状态概率。本文比较YASA和Dreem的两种处理路线,复算独立验证的483夜汇总与68人条件内比较,重绘按编号选择的三夜标签,并用最小模型解释连续性先验如何纠错和遗漏短暂变化。老年人验证和注意任务进一步说明:类别、记录窗口、参照标签及外部检验决定了结果能解释什么,识别睡眠或任务关联不自动成为通用专注评分。
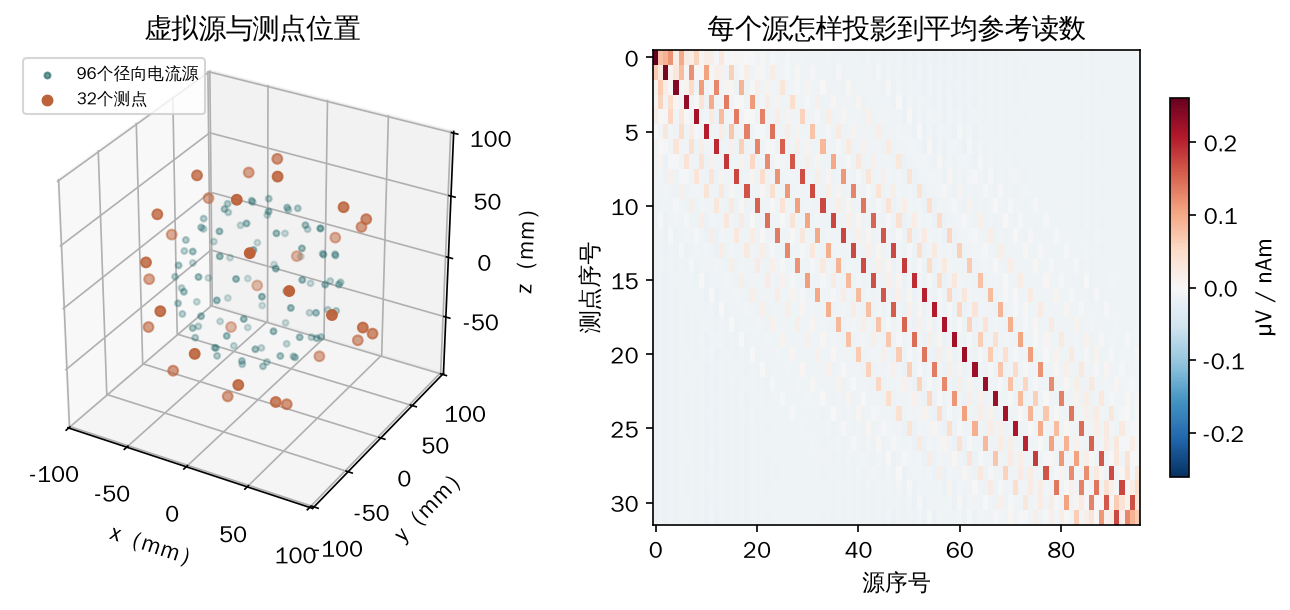
头皮脑电记录神经电流经过组织和参考方式后形成的电位差,源定位再结合几何与先验推断脑内分布。本文用明确的均匀导体模型计算不可见源分量、增加测点和模式约束的影响,比较干电极接触、2026耳内脑电的任务表现与几何基函数重建。检测到一种信号、准确定位一个峰和恢复完整动态有不同证据要求;合适的先验可以提高特定重建,但不能把缺失信息自动变成已测事实。
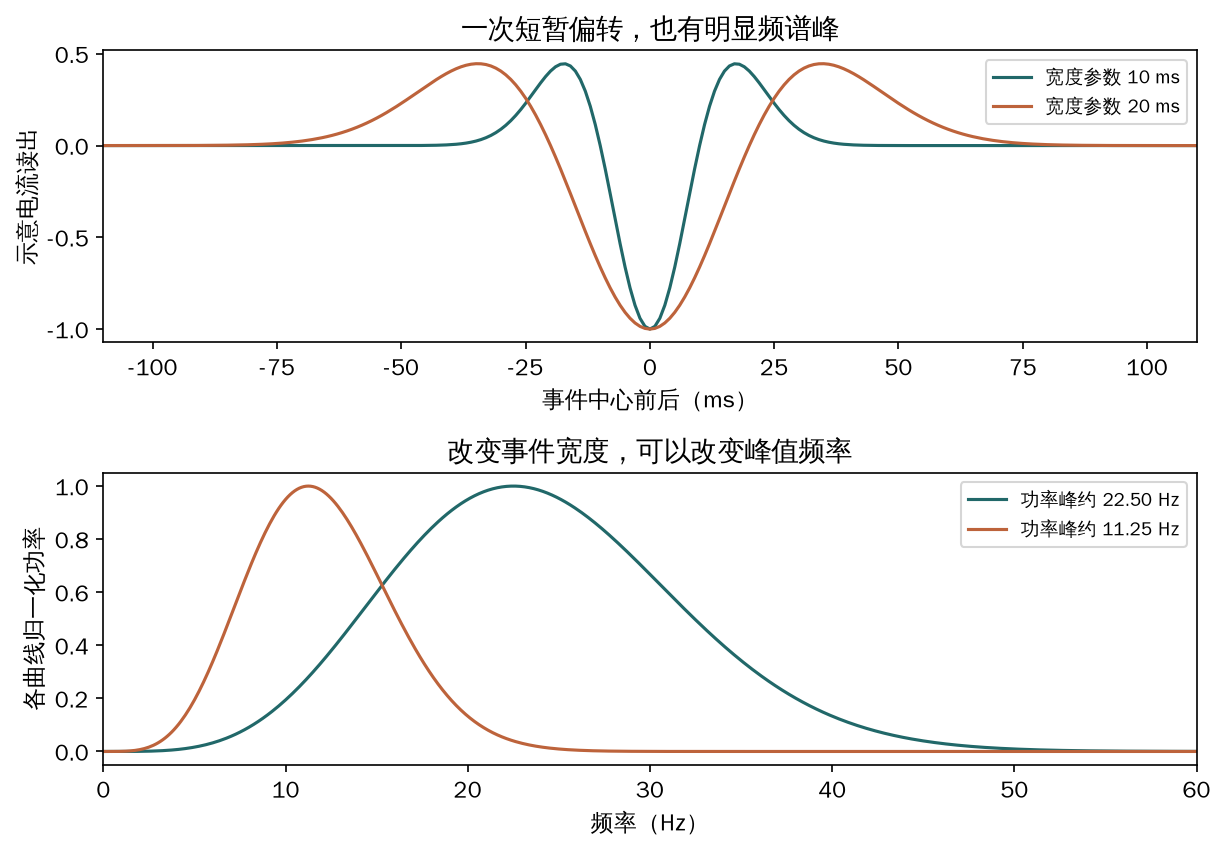
脑电节律来自神经电流在时间与空间中的组织,频带名称不能单独指出发生器。本文比较α活动中的细胞、皮层与丘脑联系,以及短暂β事件的分层输入模型;计算反馈共振、单次波形的频谱和相同功率谱下不同时间结构,并据原始补充表重算两种事件时长。节律频率、功率、持续性与功能需要分别解释,局部电流、长程联系、记录方式和分析窗口共同决定仪器呈现的图景。
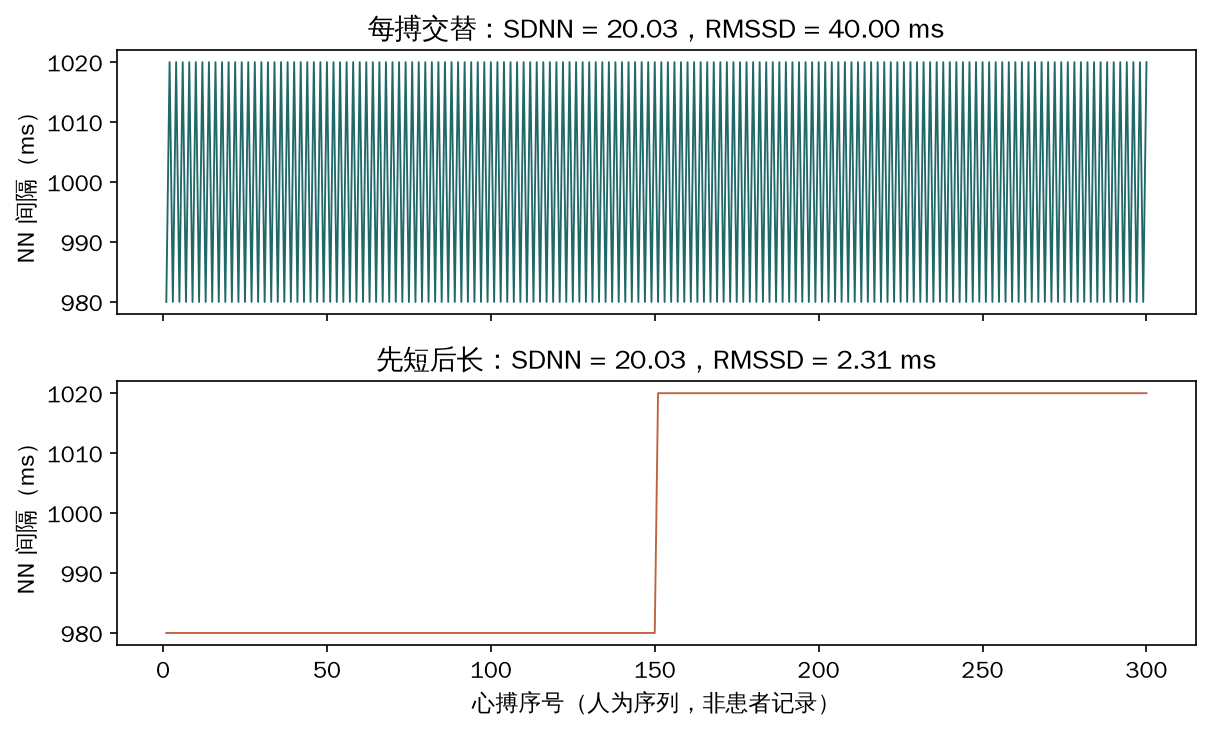
HRV描述正常心搏间隔怎样变化,但SDNN、RMSSD与频谱并不读取同一种变化。本文沿呼吸、自主神经、起搏工作点与电/光测量链解释这些指标,计算同分布不同顺序、增益与时标误差的最小例子,并用2025年原始补充数据复算指端和耳内设备的四组一致性结果。近期临床、运动员与训练研究表明,测量一致、身体状态推断与干预获益必须逐步建立联系;单个数值不能直接换算为压力、恢复或健康余额。
心电图记录体表电位差,光学脉搏记录光经过组织后的变化;两者连接到同一心搏过程,却保留不同信息并受到不同干扰。本文核对导联的数学关系,重绘公开电/光波形、20人199搏的光学数据与31人的波形质量统计,并复算原始ECG App验证和Apple Heart Study的关键分母。设备可靠性需要落到具体信号、用途、可用记录比例与验证条件;单导联、光学脉搏、自动分类和临床判断各有独立边界。
心律失常可以涉及异常触发,也可以由电活动反复绕回已经恢复的组织维持。本篇从兴奋接力、恢复与路径条件解释折返,用有限模型区分启动和持续,再比较人类双面光学标测、波破裂、相位图与两项2025年发表的随机试验。原表复算显示,同一壁内活动在不同视图中可见的信息不同;相位旋转、真实回路和干预结局需要不同证据。折返是可研究的持续机制,但其具体形态、检测能力和临床作用依赖组织、记录与干预条件。
心脏节律需要单细胞的兴奋与恢复、细胞群的相互协调,以及起搏组织向下游心肌的可靠传出。本文比较人类窦房结细胞、兔细胞耦合、HCN4调节和人类组织标测,复算公开原表与64个个体读数,并用相位和兴奋—恢复模型讲通协调及负载条件。2026年群体钙信号提供了空间组织的新观察,但钙读数、推算电位与网络解释仍需分层。现有证据支持多环节共同维持节律,尚不能把器官表现归结为最快细胞、单个通道或一种通用耦合强度。
本篇以命名和协调任务中的约定为对象,比较人类网络实验、简单命名模型、大模型群体及2026年含弃权的投票实验。局部成功会改变后续选择,但随机复制、反馈放大和共同先验都可能产生一致;网络决定局部协调能否连接成全局约定。转换门槛依赖规则、记忆、规模和观察时间,初次选择近似均匀也不保证带历史后的响应对称。共同约定的形成可以被具体研究,但不能直接当成更正确、更合理或全部社会规范的起源。
早期发光源产生的高能光子需要先逃出星系,才能电离周围气体;气体复合、吸收结构与宇宙膨胀又改变增长和维持成本。本文用光子收支、三维连通和阻尼翼计算连接这些机制,复算红移约13星系的公开光谱,并纳入2026年OASIS后续观测与THESAN光谱校准研究。局部电离有越来越具体的证据,但单条莱曼α线仍不能独自确定光源性质、完整区域形状或全宇宙已经电离的比例。
相似年降雨量不能独自决定森林与稀树草原的分界,季节性、土壤、火、种子来源和植被空间结构都参与其中。本文结合火处理研究、2023和2026年空间模型及遥感分析,用连通格网、边界传播和空间混合三个实际计算解释:覆盖比例相同不代表火的传播相同,局部双稳不保证已有边界静止,空间双峰也不直接证明同地点有两个稳态。反馈机制已有具体依据,但自然景观的恢复路径与阈值仍需地点和时间证据。
在一组受控小鼠任务中,将奖励间隔从几十秒延长到几百秒,可以显著减少达到行为判据所需的奖励次数,但训练中经过的总时间未相应缩短;一小时间隔已偏离原先比例。本文回查52条公开的行为获得记录和模型输出,用时间一致的更新例子解释增益与更新频率的关系,再比较回溯关联、时间表征和预测误差解释。较可靠的结论是时间结构参与关联获得;它尚不能推出等待越久越好、重复没有价值或所有学习遵循同一算法。
没有匹配的研究笔记