61
融水进入冰川底部,为什么有时使冰川加速,有时加速会减弱?
融水对冰川运动的影响,取决于它怎样改变底部承重,以及排水通路怎样随后调整。本文核对经典通道模型、2025年软床冰川研究与2026年南极钻孔观测,重算南极水压和定位记录,并用两个平行通道说明压力的快速响应与几何的缓慢变化。更多来水可以先提高滑动倾向,通路扩张后响应又减弱;但软床储水、沉积物形变和海洋边界提供了不同路径,不能仅凭一条季节速度曲线识别全部底部机制。
Mechanism Atlas · 现象 — 机制 — 条件
从一个可回答的问题出发,比较可能的机制,走通最小因果链,再看条件改变之后什么会变化。
融水对冰川运动的影响,取决于它怎样改变底部承重,以及排水通路怎样随后调整。本文核对经典通道模型、2025年软床冰川研究与2026年南极钻孔观测,重算南极水压和定位记录,并用两个平行通道说明压力的快速响应与几何的缓慢变化。更多来水可以先提高滑动倾向,通路扩张后响应又减弱;但软床储水、沉积物形变和海洋边界提供了不同路径,不能仅凭一条季节速度曲线识别全部底部机制。
土壤碳的保存由进入、转化、接近、结合与离开的过程共同决定。本文核对2026年黏土梯度的标记碳观测、2025年长期植物与火成输入的数据,并用可逆结合、层间迁移和年龄分布计算说明:从原土层消失不等于全部分解,进入矿物结合组分不保证永久保存,库存很老也不直接给出未来寿命。化学性质、矿物及微生物过程均有作用,具体贡献仍受试验设计和收支缺口约束。
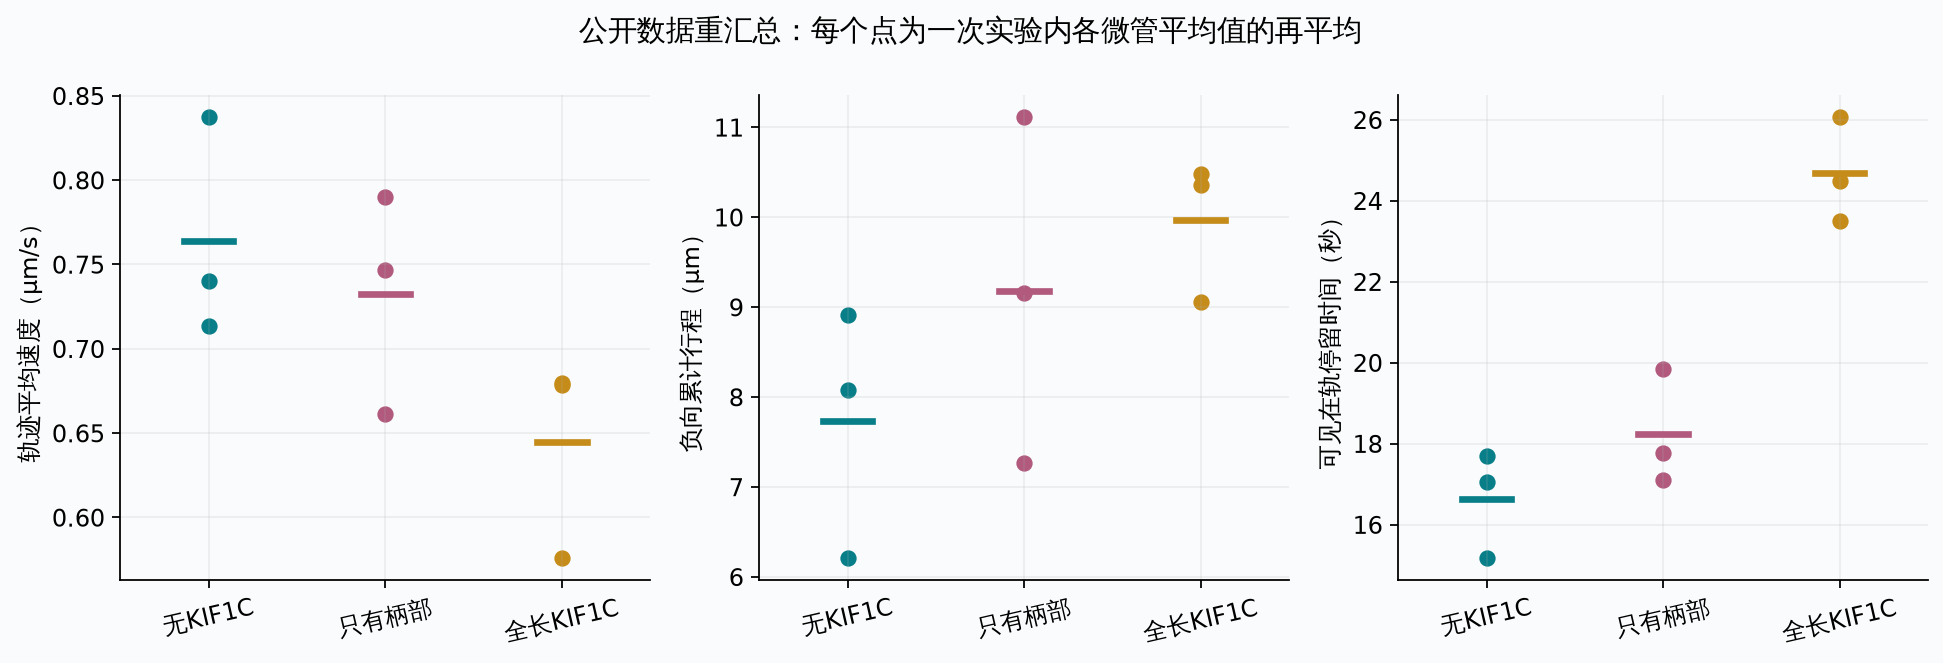
货物上有两种相反方向马达,不等于它们一直同样用力。负载促进脱离可以使机械拔河产生长程单向运动和随机换向;共享适配蛋白又能让没有运动头部的马达片段促进对方着陆。本文重汇总2025年KIF1C—dynein研究的公开源表,区分启动机会、平均速度、累计行程与停留时间,并用系留—再结合模型解释为何走得慢一些也可能走得更远。反向稀少、轨迹分类和不同实验口径限定了结论的外推。
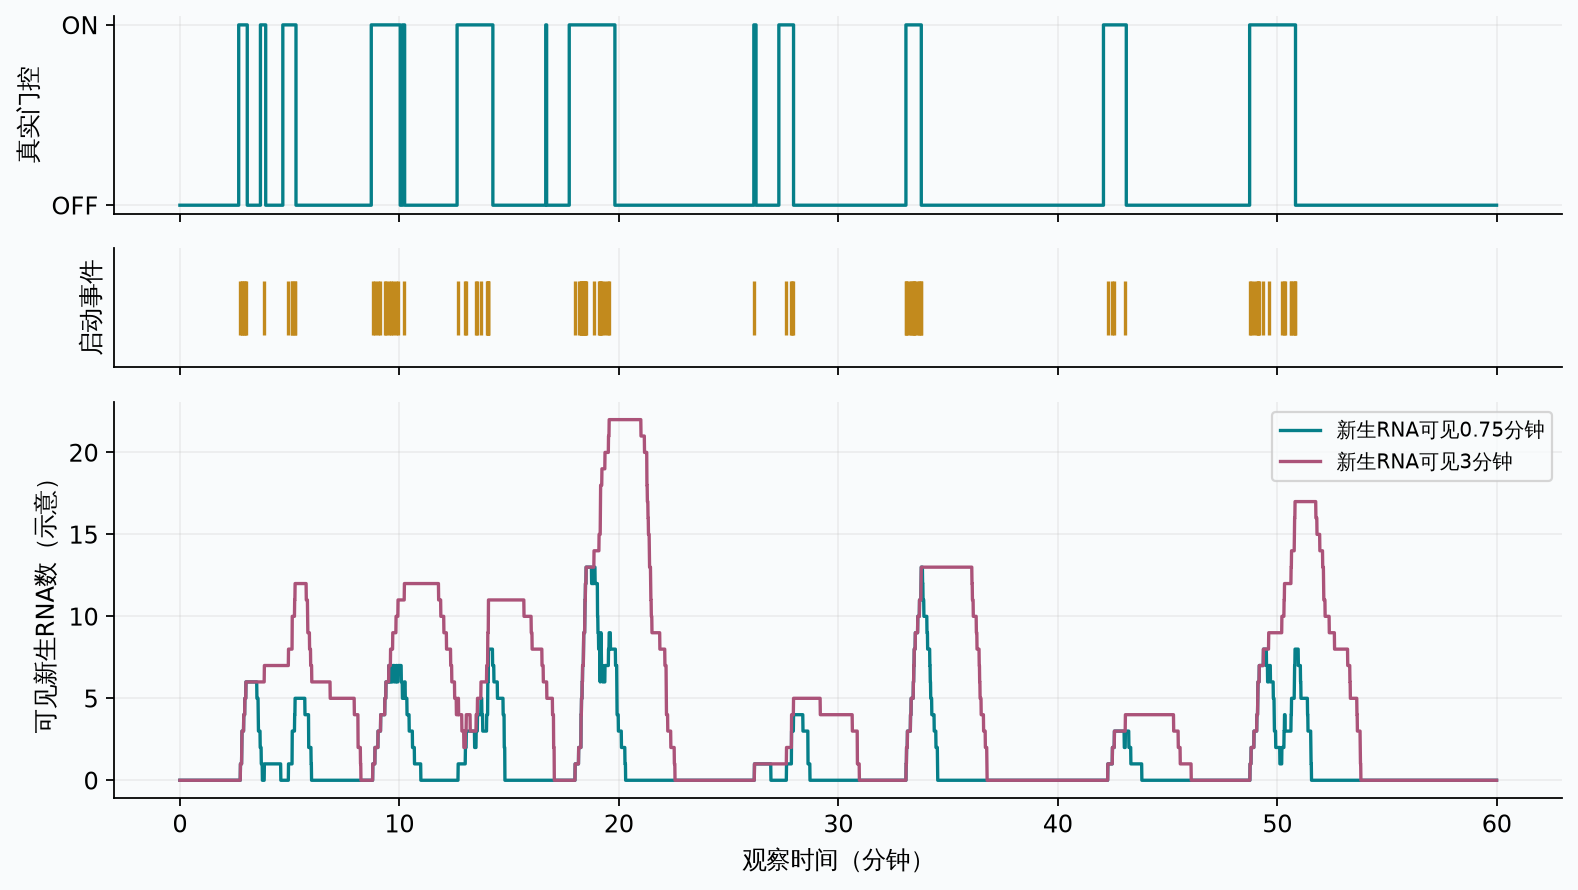
转录脉冲可以来自一个可用状态维持了一段时间,让多次RNA生产接连发生,但ON/OFF只是对过程的描述,不能直接对应唯一的分子开关。本文用随机模型分清时长、频率、RNA库存和可见信号,再重汇总2025年研究的169份公开参数文件,复得约1.246分钟的有效切换时间。2026年增强子位置研究则显示,空间配置能改变相对输出与时间组织,而具体分子原因仍未定。相同快照可以有不同动力学,不同研究的“脉冲”也未必是同一把尺子。
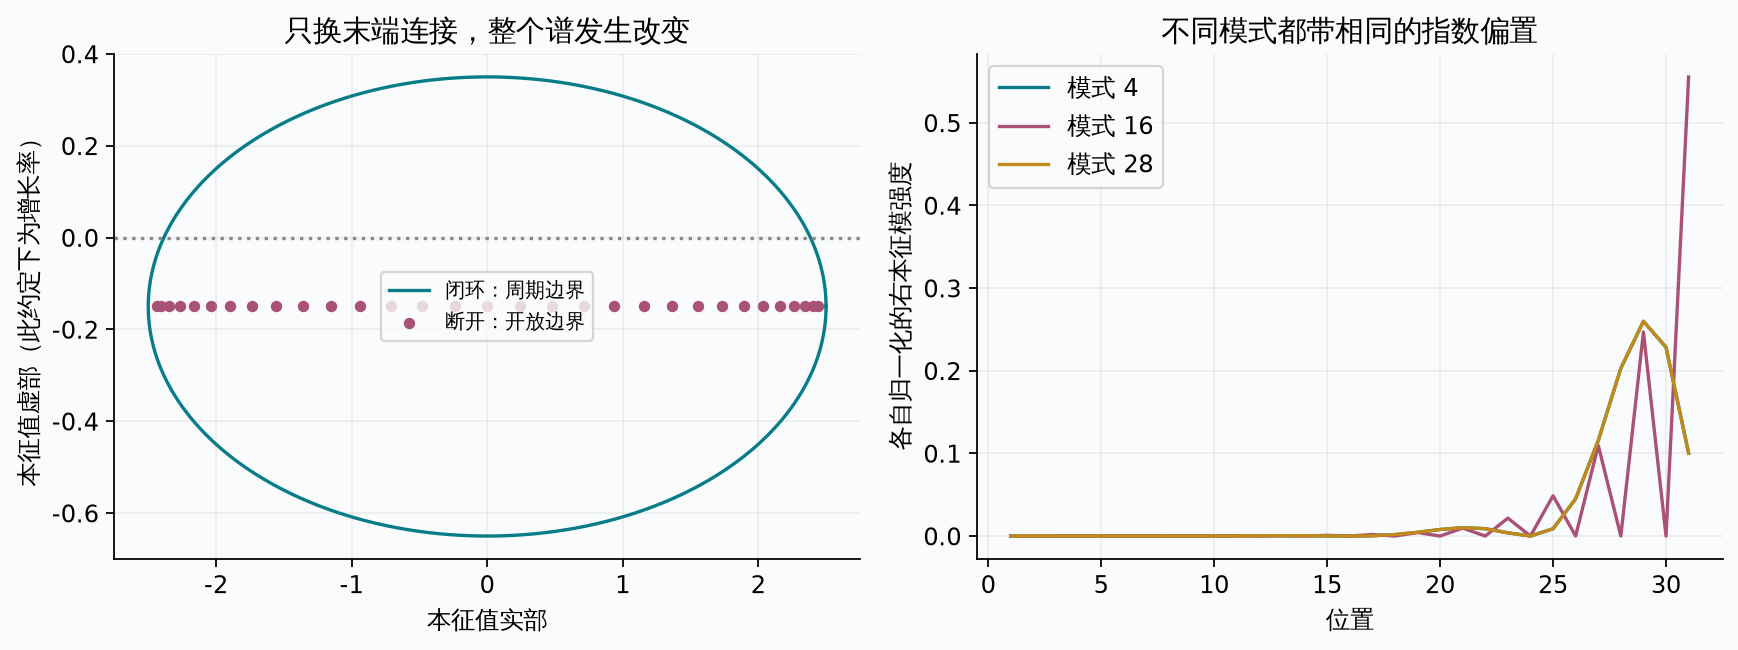
边缘聚集可以来自整条链的方向性耦合,而不只来自边缘附近的特殊结构。本文从可解析的有限链说明本征模、受迫响应和稳定性之间的分界,再用2026年13声腔实验的参数,分别通过谐波矩阵与分段时间演化重算频率转换和左右聚集。均匀损耗可以保留模式形状却改变响应峰;占空比也能在平均耦合相同时改变谐波权重。另一项被动双层声学实验说明,具体的自由度与读出方式同样重要。
同样把二氧化碳升到预工业值的4.07倍,慢升1750年时大西洋翻转环流稳定到+5.5 °C,快升175年时在+2 °C崩溃。本文按发表脚本的方程另写一份五箱环流模型(稳态对到12位有效数字、鞍结点差1.1e-8 Sv、临界速率与发表数组差0.1%–1.6%),把"终点决定"与"速度决定"分开:门槛随变暖以0.0288 Sv/°C左移,抵消它的淡水反馈却要上百年才长齐,两者赛跑给出临界升温速率;两条只差速率的路径外部设定相同,但因结局不同,最终有效强迫并不相同。延拓另查出"开态"在鞍结点前0.0063 Sv处已经历Hopf型失稳(临界性与吸引域未定);所测耦合过弱的点上闭环终态本身振荡不稳定,临界速率无从谈起;无耦合但紧贴Hopf时仍有0.0013 °C/yr的临界速率,离边界较远时测试范围内任何速率都追得上。噪声只把门槛抹成概率,同一峰值下回撤越慢越危险——"越快越危险"只对上升段成立。
杂乱并不等于大尺度上忽疏忽密。局部重排一方面平整密度,另一方面不断制造新的波动;成对搬运若保持局部质心,就能特别压低新注入的长波噪声。本篇结合2026年随机组织研究、乳液实验和连续时间粒子跳跃复算,解释为什么平均运动相同也能形成不同空间统计,少量不配对扰动为何恢复长波平台,以及频谱、数窗和有限视野怎样给出不同结论。
加热增大原子运动,并不保证材料两端距离增大。本文用几何投影与两组振动自由能模型解释框架热缩,再比较ScF₃的局部结构证据与2025年PrMnO₃高温研究。公开源表复算支持900–1100 K约1.69%的晶胞体积收缩,同时揭示相比例变化、单相各向异性和电子—结构耦合各自的作用。区间平均与峰值、局部键长与整体体积、衍射晶胞与宏观器件需要分别判断。
长期训练不只积累旧答案,也改变下一次误差能怎样更新参数。本文区分旧任务保持、新任务学习与泛化,用满秩但收敛很慢的线性例子解释优化几何,再运行同预算的持续记忆实验与共同新任务探针。少量刷新在部分条件下维持学习,渐变和更大学习率却不自动有效;原始文献与本库计算共同说明,可塑性需要按任务、状态、干预和预算具体检验。
电极电位改变后,充电、离子富集、水合结构和表面反应未必同步完成。本文从双电层充电的三个时间尺度出发,重绘2026年时间分辨红外与Pt–D频率数据,用松弛反例区分滞后和永久改变,再以两层静电模型解释为何相同电位甚至更多表面电荷,也未必带来更强的局部电场。分子模拟、谱学和反应模型各提供一段机制,不能把它们直接拼成完整的实时反应录像,也不能由暂态变化推定脉冲更优。
蛋白质的远端效应可以来自形状联动、原有状态的占比变化,或内部波动代价的改变。本文用8状态结合模型、两个耦合坐标和折叠—结合歧义反例讲清这些过程,再比较PDZ核磁与热量实验、2026年比较图谱及Sgt2无序尾巴研究。结构相似不保证功能相同,动态变化也不自动等于完整机制已明;关键是把结合、丰度、状态分布和时间尺度放在同一条证据链里。
颗粒本身很硬,整堆材料却可能靠移动和转动继续变形。本文从接触连通、约束独立性与单侧受力出发,用方框反例和接触增殖模型解释整体承重如何出现,再比较干颗粒的方向性、悬浮液的瞬态支撑与2026年刚性团簇研究。增稠、局部刚性和全局堵塞各有条件;摩擦、边界与制备历史共同决定哪些运动仍然可行。
没有匹配的研究笔记